Modelo de Drosophila para estudiar la microbiota intestinal en comportamientos y enfermedades neurodegenerativas, parte 2
Aug 16, 2023
3. Comportamientos aprendidos de Drosophila
En los últimos 40 años se han logrado enormes avances en la investigación sobre los mecanismos detallados que subyacen al aprendizaje y la memoria de Drosophila. En estudios biológicos se han utilizado varios comportamientos de aprendizaje y memoria de Drosophila, incluida la memoria olfativa, la memoria visual, la memoria de lugar y la memoria de cortejo [66]. Amplios estudios han sugerido que las moscas pueden aprender y formar recuerdos a partir de sus experiencias, y estos recuerdos pueden persistir durante horas o días. La memoria olfativa y la memoria de cortejo de Drosophila son dos sistemas de ensayo populares para estudios de memoria en el laboratorio. Aquí, nos centramos principalmente en los recuerdos olfativos y de cortejo en Drosophila.
La memoria olfativa de Drosophila significa que Drosophila percibe el entorno externo a través del sentido del olfato, almacena esta información en el cerebro y recuerda esta información cuando es necesario. La memoria olfativa juega un papel muy importante en la supervivencia de Drosophila ya que ayuda a la mosca a reconocer alimentos, parejas, enemigos, etc. En el cerebro de Drosophila, el mecanismo por el cual se forman las memorias olfativas difiere de otros tipos de memorias, lo que podría ayudar mejor. entendemos la naturaleza de la memoria.
A diferencia de la memoria humana, la memoria olfativa de la mosca de la fruta parece no verse afectada por factores como la edad y la salud. Un equipo de investigadores ha descubierto en experimentos que las memorias olfativas se establecen y conservan con éxito tanto en moscas de la fruta jóvenes como en viejas. Esto muestra que la memoria olfativa de la mosca de la fruta es una forma de memoria muy estable, e incluso se puede decir que es una memoria que no se puede destruir.
Además, la formación y preservación de los recuerdos olfativos en Drosophila también están relacionadas con la forma en que están conectadas las neuronas de su cerebro. Los investigadores han descubierto que la memoria olfativa se puede destruir o fortalecer cortando y pegando neuronas en las moscas de la fruta. Esto muestra que la formación y preservación de la memoria olfativa en Drosophila depende de la conexión entre las neuronas, y esta conexión puede ser regulada e influenciada por experimentos, lo que nos ayuda a comprender mejor el mecanismo de formación y preservación de la memoria.
En general, la memoria olfativa de Drosophila es una forma de memoria muy específica y estable. Está relacionado con factores como la forma en que están conectadas las neuronas en el cerebro y la influencia del medio ambiente, y puede ser independiente de la edad y el estado de salud de la mosca de la fruta. Estos hallazgos proporcionan una visión única de la naturaleza de la memoria y pueden desempeñar un papel importante en futuras aplicaciones y diagnósticos médicos. Se puede ver que necesitamos mejorar nuestra memoria. Cistanche puede mejorar significativamente nuestra memoria, porque Cistanche también puede regular el equilibrio de los neurotransmisores, como aumentar los niveles de acetilcolina y factores de crecimiento, que son muy importantes para la memoria y el aprendizaje. Es importante destacar que, además, la carne también puede mejorar el flujo sanguíneo y promover el suministro de oxígeno, lo que puede garantizar que el cerebro reciba suficiente nutrición y energía, mejorando así la vitalidad y la resistencia del cerebro.
Haga clic para conocer formas de mejorar la función cerebral
3.1. Condimentos de recompensa y aversión a la memoria olfativa
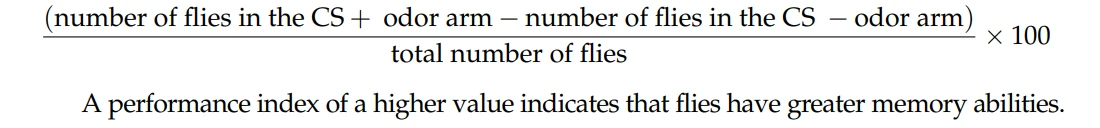
La memoria olfativa de Drosophila fue descrita por Tempel et al. [4] y Tully et al. [5]. Para el condicionamiento olfativo aversivo, las moscas reciben el castigo de una descarga eléctrica junto con la exposición a un olor específico (CS+), seguido de un olor diferente (CS-) sin descarga eléctrica. Para las pruebas de memoria, las moscas se transportan utilizando un pequeño ascensor en la máquina de entrenamiento y se les permite seleccionar entre dos olores (CS+ frente a CS-) en el laberinto en T. En este ensayo se utilizan a menudo tanto 3-octanol (OCT) como 4-metilciclohexanol (MCH). El índice de desempeño se define como:
El ensayo de memoria de recompensa de azúcar, descrito en estudios anteriores, es similar al ensayo de memoria de recompensa olfativa, y el ensayo de memoria de recompensa de agua es una modificación de la memoria de recompensa de azúcar [4,67–70]. En ensayos de memoria de recompensa de azúcar y recompensa de agua, se entrena a moscas hambrientas o sedientas para que combinen un olor (CS+) con azúcar o agua, respectivamente.
Antes de comenzar el experimento, las moscas se transfieren a viales que contienen un papel de filtro húmedo para evitar la inanición de alimentos antes del ensayo de memoria de recompensa de azúcar, o a viales que contienen papel de filtro de sacarosa seco para su desecación antes del ensayo de memoria de recompensa de agua. Para el entrenamiento, las moscas se trasladan a un tubo de entrenamiento que contiene un papel de filtro seco y se exponen al primer olor (CS-).
Luego, las moscas se transfieren a otro tubo de entrenamiento que contiene un papel de filtro de sacarosa o un papel de filtro de agua y luego se exponen al segundo olor (CS+). Para las pruebas, a las moscas se les permitió elegir entre los dos olores en un laberinto en T, y su distribución en los tubos se analizó y presentó como índice de rendimiento [68,71].
3.2. Memoria de cortejo
Las moscas hembras ya apareadas rechazan los intentos de cópula de los machos, lo que eventualmente conduce a una reducción del comportamiento de cortejo de las moscas macho. Esta experiencia desagradable (rechazo por parte de las hembras) también suprime el comportamiento de cortejo masculino hacia una hembra virgen [6].
La supresión del comportamiento de cortejo de la mosca macho hacia una hembra virgen después de la exposición a hembras ya apareadas se define como condicionamiento de cortejo. Antes de realizar la prueba, los machos no expuestos se recolectan el día de la eclosión y se mantienen individualmente durante 4 a 5 días. Cuando los machos ingenuos alcanzan la madurez sexual, se exponen a una hembra apareada durante 1 h, y se calculó el índice de cortejo durante los primeros (CIinicial) y los últimos (CIfinal) 10 minutos del período experimental de 1 h. Luego, el macho de prueba se traslada a un lugar nuevo y se expone a una hembra virgen decapitada durante 10 minutos (prueba).
En el grupo de control, las moscas macho vírgenes se mantienen solas en una cámara durante 1 hora y luego se transfieren a una nueva cámara con una hembra virgen decapitada durante 10 minutos (CIsham) [72]. Finalmente, se calcula el índice de aprendizaje de cortejo y el índice de memoria. Los índices de aprendizaje y memoria más bajos indican que las moscas macho tienen una mejor capacidad de aprendizaje y memoria. Índice de aprendizaje=CIfinal/CIinicial e índice de memoria=CItest/media CIsham [72].
3.3. Impacto de la microbiota intestinal en la memoria
Los estudios han demostrado que se puede entrenar a las moscas para que asocien un olor con un castigo o una recompensa [4,5,67,73]. Para la memoria olfativa, las neuronas de proyección en el lóbulo antenal reciben información de las neuronas receptoras olfativas y se proyectan al asta lateral y a los MB en el cerebro de la mosca [74]. En particular, los MB de Drosophila son fundamentales para la memoria olfativa [75,76]. Las neuronas MB se clasifican en , 0 0 y neuronas [77].
Blum et al. demostró que en las moscas, las experiencias aprendidas forman la memoria a corto plazo en las neuronas MB, mientras que la memoria a largo plazo se forma en las neuronas MB [78]. Por el contrario, McBride et al. informaron que los MB son esenciales para la consolidación de la memoria a largo plazo durante el condicionamiento del cortejo [79]. Otro estudio informó que la superposición de las neuronas MB es necesaria para la memoria de cortejo y la memoria asociativa olfativa en Drosophila [80].
Cada vez hay más pruebas que sugieren que el microbioma intestinal puede tener algunos efectos sobre el comportamiento animal [81], y la interacción entre el intestino y el cerebro es fundamental para los comportamientos [82]. Varios investigadores han indicado un vínculo entre la microbiota intestinal y el aprendizaje [83] o la memoria [84]. En particular, se han desarrollado probióticos específicos para mejorar el aprendizaje y la memoria en ratones [85,86]. En Drosophila, la microbiota intestinal es mucho más simple en comparación con la de otros animales [87].
Las moscas de la fruta son un modelo animal potencial para estudiar los efectos de la microbiota intestinal en las conductas aprendidas; sin embargo, sólo hay pruebas dispersas. Recientemente, Silva et al. informaron que las moscas axénicas tienen una memoria apetitiva reducida 24 h después del entrenamiento y las moscas macho axénicas exhiben una disminución del aprendizaje y la memoria de cortejo [34] (Tabla 1). Se necesitan más estudios para dilucidar el impacto de la microbiota intestinal en los comportamientos aprendidos en el futuro.
4. Envejecimiento y longevidad
El envejecimiento es un fenómeno biológico universal. Básicamente, el envejecimiento es un término utilizado para describir la relación entre el avance de la edad cronológica y la disminución de las funciones fisiológicas, como la función reproductiva, la fuerza muscular, el deterioro cognitivo y las enfermedades relacionadas con la edad [88].
Varios estudios han empleado modelos animales, como Caenorhabditis elegans, Drosophila y ratones, para caracterizar los cambios moleculares y fisiológicos que ocurren durante el envejecimiento [89].
Microbiota intestinal y envejecimiento de Drosophila
Aging is associated with an increased risk of chronic diseases, including immune system diseases, cancer, neurodegeneration, and dysbiosis [90]. A recent study demonstrated that there are significant differences in the gut microbiota composition between healthy and unhealthy elderly adults (aged >90 años). Las personas mayores sanas tienen una mayor abundancia de Bacteroidetes en el intestino, que proporcionan vías más funcionales para el metabolismo energético.
Sin embargo, las personas mayores con mala salud tienen una mayor abundancia de estreptococos y otras bacterias patógenas en el intestino [91]. Los estudios sobre la microbiota humana de edad avanzada no son muy consistentes debido a diferentes parámetros internos y externos asociados a cada persona; por lo tanto, se requieren más estudios utilizando modelos animales para aclarar el papel de la microbiota intestinal en el envejecimiento.

Normalmente, la Drosophila de tipo salvaje, sana y bien mantenida, W1118, tiene una vida media de aproximadamente 70 días y un máximo de aproximadamente 90 días cuando se cría a 25 ◦C [92]. Las moscas envejecidas exhiben graves cambios de comportamiento relacionados con la edad 21 días después de la eclosión, como deterioro locomotor relacionado con la edad (ARLI), disminución de la actividad sexual y del comportamiento reproductivo, reducción de la capacidad de detección de temperaturas frías, ruptura de los ciclos de sueño-vigilia y deterioro de las funciones cognitivas. 63,93–95]. Estos cambios de comportamiento relacionados con la edad están asociados con un cambio en el patrón de expresión genética. El envejecimiento está asociado con cambios en la expresión de casi el 23% de los genes de Drosophila, y muchos de estos genes están relacionados con la respuesta al estrés y la reproducción. La expresión perturbada de estos genes provoca el deterioro de varios procesos fisiológicos en moscas envejecidas [96].
En las moscas adultas, las Proteobacterias (Acetobacter y Komagataeibacter) y Firmicutes (Lactobacillus y Leuconostoc) comprenden una parte importante de la microbiota intestinal, especialmente en la región de células de cobre similares al estómago (CCR, ver también la Figura 1a), que controla la distribución y composición de la microbiota y metaplasia del epitelio gástrico mediante la activación de la señalización JAK/STAT en el intestino envejecido [97]. Además, existe una diferencia significativa en la composición de la microbiota intestinal entre moscas jóvenes y viejas.
En las moscas jóvenes, Acetobacter persici y L. brevis son las especies dominantes. Sin embargo, A. malorum y L. plantarum están presentes principalmente en el intestino de moscas viejas [98]. Los estudios que aclaran los efectos de la microbiota intestinal durante las diferentes etapas del desarrollo de Drosophila no son consistentes. Brummel et al. descubrió que las moscas criadas en condiciones axénicas tienen una vida útil reducida en comparación con las moscas convencionales. Además, la presencia de microbiota durante la primera semana de vida adulta en Drosophila aumenta la esperanza de vida. Por el contrario, la presencia de microbiota durante la vejez disminuye la esperanza de vida. Los autores propusieron que la microbiota intestinal interactúa con los genes de la longevidad para modular la esperanza de vida en Drosophila [39].
Por el contrario, Catterson et al. demostró que el ayuno intermitente (si, dos días de alimentación seguidos de cinco días de ayuno) puede prolongar la vida útil de Drosophila. Además, los autores demostraron que la IF durante al menos 30 días durante la edad adulta mejora la esperanza de vida. Los autores argumentaron que el IF aumenta la resistencia inducida por el hambre al estrés oxidativo y xenobiótico.
Además, el IF mejora el contenido de lípidos en 60-moscas de un día. El análisis del intestino 40 días después de la IF reveló una reducción significativa de las patologías relacionadas con la edad, una mejor función de la barrera intestinal y una reducción de la abundancia bacteriana, incluida la de L. plantarum. Puedo actuar independientemente de la vía TOR y aumentar considerablemente la vida útil. En conjunto, durante los primeros años de vida, la IF a corto plazo puede inducir efectos beneficiosos duraderos que podrían mejorar la longevidad, al menos en parte, al preservar la salud intestinal [40].
5. Enfermedades de Alzheimer
La enfermedad de Alzheimer (EA) surge debido a la degeneración neuronal en el cerebro. La EA se caracteriza por la presencia de placas neuríticas y ovillos neurofibrilares, lo que conduce a la acumulación del péptido beta amiloide (A) [99]. Hay dos hipótesis principales para explicar el mecanismo subyacente al desarrollo de la EA. La primera hipótesis es la hipótesis colinérgica.
En la década de 1970, los estudios revelaron que los déficits colinérgicos neocorticales y presinápticos están relacionados con la colina acetiltransferasa (ChAT), una enzima implicada en la síntesis de acetilcolina (ACh). Dado que la ACh es el factor clave implicado en la regulación de las funciones cognitivas, la hipótesis colinérgica propone que la acumulación de amiloide afecta la neurotransmisión colinérgica y provoca una reducción en la captación de colina y la liberación de Ach [100,101]. La segunda hipótesis es la hipótesis del amiloide.
Se ha observado que la degradación del A se reduce con el aumento de la edad o en diversas condiciones patológicas, dando lugar a la acumulación de péptidos A, lo que finalmente provoca la muerte neuronal [102-104]. Se han identificado varios factores de riesgo de EA, como el envejecimiento, los antecedentes genéticos, las mutaciones de la proteína precursora de amiloide, los factores ambientales y la exposición a metales pesados [105].
5.1. Microbiota intestinal y EA en Drosophila
Los pacientes con EA presentan una abundancia reducida de L. brevis y Bifidobacterium dentium en el intestino y niveles reducidos de GABA en el SNC [106]. La serotonina, otro neurotransmisor clave que regula las funciones cognitivas, puede ser sintetizada por los microbios intestinales [15,107]. Además del desequilibrio de los neurotransmisores, las neurotoxinas también están implicadas en la EA. Un estudio reciente reveló que la neurotoxina -N-metilamino-L-alanina (BMAA) es producida por cianobacterias en el intestino, lo que contribuye al desarrollo de la EA [106,108]. Sin embargo, el impacto de la microbiota intestinal en los circuitos neuronales y los mecanismos relacionados en la EA aún no está claro. En general, se han desarrollado tres modelos de EA de Drosophila que permitieron a los científicos descubrir la relación entre la EA y la microbiota intestinal. Estos incluyen elav-Gal4, modelo UAS-BACE/UASAPP, modelo GMR-A 42 y elav-Gal4; Modelo UAS-A 42 (Tabla 1).
5.2. elav-Gal4; Modelo de mosca UAS-BACE/UAS-APP
El sistema UAS/Gal4 se ha utilizado para desarrollar modelos de moscas con EA expresando la beta-secretasa humana (BACE) o la proteína precursora de amiloide (APP) bajo el control del controlador elav-Gal4, que se expresa específicamente en las neuronas. Estas moscas exhiben una mayor deposición de amiloide en las neuronas, pérdida de la capacidad de trepar y una mayor neurodegeneración. Un estudio reciente mostró además la asociación entre la absorción de kéfir y la EA en elavGal4; UAS-BACE/UAS-APP vuela. El kéfir es un probiótico que contiene cinco especies bacterianas principales: L. kefiranofaciens (21,96%), L. kefir (0.2%), A. labarum (0.17%), Lactococcus lactis ( 0.004%) y Rickettsiales (0,001%). Los principales metabolitos presentes en el kéfir son hexano (Hex), diclorometano (DCM), acetato de etilo (EtOAc) y n-butanol (But-OH). La administración de kéfir a moscas modelo AD mejoró su capacidad de trepar, mejoró la tasa de supervivencia y suprimió la neurodegeneración. Además, aunque los cuatro metabolitos presentes en el kéfir fueron capaces individualmente de mejorar la actividad trepadora en las moscas AD, solo EtOAc y But-OH pudieron extender la vida útil del modelo AD Drosophila [41].
Westfall et al. desarrolló una formulación simbiótica que contiene L. plantarum NCIMB 8826 (Lp8826), L. fermentum NCIMB 5221 (Lf5221) y Bifidobacteria longum spp. infantis NCIMB 702255 (Bi702255), junto con 0,5 % de TFLA (extracto de planta polifenol del tónico gastrointestinal Triphala) en polvo. Tratamiento de elav-Gal4; Las moscas UAS-BACE/UAS-APP con esta formulación simbiótica redujeron la expresión del péptido similar a la insulina de Drosophila (Dilp), incluidos Dilp2 y Dilp3, y los receptores Dilp, mientras que aumentaron la expresión de dFOXO y del factor inmune innato oxidasa dual, y promovieron la señalización IMD. Además, la formulación simbiótica redujo los niveles de oxidantes totales, suprimió la peroxidación lipídica (LPO) y restauró la actividad de los complejos de la cadena de transporte de electrones (ETC) mitocondrial en moscas modelo AD [42].
5.3. Modelo de mosca GMR-A 42
El modelo de mosca GMR-A 42 AD se desarrolló expresando el transgén A 42 humano bajo el control del controlador multímero de vidrio (GMR) -Gal4, que se expresa en células de la retina. Estas moscas exhiben un fenotipo ocular áspero debido a la neurodegeneración, y este modelo se usa ampliamente para investigar los mecanismos subyacentes al desarrollo de la EA [109]. Liu y cols. demostró que la alimentación de L. sakei Probio 65 y L. paracasei 0291 reducía significativamente la neurodegeneración asociada a la EA en moscas modelo GMR-A 42 AD [43]. Además, Tan et al. informaron que Lactobacillus rescata el fenotipo de ojo áspero en moscas AD, especialmente la cepa L. plantarum DR7. L. plantarum DR7 puede restaurar la diversidad de la microbiota intestinal en moscas modelo AD al aumentar la abundancia de Stenotrophomonas y Acetobacter, al tiempo que reduce la de Wolbachia [44].
5.4. elav-Gal4; Modelo de mosca UAS-A 42
Este modelo de moscas AD se desarrolló expresando A 42 humano bajo el control del controlador panneuronal elav-Gal4. Al igual que otras moscas modelo AD, elav-Gal4; Las moscas UAS-A 42 exhiben tasas de supervivencia reducidas y capacidades de escalada reducidas. Además, la abundancia de las familias Acetobacteraceae y Lactobacillaceae está disminuida en el intestino de estas moscas, especialmente Acetobacter y Lactobacillus. Utilizando GC-MS, se ha descubierto que los niveles de acetato, que es el ácido graso de cadena corta (AGCC) más abundante en las moscas, disminuyen drásticamente en las moscas modelo AD [45]. Los estudios in vitro e in vivo han demostrado que los SCFA desempeñan un papel potencial en la reducción de los niveles de A y la mitigación de sus efectos tóxicos [110,111]. Además, la disbiosis entérica causada por una infección con una enterobacteria no patógena (Ecc15) en moscas adultas promueve el reclutamiento de hemocitos en el cerebro, lo que lleva a la neurodegeneración mediada por TNF-JNK, lo que resulta en el desarrollo de EA [46].
6. Enfermedad de Parkinson
La enfermedad de Parkinson (EP) es un trastorno neurológico que afecta a personas principalmente en los últimos años de la vida. En general, la EP rara vez se observa en menores de 40 años, y se estima que alrededor del 1% de las personas mayores de 60 años y el 0,3% de toda la población desarrollan esta enfermedad [112-114]. . La acumulación de cuerpos de Lewy que contienen -sinucleína y la pérdida de neuronas dopaminérgicas en la sustancia negra son los principales cambios patológicos observados en los pacientes con EP. Las características motoras comúnmente observadas en pacientes con EP incluyen temblores, rigidez y bradicinesia. Además, las características no motoras comunes observadas en pacientes con EP son disfunción del sueño, disfunción autonómica e hiposmia [115]. Aunque aún se desconocen las causas subyacentes del desarrollo de la EP, los principales factores de riesgo incluyen la edad, los factores ambientales y la genética.
6.1. Microbiota intestinal y EP en Drosophila
Se ha informado que en pacientes con EP, la abundancia de enterobacterias en el intestino se asocia positivamente con la gravedad de la inestabilidad postural [46]. Además, se ha informado que, en pacientes con EP, la abundancia intestinal de Prevotellaceae, Blautia spp., Coprococcus spp., Roseburia, Faecalibacterium spp. y Prevotella spp. Disminuye, mientras que el de E. coli, Ralstonia, Lactobacillus, Bifidobacterium, Verrucomicrobiaceae, Bacteroides, Parabacteroides, Akkermansia, Butyricimonas, Veillonella, Odoribacter, Mucispirillum y Bilophila aumenta [12,116-119]. Sin embargo, los efectos de la microbiota intestinal en la patogénesis de la EP aún no están claros. El modelo de EP de Drosophila se ha utilizado para investigar la relación entre la EP y la microbiota intestinal. De manera similar al modelo AD, existen dos sistemas modelo para estudiar la EP en Drosophila: elav-Gal4; modelo UAS-Sinucleína y el modelo mutante PINK1 (Tabla 1), como se describe a continuación.
6.2. dejar-Gal4; Modelo de mosca UAS-sinucleína
En los pacientes con EP, hay una multiplicación de mutaciones (A53T, A30P o E46K) en el gen de la sinucleína. Se han desarrollado modelos Fly PD expresando la -sinucleína mutante bajo el control del controlador elav-Gal4. Ho et al. utilizaron la proteína sinucleína humana mutante A53T bajo el controlador elav-Gal4 para desarrollar moscas con características similares a las de la EP. Estas moscas mostraron una pérdida de neuronas dopaminérgicas y disfunción locomotora que comenzó en la edad adulta.
Tratamiento con ácido 3-hidroxibenzoico (3-HBA), ácido 3,4-dihidroxibenzoico (3,4-diHBA) y 3-(3- El ácido hidroxifenil)propiónico (3- HPPA), que son metabolitos del ácido fenólico, inhibió la agregación de -sinucleína in vitro y mejoró la actividad locomotora de las moscas modelo PD. Se ha informado que Bacteroides ovatus podría convertir los flavanoles catequina y epicatequina en DHCA, 3,4-diHBA y 3-HBA. Además, B. ovatus, Eggerthella lenta y Escherichia coli podrían producir 3-HPPA, 3,4- diHBA y 3-HBA a través de procesos metabólicos independientes de la catequina y la epicatequina. Estos hallazgos implican que la microbiota intestinal podría afectar la patogénesis de la EP mediante la modulación de los flavanoles de la dieta [47].
6.3. Modelo de mosca mutante PINK1
La quinasa 1 inducida por PTEN (PINK1), una proteína quinasa serina/treonina mitocondrial codificada nuclearmente, se ha asociado con la EP. En modelos animales con mutaciones del gen PINK1, se observan cambios y síntomas asociados a la EP, como crestas mitocondriales fragmentadas, mayor sensibilidad al estrés oxidativo, defectos locomotores y pérdida neuronal dopaminérgica [113,120]. Por lo tanto, PINK1 con mutaciones de pérdida de función se utiliza para desarrollar moscas modelo de EP. Xu et al. demostró que las moscas PD con mutaciones PINK1 presentan una vida útil reducida, defectos de escalada y vuelo, músculos de vuelo degenerados y pérdida de neuronas dopaminérgicas. Se ha demostrado que el compuesto galato de epigalocatequina-3-(EGCG), un polifenol importante presente en el té verde, puede reducir los síntomas de la EP. Además, EGCG podría restaurar la diversidad de la microbiota en las moscas PD al disminuir la abundancia intestinal de Proteobacterias y aumentar la abundancia intestinal de Firmicutes y Bacteroidetes. Además, en las moscas PD, la abundancia intestinal de las bacterias Lactobacillus y Acetobacter aumenta, pero en los grupos de tratamiento con EGCG, redujo la abundancia de Acetobacter y L. plantarum y rescató los defectos locomotores. Además, el aumento de la abundancia de L. plantarum en moscas PD tratadas con EGCG redujo la eficacia de este polifenol. Por lo tanto, EGCG proporciona neuroprotección al afectar la microbiota intestinal en las moscas PD [48].
7. Trastorno del espectro autista
El trastorno del espectro autista (TEA) es un trastorno del desarrollo neurológico que se manifiesta en la primera infancia. Se caracteriza por fenotipos conductuales complejos y déficits en funciones sociales y cognitivas; sin embargo, aún se desconoce la causa exacta del TEA [121,122]. En los últimos años, se ha identificado la asociación entre factores genéticos y TEA, incluida la variación del número de copias, polimorfismos de un solo nucleótido y alteraciones epigenéticas. Además de la genética, los factores ambientales, como los contaminantes del aire y los pesticidas, también desempeñan un papel clave en el TEA [122,123]. Recientemente, el modelo de Drosophila se ha utilizado para estudiar la relación entre el TEA y la remodelación de la cromatina, la regulación postranscripcional, la síntesis/degradación de proteínas y las moléculas de adhesión celular [124]. POGZ codifica la proteína de unión a la proteína heterocromatina 1 -que es fundamental para la remodelación de la cromatina en humanos. Se cree que POGZ funciona como un regulador transcripcional, que es crucial para las funciones neuronales [125]. La regulación negativa de Row, el ortólogo de POGZ en Drosophila, en las neuronas, conduce a un déficit en la habituación, que es una forma de aprendizaje no asociativo [125]. La eucromatina histona metiltransferasa (EHMT) es otro ejemplo del gen de riesgo de TEA relacionado con la remodelación de la cromatina [126-128]. La pérdida de EHMT en Drosophila conduce a déficits de aprendizaje y memoria, y a una disminución significativa en el número de extremos dendríticos, ramificaciones de orden superior y complejidad del campo dendrítico [129].
Estudios recientes sugieren que las proteínas de la familia KDM5 son cruciales para el TEA. Las proteínas de la familia KDM5 son histonas desmetilasas que regulan la modificación de la histona H3K4me3, que está asociada con promotores de genes transcripcionalmente activos [130,131]. Se han informado mutaciones de pérdida de función en proteínas de la familia KDM5 en pacientes con TEA [132,133]. Además, los ratones knockout para kdm5c también exhiben un aprendizaje y un comportamiento social anormales debido a la reducción de la densidad de la columna [134,135]. Las moscas que portan el kdm5c humano mutante (kdm5A512P) presentan defectos de aprendizaje y memoria [136]. Además, estas moscas exhiben defectos de comportamiento y cambios en el nivel transcripcional, que son similares a un alelo mutante que suprime la actividad desmetilasa. Estos estudios sugieren que las proteínas de la familia KDM5 son fundamentales para el aprendizaje, la memoria y los comportamientos sociales de su función enzimática para la activación genética [136].
Se pueden utilizar varios ensayos de comportamiento para estudiar el TEA en el modelo de Drosophila. Los ensayos del espacio social fueron desarrollados originalmente por Simon et al. para estudiar el TEA en moscas adultas [137]. Este ensayo se lleva a cabo en una cámara de prueba con dos placas de vidrio cuadradas (18 × 18 cm) separadas por un espaciador de 0.5 cm, lo que permite que las moscas estén en el espacio. El espacio interno es triangular con una altura y una base de 15,3 cm cada uno. Las moscas se colocan en el fondo de la cámara y todas las moscas comienzan a subir desde el mismo punto de partida en el fondo. Después de 20 minutos, se mide la distancia entre los vecinos más cercanos utilizando una cámara [137]. Además de los ensayos de espacio social, el ensayo de actividad de Drosophila también se emplea comúnmente en moscas modelo de TEA [138].
Chen et al. propusieron que las proteínas KDM5 afectan el comportamiento social al regular la composición de la microbiota intestinal [49]. En humanos, la familia KDM5 se compone de cuatro miembros, mientras que en Drosophila, solo está presente un ortólogo de KDM5 [139]. Chen et al. generó las moscas deficientes en kdm5-y demostró que la pérdida de kdm5 conduce a una disfunción de la barrera intestinal y cambios en el comportamiento social. Además, la deficiencia de KDM5 en los tejidos intestinales alteró la composición de la microbiota, provocando defectos en la barrera intestinal. Sin embargo, el probiótico Lactobacillus o la administración de antibióticos a las moscas deficientes en kdm5- rescataron parcialmente los fenotipos celulares y de comportamiento y extendieron la vida útil (Tabla 1). Además, KDM5 regula transcripcionalmente la vía de señalización de la inmunodeficiencia (IMD) y mantiene la homeostasis bacteriana de una manera dependiente de la desmetilasa [134]. Estos estudios sugieren que apuntar a la microbiota intestinal podría ser un posible enfoque terapéutico clínico para el tratamiento de pacientes con TEA con señalización anormal de EMI [49].
8. Conclusiones
Dado que Drosophila alberga una comunidad microbiana intestinal simple, es fácil comprender los mecanismos por los cuales el eje microbiota-intestino-cerebro influye en comportamientos animales complicados. Además, se han desarrollado varios modelos de enfermedades neurodegenerativas en moscas que permiten a los científicos investigar la asociación entre los microbios intestinales y los trastornos neuronales, lo que podría allanar el camino hacia estudios traslacionales de probióticos.
Esta revisión enfatiza la importancia de los hallazgos recientes sobre la asociación entre la microbiota intestinal y las funciones neuronales, el comportamiento y las enfermedades neurodegenerativas en el modelo de Drosophila. La microbiota intestinal influye en la tolerancia a la temperatura, el comportamiento del sueño, la actividad locomotora, la estrategia de exogamia del huésped y el comportamiento agresivo, todos los cuales son comportamientos innatos. Aunque existen algunas contradicciones con respecto a la asociación entre la microbiota intestinal y el comportamiento, especulamos que estas diferencias podrían deberse a diferentes genotipos de huésped y dietas utilizadas en diferentes estudios. Sin embargo, los estudios sobre el sueño y las conductas locomotoras de Drosophila nos proporcionan pistas de que la microbiota intestinal actúa como un neuromodulador de los circuitos neuronales [34].
La asociación entre el comportamiento aprendido y la microbiota intestinal sigue siendo poco conocida. Silva et al. informaron que la microbiota intestinal afecta la memoria apetitiva a largo plazo, el aprendizaje del cortejo y la memoria a largo plazo del cortejo [34]. Aunque el papel del eje microbiota-intestino-cerebro en el envejecimiento aún no está claro, aprendimos de las moscas de la fruta que los cambios en el estilo de vida o la dieta podrían mejorar la esperanza de vida [40]. Además, los estudios sobre el modelo de la mosca sugieren que beber leche con kéfir y tomar formulaciones simbióticas o suplementos probióticos reduce los síntomas de la EA [41,42,44].
Se han demostrado en moscas los efectos beneficiosos de los suplementos probióticos y del té verde que contiene EGCG sobre los síntomas de la EP [116,118]. En estudios futuros, la prioridad será desarrollar nuevas configuraciones experimentales que faciliten condiciones asépticas para un control estricto y una manipulación precisa de la microbiota intestinal en las moscas de la fruta [34]. Creemos que el modelo de Drosophila puede ayudarnos a comprender el principio subyacente al eje microbiota-intestino-cerebro e identificar en breve los posibles probióticos de próxima generación (NGP).
Contribuciones de autor:
Concepción o diseño de esta obra: C.-HL y C.-LW; Redacción del manuscrito: M.-HC, S.-MH, H.-YW, Y.-CL, C.-HL y C.-LW; Elaboración de figuras y tablas: M.-HC y S.-MH; Sugerencias y discusión: W.-HT y TW; Aprobación final: todos los autores. M.-HC y S.-MH contribuyeron igualmente a este trabajo. Todos los autores han leído y aceptado la versión publicada del manuscrito.
Fondos:
Esta investigación fue financiada por subvenciones del Parque Científico, el Ministerio de Ciencia y Tecnología (109CB01), el Ministerio de Ciencia y Tecnología (109-2326-B-182-001-MY3, 109-2320-B{{6} }MY3 y 109-2320-B-182-029-MY3), Chang Gung Memorial Hospital (CMRPD1K0311-2, CMRPD1K0361 y BMRPC75) y el Proyecto Sprout de Educación Superior financiado por el Ministerio de Ciencia y Tecnología y Ministerio de Educación.
Expresiones de gratitud:
Los autores desean agradecer al editor y a los revisores por su asistencia editorial y sus valiosos comentarios. Agradecemos a los miembros de los laboratorios de CH Lai y CL Wu por sus comentarios críticos sobre este manuscrito.
Conflictos de interés:
Los autores declaran no tener ningún conflicto de intereses. Los financiadores no tuvieron ningún papel en el diseño del estudio; en la recopilación, análisis o interpretación de datos; en la redacción del manuscrito, o en la decisión de publicar los resultados.
Referencias
Konopka, RJ; Benzer, S. Mutantes de reloj de Drosophila melanogaster. Proc. Nacional. Acad. Ciencia. Estados Unidos 1971, 68, 2112–2116. [Referencia cruzada]
2. Dow, MA; Schilcher, FV Agresión y éxito de apareamiento en Drosophila melanogaster. Naturaleza 1975, 254, 511–512. [Referencia cruzada] [PubMed]
3. Hall, JC El apareamiento de una mosca. Ciencia 1994, 264, 1702-1714. [Referencia cruzada] [PubMed]
4. Tempel, BL; Bonini, N.; Dawson, DR; Quinn, WG Aprendizaje de recompensa en Drosophila normal y mutante. Proc. Nacional. Acad. Ciencia. Estados Unidos 1983, 80, 1482–1486. [Referencia cruzada] [PubMed]
5. Tully, T.; Quinn, WG Condicionamiento clásico y retención en Drosophila melanogaster normal y mutante. J.Comp. Fisiol. 1985, 157, 263–277. [Referencia cruzada] 6. Siegel, RW; Hall, JC Respuestas condicionadas en el comportamiento de cortejo de Drosophila normal y mutante. Proc. Nacional. Acad. Ciencia. Estados Unidos 1979, 76, 3430–3434. [Referencia cruzada]
7. Feany, MB; Bender, WW Un modelo de Drosophila de la enfermedad de Parkinson. Naturaleza 2000, 404, 394–398. [Referencia cruzada]
8. Cowan, CM; Pastor, D.; Mudher, A. Perspectivas de los modelos de enfermedad de Alzheimer de Drosophila. Bioquímica. Soc. Trans. 2010, 38, 988–992. [Referencia cruzada]
9. martes, Nuevo Testamento; Dat, TQ; Ly, LL; Anh, VD; Yoshida, H. Perspectivas del modelo de enfermedad de Alzheimer de Drosophila melanogaster. Frente. Biosci. 2020, 25, 134-146. [Referencia cruzada]
10. O'Hara, AM; Shanahan, F. La flora intestinal es un órgano olvidado. Representante EMBO 2006, 7, 688–693. [Referencia cruzada]
11. Fung, TC; Olson, California; Hsiao, EY Interacciones entre la microbiota, los sistemas inmunológico y nervioso en la salud y la enfermedad. Nat. Neurociencias. 2017, 20, 145-155. [Referencia cruzada] [PubMed]
12. Lin, CH; Chen, CC; Chiang, HL; Liou, JM; Chang, CM; Lu, TP; Chuang, EY; Tai, YC; Cheng, C.; Lin, HY; et al. Microbiota intestinal alterada y respuestas inflamatorias de citoquinas en pacientes con enfermedad de Parkinson. J. Neuroinflamación. 2019, 16, 129. [CrossRef] [PubMed]
13. De Palma, G.; Lynch, MD; Lu, J.; Maldita sea, VT; Deng, Y.; Jurado, J.; Umeh, G.; Miranda, PM; Pigrau Pastor, M.; Sidani, S.; et al. El trasplante de microbiota fecal de pacientes con síndrome del intestino irritable altera la función y el comportamiento intestinal en ratones receptores. Ciencia. Traducción Medicina. 2017, 9, eaf6397. [Referencia cruzada] [PubMed]
14. Hsiao, EY; McBride, suroeste; Hsien, S.; Sharon, G.; Hyde, ER; McCue, T.; Codelli, JA; Chow, J.; Reisman, SE; Petrosino, JF; et al. La microbiota modula las anomalías fisiológicas y de comportamiento asociadas con los trastornos del neurodesarrollo. Celda 2013, 155, 1451–1463. [Referencia cruzada] [PubMed]
15. Strandwitz, P. Modulación de neurotransmisores por la microbiota intestinal. Res. cerebral. 2018, 1693, 128-133. [Referencia cruzada] [PubMed]
For more information:1950477648nn@gmail.com