Capítulo 2: El factor 15 similar a Krϋppel suprime la proliferación de células mesangiales glomerulares renales a través de la mejora de la conjugación P53 SUMO1
May 12, 2022
Para más información. contactotina.xiang@wecistanche.com
3 RESULTADOS
3.1|Detección de genes de unión a KLF15-a través de ChIP-Seq en MC glomerulares renales primarias
Para identificar los genes asociados de unión directa de KLF15, realizamos un análisis de ChlP-Seq y, en última instancia, seleccionamos 2478 genes. El análisis GO de estos genes a través de la herramienta en el sitio web www.uniprot.org (Figura 1A, B) reveló términos de funciones moleculares asociados con genes 1941, términos de componentes celulares relacionados con genes 1662 y términos de procesos biológicos relacionados con genes 1766. Dado que nuestro objetivo era averiguar cómo afecta KLF15 a las MC, nos centramos en los genes relacionados con los procesos celulares. Entre los 1315 genes relacionados con procesos celulares, se encontró que 74 genes participan en procesos del ciclo celular; específicamente, estos genes participaron en el ciclo celular mitótico, la transición de fase del ciclo celular y otros procesos (Figura 1C, D). Además, analizamos los genes involucrados en el crecimiento y encontramos que estaban relacionados con el crecimiento del desarrollo, el crecimiento celular y otros tipos de crecimiento (Figura 1E).

3.2|Detección de genes regulados diferencialmente en KLF15-que sobreexpresan MC glomerulares renales usando SILAC y LC/MS
El análisis SILAC y LC/MS de HRMC que sobreexpresan KLF15 en comparación con las células parentales condujo a la identificación de 1357 proteínas. Utilizamos DAVID e IPA para adquirir los dominios GO y las rutas enriquecidas de las proteínas cuantificadas identificadas por SILAC. Curiosamente, los términos relacionados con la función biológica de muchas proteínas se encontraban entre los 30 términos GO significativamente enriquecidos, incluida la regulación del proceso metabólico de aminoácidos celulares, el complejo de proteasoma, la unión a proteínas y los términos de transcripción y traducción, todos los cuales están estrechamente relacionados con ubiquitinación (Figura 2A). La Figura 2B muestra los 30 términos principales de la ruta significativamente enriquecidos. Varios términos de procesos biológicos, incluidos los términos de proteasoma y enfermedad neurodegenerativa, también se relacionaron con la ubiquitinación.

Haga clic para saber sobrecistancheen venta con detalles
3.3|Análisis bioinformático de genes de unión a KLF15-que están potencialmente asociados con la proliferación de MC glomerulares renales
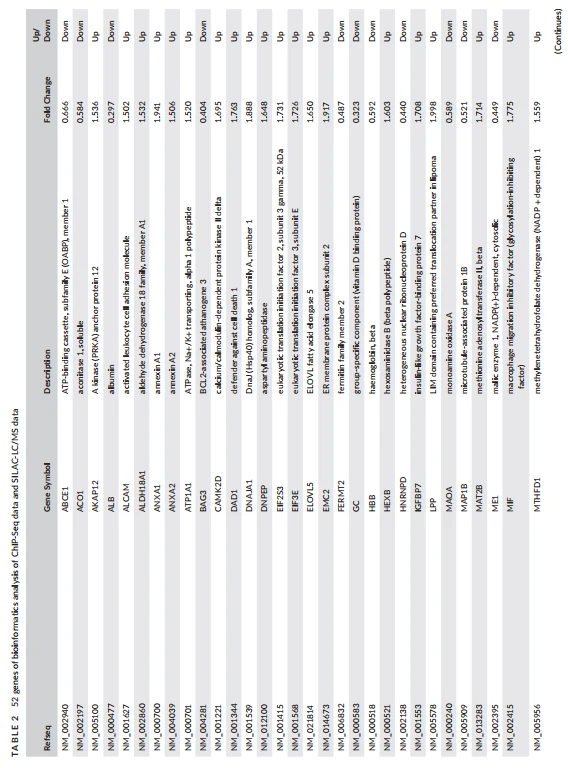
Para explorar los genes de unión a KLF15-que están potencialmente asociados conrenal glomerularProliferación de MC, realizamos un análisis bioinformático de los datos de ChIP-Seq y los datos de SILAC-LC/MS. Se seleccionaron cincuenta y dos genes (Tabla 2 y Figura 2C), y cinco de estos genes, incluidos SUMO1, factor inhibidor de la migración de macrófagos (MIF), factor de iniciación eucariota (EIF), factor de crecimiento similar a la insulina (IGF) y reticulocalbina (RCN). ), estaban estrechamente relacionados conproliferación celular. Dado que los análisis GO y de la ruta de las proteínas expresadas diferencialmente sugirieron que los genes seleccionados estaban relacionados principalmente con el proceso de ubiquitinación, concluimos que SUMO1, un miembro de la familia de proteínas similar a la ubiquitina (UBL), participa en la modificación postraduccional similar a ubiquitinación como el gen diana de KLF15.
Cantidades cada vez mayores de evidencia han indicado que HG es uno de los principales factores que inducen el desarrollo de la nefropatía diabética, y promueve la proliferación de MC y aumenta la síntesis de matriz in vitro.25 Un estudio anterior ha demostrado que PDGF-BB es esencial para la proliferación de MC que precede al desarrollo de glomeruloesclerosis en glomerulonefritis experimental.26 Después de confirmar que los MC fueron estimulados por HG o PDGF-BB in vitro, detectamos cambios en la expresión de KLF15 y SUMO1 tanto en el ARN como en la proteína
niveles y encontró que estas moléculas tenían tendencias similares (Figura 2D-l). Finalmente, determinamos que SUMO1 es el gen objetivo de KLF15.

3.4|KLF15 aumenta la expresión del gen SUMO-1 al unirse a una región promotora CACCCA-SUMO-1 de 16 pb y un motivo rico en C más A
Usamos la suite MEME (http://meme-suite.org/tools/meme) para caracterizar los motivos de unión de KLF15-de los 52 genes seleccionados de los datos de KLF15 ChlP-Seq e identificamos el motivo de unión de KLF. (Figura 3A). Además, analizamos más de mil bases aguas arriba del promotor SUMO1 y descubrimos que KLF15 podía reconocer y unirse a una secuencia de 16 pb (nucleótidos -205~-199), incluidos: CACCCA-(Figura 3B).ChIP-PCR confirmó que KLF15 está unido al promotor SUMO1, y los resultados mostraron una expresión significativamente mayor de SUMO1 en el grupo de anticuerpos anti-KLF15 que en el grupo de control de fondo (Figura 3C).
Además, realizamos un ensayo de reportero de luciferasa dual para confirmar la relación de orientación entre SUMO1 y KLF15. El grupo promotor SUMO1 de tipo salvaje mostró una mayor actividad de luciferasa que el vector pGL3 y los grupos mutantes en HRMC, y la actividad aumentó significativamente por la sobreexpresión de KLF15. Las mejoras en la actividad de la luciferasa se revirtieron mediante la transfección con un plásmido que expresaba la región promotora mutante (Figura 3D). En conjunto, estos datos sugieren que SUMO1 es un objetivo transcripcional directo de KLF15.


3.5|Detección de P53 como sustrato de SUMOylación de SUMO1
Las modificaciones SUMO son modificaciones postraduccionales ampliamente expresadas en eucariotas. La conjugación reversible de estas modificaciones a las proteínas del sustrato también se conoce como SUMOilación, que juega un papel importante en la regulación de las funciones de las proteínas diana y además participa en varios procesos biológicos, como el transporte nucleocitoplasmático, la regulación transcripcional, la apoptosis, la estabilización de proteínas, las respuestas al estrés y progresión del ciclo celular.27 Para explorar las moléculas de señalización aguas abajo conjugadas directamente por SUMO1, realizamos un análisis de red de SUMO1 usando la base de datos IPA, y los datos mostraron que SUMO1 podría conjugarse directamente con P53, APP, JUN y AKT, entre otros proteínas (Figura 4A-C). Inicialmente, seleccionamos P53 como una molécula aguas abajo de SUMO1 porque es una proteína bien conocida que está estrechamente relacionada con la proliferación celular.28,29 Además, usamos el software SUMOsp para predecir las posibles secuencias de SUMOilación de P53 en varias especies y descubrimos que P53 tenía la secuencia de SUMOilación( Figura 4D). Para determinar si P53 está realmente modificado por SUMOylation, transfectamos transitoriamente HRMC con un plásmido de sobreexpresión de SUMO1 o siRNA de SUMO1. Los resultados de IP y Western blot revelaron tendencias en los cambios de expresión de SUMO1-P53 y P53 que eran consistentes con los cambios en SUMO1 (Figura 4E-J). Estos datos indican que P53 es un sustrato de SUMOilación de SUMO1.


3.6 |KLF15 inhibe la proliferación de MC al promover la expresión de SUMO1 y la SUMOilación de P53
Para establecer la regulación de la SUMOylación de P53 y la proliferación de MC por KLF15 y SUMO1, intervinimos con la expresión de KLF15 o SUMO1 en HRMC y tratamos HRMC con PDGF-BB. Entre las HRMC tratadas con PDGF-BB, las células transfectadas con el plásmido de sobreexpresión KLF15 exhibieron una mayor expresión de SUMO1-P53, P53, KLF15 y SUMO1 que las células transfectadas con el plásmido de control KLF15. Los mismos cambios en SUMO1-P53, P53 y SUMO1 se encontraron en las células transfectadas con plásmido con sobreexpresión de SUMO1, mientras que la expresión de KLF15 no cambió en estas células (Figura 5A-F). PDGF-BB es uno de los factores de crecimiento más efectivos de MC descritos hasta ahora, y se observó una respuesta proliferativa de HRMC a PDGF-BB. Como se muestra en la Figura 5G, H, el porcentaje de células positivas para EdU aumentó significativamente mediante la administración de PDGF-BB recombinante. Los resultados de la tinción de EdU indicaron que la sobreexpresión de KLF15 y SUMO1 inhibió la proliferación celular inducida por PDGF-BB (Figura 5G, H).

Para obtener más información sobre las funciones de KLF15 y SUMO1 en la proliferación de HRMC, transfectamos células solo con ARNip de SUMO1 o las cotransfectamos con ARNip de SUMO1 y un plásmido de sobreexpresión de KLF15. La regulación a la baja de SUMO1 no afectó la expresión de KLF15, pero los niveles de expresión de SUMO1-P53 y P53 obviamente disminuyeron después de la transfección de ARNip de SUMO1 (Figura 6A-C). Además, cuando se inhibía la expresión de SUMO1, los niveles de expresión de SUMO1-P53 y P53 también se suprimían incluso en células que sobreexpresaban KLF15 (Figura 6D-F). Luego, se evaluó la proliferación de MC usando un ensayo de tinción EdU. SUMO1 RNAi mejoró el efecto proliferativo de PDGF-BBon HRMC, y el grupo cotransfectado con el plásmido de sobreexpresión de KLF15 y el siRNA de SUMO1 tuvo más células positivas para EdU que el grupo cotransfectado con el plásmido de sobreexpresión y el siRNA de control de secuencia híbrida (Figura 6G, H) . Por lo tanto, concluimos que KLF15 suprime la proliferación de MC al mejorar la SUMOilación de P53.

3.7|La expresión global de SUMO1 y P53 en MC glomerulares se correlaciona negativamente con la proliferación de MC en nefritis Thy-1 de rata
La nefritis anti-Thy1 es un modelo clásico de glomerulonefritis proliferativa mesangial autolimitada con una fase proliferativa y una fase de recuperación. Inyectamos un anticuerpo Thy1 en ratas Wistar para crear este modelo. Tanto el nitrógeno ureico sérico como la creatinina no tienen cambios significativos entre las ratas de control y las ratas modelo (Figura S1). Se observó una marcada proliferación mesangial y acumulación de ECM durante la fase proliferativa (días 5 y 7) en las ratas modelo, y el número de MC disminuyó durante la fase de recuperación en el día 10 (Figura 7A). También detectamos los cambios de expresión en el marcador de proliferación celular PCNA por IHC (Figura 7A, B). Los niveles de PCNA aumentaron el día 5, alcanzaron su punto máximo el día 7 y disminuyeron el día 10 (Figura 7F). El análisis de transferencia Western mostró que la expresión proteica de P53, SUMO1 y KLF15 en glomérulos aislados fue menor en los grupos modelo que en el grupo control (Figura 7C, D), de acuerdo con los resultados inmunohistoquímicos (Figura 7E, F). Estos resultados indican que la proliferación anormal de MC en ratas modelo anti-Thy1 está relacionada con el bajo nivel de expresión de KLF15 y SUMO1. Se espera que interferir con la expresión de estas moléculas alivie el fenotipo patológico en ratas.


4. DISCUSIÓN
losglomérulosson las unidades de filtración delriñón. La interrupción de la función glomerular puede ser causada por una patología glomerular primaria o puede ser secundaria a enfermedades sistémicas. Se observaron cambios mesangiales después de la lesión glomerular, incluida la hiperproliferación de MC seguida de una producción excesiva de ECM (expansión mesangial) y producción de quimioatrayente para células inflamatorias. Por lo tanto, la modulación de las respuestas de MC, especialmente la proliferación anormal, es un enfoque terapéutico novedoso. KLF15 es una proteína que juega un papel regulador como factor de transcripción al unirse a secuencias de ADN específicas. Muchos estudios han informado que KLF15 está involucrado en la regulación de la proliferación celular. Por ejemplo, se ha encontrado que KLF15 participa en la inhibición de las vías de señalización relacionadas con la proliferación de MC,15,30 pero su gen diana directo no se ha informado en la literatura. Por lo tanto, este estudio involucró principalmente la detección conjunta de los niveles de transcripción y traducción para identificar el gen diana directo de KLF15.
KLF15 regula diferentes genes en diferentes especies y en diferentes tejidos y órganos. En el proceso de regulación de la proliferación de MC, KLF15 afecta la expresión de múltiples genes y participa en múltiples vías.131,32 Para explorar los genes diana directos de KLF15, usamos ChIP-Seg.Klein RH y sus colegas usaron ChlP-seq tecnología para estudiar la regulación de KLF7 en la diferenciación de las células epiteliales de la córnea.33 Ying M et al utilizaron esta técnica para estudiar el efecto inhibidor de KLF9 en la pluripotencialidad del glioblastoma.34 En comparación con ChlP-chip, ChIP-Seq permite un verdadero análisis del genoma completo con mayor resolución, mayor sensibilidad de detección y menor demanda de tamaño de muestra.35 Usamos ChP para obtener los fragmentos de ADN unidos directamente por KLF15, y después de la comparación y el análisis con GenBank, seleccionamos 2478 posibles genes objetivo. Mediante GO y análisis de vías, identificamos muchos genes diana implicados en el ciclo celular y los procesos de proliferación.
Los experimentos de ChlP-Seq requieren PCR para la amplificación de la señal de detección, y es inevitable cierto grado de sesgo durante el proceso de amplificación. Además, ChIP-Seq obtiene solo los genes a los que KLF15 puede unirse y no indica los cambios que ocurren en la expresión de estos genes cuando cambia la expresión de KLF15. Utilizamos el análisis proteómico SILAC-LC/MS para compensar estas deficiencias. Esta técnica proporciona información sobre todas las proteínas cuya expresión cambia al ser reguladas por KLF15, incluidas las proteínas reguladas directamente por KLF15 y las proteínas que son reguladas indirectamente o modificadas postraduccionalmente. Las HRMC se cultivaron usando SILAC, y KLF15 se sobreexpresó en las células a través de la transfección de plásmidos. Las proteínas se recogieron para la detección por LC/MS y se obtuvieron 1357 proteínas expresadas diferencialmente. Los análisis GO y de vías revelaron que algunas de las proteínas expresadas diferencialmente estaban implicadas en la ubiquitinación. Los datos de genes y proteínas se cruzaron. Se eliminaron los genes no relacionados con el propósito de la investigación y los genes no regulados directamente por KLF15; finalmente, se seleccionaron 52 genes. Entre estos, se seleccionaron los cinco genes con las diferencias de expresión más obvias que estaban más estrechamente relacionados con la proliferación. Teniendo en cuenta los resultados combinados del análisis de la vía, el análisis de la expresión de SUMO1 y KLF15 en ensayos de indicadores de proliferación de HRMC, ChlP-PCR y luciferasa dual, se seleccionó la proteína SUMO1 como el gen diana de KLF15.
Además de la ubiquitina, se está identificando un número cada vez mayor de proteínas UBL,3637 incluida SUMO,38 expresada en células precursoras neuronales, 8(NEDD8)3940 regulada negativamente en el desarrollo y el gen 15(ISG15)41 estimulado por interferón. Estas proteínas modificadoras regulan poderosamente una variedad de procesos biológicos. La adición covalente de SUMO a los sustratos, denominada SUMOilación, es una modificación postraduccional involucrada en una serie de procesos celulares, incluido el transporte nuclear-citosólico, la regulación transcripcional, la apoptosis, el control de la estabilidad de las proteínas, las respuestas al estrés y la progresión del ciclo celular.27 unido a residuos de lisina aceptores de sustratos proteicos que albergan una secuencia consenso y contribuye a la regulación de las interacciones proteína-proteína, así como a la compartimentación subcelular y la estabilidad de la proteína.2 sUMO1, como miembro de la familia SUMOS, puede afectar la proliferación celular modificando el sustrato y la estabilización de las proteínas reguladoras del ciclo celular.43 Por lo tanto, en combinación con el informe de la literatura y los resultados integrales de detección y análisis, nos enfocamos en cómo KLF15 regula el efecto de SUMO1 en la proliferación de células mesangiales.
Para identificar los sustratos de SUMO1, realizamos un análisis de red de SUMO1 utilizando la base de datos IPA y el software SUMOsp. En combinación con la investigación publicada sobre P53, nuestros datos de selección iniciales sugirieron que P53 era una molécula corriente abajo de SUMO1 con la secuencia de SUMOilación YKxD/E. Estudios previos han demostrado que P53 era un sustrato de SUMOylation,45 y la conjugación mejorada de P53 SUMO1 promovió la estabilidad y la actividad de P53 e indujo la senescencia.46 En nuestro estudio, la interferencia con la expresión de SUMO1 en HRMC produjo las mismas tendencias de cambio en SUMO1-P53 y P53, lo que indica que P53 era un sustrato de SUMOilación de SUMO1.
La evidencia emergente ha indicado que la SUMOylación y la de-SUMOylación desempeñan funciones en numerosas enfermedades nefropáticas, como la disgenesia renal, el carcinoma renal, la enfermedad glomerular, la apoptosis de los podocitos y la hipertonicidad de la médula renal, la lesión renal aguda y la nefrolitiasis.7-51 Para aclarar la relación entre KLF15, SUMO1, P53 SUMOylation y proliferación de MC, realizamos una serie de tratamientos de transfección en células que habían sufrido proliferación inducida por PDGF-BB. La sobreexpresión de KLF15 aumentó la expresión de SUMO1, mientras que la sobreexpresión de SUMO1 no afectó la expresión de KLF15. La sobreexpresión de KLF15 o SUMO1 aumentó la SUMOilación de P53 y antagonizó la proliferación celular inducida por PDGF-BB. Cuando se inhibió la expresión de SUMO1, también se inhibió la SUMOilación de P53 y KLF15 perdió su efecto antagónico sobre la proliferación celular. En vivo. la proliferación de MC aumentó gradualmente con el agravamiento de la nefritis proliferativa mesangial, mientras que la expresión de KLF15, SUMO1 y P53 disminuyó significativamente. Teniendo en cuenta las observaciones integradas en células y tejidos, concluimos preliminarmente que KLF15 regula la SUMOilación de P53 a través de SUMO1, lo que inhibe la proliferación de MC.

5. CONCLUSIONES
Algunos estudios han indicado que KLF15 juega un papel importante en la regulación de la proliferación de MC. En este trabajo, exploramos los mecanismos de supresión de la proliferación de MC mediados por este factor de transcripción. Identificamos SUMO1 como el objetivo principal de KLF15 en MC a través de análisis bioinformáticos que involucran ChIP-Seq y SILAC-LC/MS. Además, con la ayuda de la base de datos IPA y el software SUMOsp, determinamos que P53 era un sustrato directo de SUMO1. Los experimentos in vitro e in vivo confirmaron que KLF15 podría promover la expresión de SUMO1 y la SUMOylación de P53 y luego inhibir la proliferación de MC (Figura S2). Estos resultados contribuyen a la comprensión del papel regulador de KLF15 en la proliferación de MC y proporcionan una base teórica para encontrar nuevos tratamientos para las enfermedades renales relacionadas con la proliferación de MC.