

Efectos de las interacciones del lactato y el monóxido de carbono sobre la neuroprotección y la neuropreservación, parte 2
Jun 17, 2024
Vía de oxidación de los ácidos grasos
Los lípidos (clasificados en cinco subcategorías principales: ácidos grasos, triglicéridos, esfingolípidos, lípidos esteroles y fosfolípidos) son importantes para el funcionamiento y desarrollo normal del SNC y sirven como moléculas bioactivas, sustratos energéticos, actuando como componentes básicos o una combinación de estos.
Existe una estrecha relación entre desarrollo y memoria. En la vida de una persona, el desarrollo no sólo es importante para la salud física, la inteligencia y el desarrollo de la personalidad, sino también para la memoria.
En los primeros años después del nacimiento, el cerebro del bebé se desarrolla rápidamente y este es un período particularmente importante de desarrollo cerebral. Durante este período, las neuronas del cerebro establecerán conexiones, y estas conexiones pueden mejorar la capacidad de procesamiento de información del cerebro. Por eso es tan importante la educación temprana en la infancia y la primera infancia.
Al mismo tiempo, la memoria también se ve afectada por este período. En este momento, el cerebro de los niños tiene una gran capacidad para absorber información externa, por lo que pueden recordar muchas cosas fácilmente. Muchas personas tienen recuerdos de la infancia claros y detallados, lo que se debe a la influencia de la etapa de desarrollo del cerebro durante este período.
En el proceso de crecimiento futuro, continuar manteniendo buenos hábitos de vida y una vida regular favorece la salud física y el desarrollo, y también es una forma importante de mejorar la memoria. Por ejemplo, ejercicio regular, tiempo de sueño adecuado y hábitos alimentarios saludables. Estos buenos hábitos pueden ayudar a las personas a mantenerse saludables y mejorar la inteligencia y la memoria.
En definitiva, desarrollo y memoria son inseparables. La educación temprana y el proceso de crecimiento tienen un impacto importante en el desarrollo del cerebro. Mantener un estilo de vida saludable puede ayudar a las personas a mantener una buena condición física y mejorar la memoria. Siempre que prestemos siempre atención al desarrollo y la salud, y trabajemos duro para ejercitar y mantener nuestro cuerpo, podremos crear una vida plena, feliz y saludable para nosotros mismos. Se puede ver que necesitamos mejorar la memoria, y Cistanche puede mejorar significativamente la memoria porque Cistanche tiene efectos antioxidantes, antiinflamatorios y antienvejecimiento, que pueden ayudar a reducir la oxidación y las reacciones inflamatorias en el cerebro, protegiendo así la salud del sistema nervioso. Además, Cistanche también puede promover el crecimiento y la reparación de las células nerviosas, mejorando así la conectividad y la función de las redes neuronales. Estos efectos pueden ayudar a mejorar la memoria, la capacidad de aprendizaje y la velocidad del pensamiento, y también pueden prevenir la aparición de disfunciones cognitivas y enfermedades neurodegenerativas.
Haz clic en conocer 10 formas de mejorar la memoria
Fatty acid imbalance affects CNS development and function. Fatty acids are the essential component of all lipids and consist of a carbon chain that ends in a carboxylic acid functional group (subclassified as short-chain fatty acids (2–4 carbons), medium-chain fatty acids (6–12 carbons), long-chain fatty acids (14–18 carbons), and very long-chain fatty acids with 18+ carbons.) If saturated, all of the carbons have hydrogen atoms and single bonds only exist between carbons whereas unsaturated fatty acids have carbon chains where a double bond has been introduced (mono- versus polyunsaturated defines whether there is more than one double bond.) Fatty acid β-oxidation results in the formation of acetyl-CoA as noted in the equation: β-oxidation of fatty acids->->->->->- >->->Acetil-CoA (Figura 1).
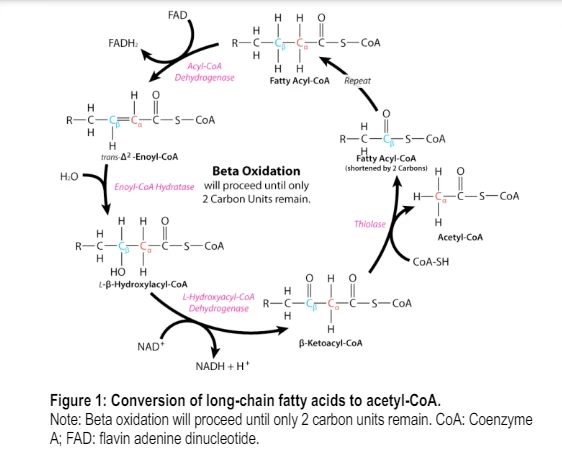
La oxidación mitocondrial de los ácidos grasos produce energía: una secuencia repetida de cuatro reacciones catalizadas por la acil-CoAdeshidrogenasa, la enoil-CoA tiolasa, la hidroxiacil-CoA deshidrogenasa y la cetoacil-CoA tiolasa.
El acetil-CoA da como resultado una molécula de acilo graso que es dos carbonos más corta; el ciclo de reacción se repite (Figura 1). Con un número impar de átomos de carbono, el producto final es propionil-CoA. El acetil-CoA entra en el ciclo del ácido tricarboxílico y se puede generar piruvato y, posiblemente, lactato. El propionil-CoA se convierte en succinil-CoA (sustrato para la gluconeogénesis mediante la formación de oxaloacetato).
Se puede generar piruvato y, posiblemente, lactato.46-50La acil-CoA grasa citoplasmática se convierte en acil-carnitina grasa mediante la carnitina-acil-transferasa I, una enzima de la valva interna de la membrana mitocondrial externa. La acilcarnitina grasa es luego transportada por un antipuerto a cambio de carnitina libre a la superficie interna de la membrana mitocondrial interna.
La carnitina acil transferasa II invierte el proceso, produciendo acil-CoA grasa y carnitina. Este mecanismo de lanzadera sólo es necesario para los ácidos grasos de cadena más larga, como se indica a continuación:
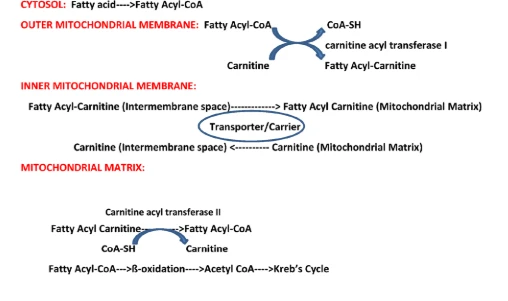
Los ácidos grasos de cadena media y corta son independientes de la carnitina. Atraviesan las membranas mitocondriales y se activan en la mitocondria. En las mitocondrias y el citosol de los astrocitos y las neuronas, los cuatro pasos de la oxidación incluyen la deshidrogenación de la acil-CoA grasa para formar un doble enlace trans entre el carbono (requiere acil-CoA deshidrogenasas de cadena corta, media y larga, la eliminación de electrones se transfiere al dinucleótido de flavina adenina) , hidratación del doble enlace, deshidrogenación del grupo -hidroxilo a una cetona (electrón eliminado transferido a NAD+), acilación (adición de CoA y producción de acetil-CoA.

ciclo de la urea
While the urea cycle and the tricarboxylic acid cycle (TCA) are independent cycles, they are linked. Fumarate that is produced in the cycle is an intermediate in the TCA cycle, metabolized to malate, and then to pyruvate and lactate (Figure 2). Urea cycle - Citrulline->->->argininosuccinate->->- >arginine and fumarate TCA cycle - Fumarate->->->malato.51-54
Vía de las pentosas fosfato
La vía de las pentosas fosfato, que tiene lugar en el citosol, es más anabólica que catabólica, genera equivalentes reductores, produce ribosa 5-fosfato (necesaria para la síntesis de nucleótidos y ácidos nucleicos) y eritrosa 4-fosfato (necesaria para la síntesis de aminoácidos aromáticos), y está ligada a la glucólisis. Durante la fase oxidativa (irreversible), la glucosa 6-fosfato se metaboliza a ribulosa 5-fosfato. Este último puede metabolizarse a fructosa 6-fosfato durante la fase no oxidativa (reversible).

Fosforilación oxidativa
La respiración celular depende de la glucólisis (citosol), que da como resultado piruvato, la transformación del piruvato en acetilCoA (mitocondrias), el ciclo del ácido cítrico (el acetil-CoA se modifica en las mitocondrias para producir precursores de energía) y la fosforilación oxidativa (o fosforilación ligada al transporte de electrones). donde el transporte de electrones desde los precursores de energía del ciclo del ácido cítrico conduce a la fosforilación del difosfato de adenosina produciendo ATP (ocurre en las mitocondrias).
El desacoplamiento entre la glucólisis y la fosforilación oxidativa implica la partición entre piruvato (el sustrato principal para la fosforilación oxidativa impulsada por la glucosa) y lactato. En las mitocondrias, el complejo II reduce el succinato a fumarato.
Este último ingresa al ciclo de Krebs y se puede producir piruvato (y luego lactato a través de la lactato deshidrogenasa (LDH)).58-60 La producción de óxido nítrico también inhibe la cadena respiratoria mitocondrial en la citocromo coxidasa en los astrocitos y la mayoría de la glucosa consumida se libera como lactato. 61
ciclo del ácido cítrico
La oxidación de acetil-CoA a CO2 mediante el ciclo del ácido cítrico es el proceso central en la producción de energía. El proceso también da como resultado la formación de intermediarios que pueden convertirse principalmente en ácidos grasos, derivados de glucosa, ácido aminobutírico (GABA), glutamato, glutamina y aspartato.

El equilibrio entre los dos procesos bioquímicos relacionados con el ciclo (anaplerosis y cataplerosis) es esencial para la fisiología normal del SNC.62 La carboxilación del piruvato es importante para la síntesis neta de glutamato, GABA y aspartato (anaplerosis) y está asociada con la actividad cerebral: el flujo a través de la piruvatocarboxilasa es mayor en estado despierto en comparación con la anestesia profunda con fenobarbital.63
Sin embargo, el cerebro no puede metabolizar completamente las moléculas de carbono 4- y 5-: deben eliminarse mediante cataplerosis, un proceso que puede estar relacionado con procesos biosintéticos que dan como resultado la síntesis de ácidos grasos y aminoácidos y la gluconeogénesis.
El glutamato parece ser la molécula que conecta la anaplerosis y la cataplerosis en el ciclo de Krebs.
La enzima citosólica málica y la fosfoenolpiruvato carboxiquinasa de los astrocitos convierten el malato y el oxaloacetato en lactato, que abandona el cerebro (sangre o sistema periventricular). La salida de lactato permite la carboxilación continua del piruvato.64-66
Movimiento del lactato en el cerebroLanzaderas de lactato
La hipótesis de la lanzadera de lactato describe el movimiento del lactato dentro y entre las células y se basa en la observación de que el lactato se forma y utiliza continuamente en diversas células en condiciones tanto anaeróbicas como aeróbicas.
La interconversión de lactato y piruvato se produce a través de la lactato deshidrogenasa y se produce en sitios con altas tasas de glucólisis y glucogenólisis. El lactato juega un papel importante como transportador y puede transportarse a sitios adyacentes o remotos y puede usarse como precursor gluconeogénico o sustrato para la oxidación.
La hipótesis también aborda el papel del lactato en el control lipolítico, la señalización redox y la expresión genética y afirma el papel del lactato en la señalización celular, el vínculo endocrino/autocrino/paracrino entre el metabolismo oxidativo y glucolítico y la entrega de sustratos gluconeogénicos y oxidativos. El L-lactato se considera el vínculo entre las vías aeróbica y glucolítica (sustrato para la respiración mitocondrial y producto de la glucólisis).
Las células productoras de lactato glicolítico proporcionan lactato que es absorbido por la sangre y el retículo mitocondrial (células consumidoras de lactato oxidativo). 67,68 El anión está metabólicamente disponible en condiciones aeróbicas y es importante en un circuito de retroalimentación complicado: la producción de lactato se promueve con una disminución de los niveles de ATP, lo que conduce a a la capacidad de las células para promover la homeostasis del ATP.
Se sabe que el estado redox, el gradiente de concentración y/o el gradiente de pH impulsan estos transbordadores.6 Las interacciones entre células de lactato son importantes para la función del SNC. Existe una función fisiológica anormal y la relación entre los astrocitos y las neuronas: la lanzadera de lactato astrocito-neurona.
Un aumento en la actividad sináptica o condiciones bajas de glucosa resultan en la transferencia de lactato de los astrocitos a las neuronas, lo que sostiene el metabolismo oxidativo neuronal.
Los astrocitos expresan MCT4 (un transportador de baja afinidad por el lactato, lo que sugiere que el lactato producido por la glucólisis se exporta). Las neuronas expresan MCT2 (un transportador de alta afinidad por el lactato).
La hipótesis es que los astrocitos producen lactato, que luego es absorbido por las neuronas y oxidado para obtener energía.69-71 También existen otras lanzaderas de lactato entre células del SNC, entre las que se incluyen la microglía y su utilización preferencial de lactato en condiciones patológicas, la actividad de lanzaderas de lactato en lesiones cerebrales traumáticas y enfermedades neurodegenerativas, y la lanzadera de lactato astrocito-microglía.6,15,72,73.
De célula a célula, cuando se acoplan a vías intracelulares, las lanzaderas de lactato permiten la presencia simultánea de vías glucolíticas (es decir, glucosa a lactato) y oxidativas (es decir, lactato a piruvato a acetil-CoA). Se cree que esta vía intracelular del lactato (intercambio de lactato y conversión en piruvato manteniendo el equilibrio redox en el citosol y las mitocondrias) existe entre el citosol y las mitocondrias y entre el citosol y los peroxisomas.15,74
sistema glifático
Alrededor del 60% al 68% del contenido total de agua del cerebro se encuentra dentro del espacio intracelular y del 32% al 40% en el espacio extracelular (12% al 20% en el líquido intersticial (ISF), 10% en el líquido cefalorraquídeo (LCR), 10 % en la sangre.) El LCR, formado por los plexos coroideos (sin BBB), depende del movimiento osmótico e hidrostático del líquido, cristaloides y coloides desde el plasma hacia el estroma.
El sistema glifático, parte integral del equilibrio de líquidos del SNC y la eliminación de desechos, tiene canales perivasculares dependientes de la glia formados por células astrogliales, depende de los 4 canales de agua de acuaporina (AQP) en los pies de los astrocitos, tiene vías de aclaramiento perivenoso y de influjo periarterial, está conectado a el sistema linfático asociado con la duramadre, los nervios craneales y los vasos que se encuentran en las salidas del cráneo, y permite la eliminación continua del LSI y del LCR de productos moleculares potencialmente dañinos.
La actividad aumenta durante la anestesia general y el sueño y disminuye con los accidentes cerebrovasculares, la diabetes mellitus, la enfermedad de Alzheimer y el envejecimiento.75-82 Lactato del SNC (más alto mientras está despierto que durante el sueño y asociado con una reducción de la glucólisis cerebral), un biomarcador del ciclo de sueño-vigilia , es exportado como lactato por el sistema glifático (la concentración de lactato cerebral se correlaciona inversamente con el aclaramiento linfático-linfático y la relación lactato/piruvato resultante (y el potencial redox NADH/NAD)) y disminuye rápidamente con el inicio del sueño.
La eliminación de lactato durante el sueño combinada con la falta de eliminación durante la vigilia da como resultado un aumento del estado redox con la vigilia (en relación con el sueño).83-85
ELIMINACIÓN DE LACTATO DEL SISTEMA NERVIOSO CENTRAL
Mantener un nivel normal de lactato en el SNC depende de su utilización frente a su acumulación. Mientras que el cerebro en reposo libera lactato (la liberación desde diversas estructuras cerebrales difiere en condiciones basales), esto aumenta gradualmente con la activación del cerebro.86
La eliminación total de lactato está determinada por su metabolismo en el SNC, su excreción a través de los capilares o a través del LCR; los sistemas de eliminación pueden ser a través del LCR, el FIS dentro del SNC y la sangre.86-88 Se han planteado la hipótesis de tres modelos principales de eliminación de lactato a través de los fluidos cerebrales. :1) los linfáticos meníngeos,89 el sistema linfático,83,90 y el sistema periarterial intramural.91,92 El sistema linfático es parte del sistema vascular.
Periféricamente, el plasma se filtra a través del endotelio vascular de los capilares en el espacio extracelular; más del 80% se reabsorbe en los vasos venosos y el resto en el líquido extracelular o FSI.
Luego, el ISF se filtra nuevamente hacia los linfáticos, que lo devuelven al sistema venoso. En el SNC, el volumen de líquido cerebral es fijo, existe una restricción en la BBB de la filtración de líquido del plasma al cerebro y no existe un acuerdo común sobre la formación de FSI en el cerebro.
Los tres modelos de formación de LCR que se han propuesto incluyen la producción por metabolismo cerebral, la secreción capilar cerebral de solutos y el LCR como una fracción del LCR reciclado (fluye desde el plexo coroideo hacia el espacio subaracnoideo y luego hacia el espacio perivascular donde el LCR se fusiona con el LCR que ha sido generado por el cerebro). capilares): la comunicación linfática con los fluidos cerebrales afecta la eliminación del lactato, así como la de los productos de desecho, bacterias, virus, toxinas, etc.93-95
La extensa red de vasos linfáticos meníngeos que ayuda con la depuración macromolecular y el tráfico de células inmunitarias en el SNC también se comunica con el sistema linfático, un sistema que permite la perfusión del SNC por el FIS y el LCR y complementa la depuración periarterial intramural.96-98
EXCESO O MUY POCO LACTATO
El mantenimiento de los niveles de lactato es necesario para la salud y el bienestar normales: un exceso o una cantidad relativamente insuficiente puede provocar cambios en el metabolismo corporal. Las fluctuaciones generalmente no se deben a niveles bajos de oxígeno, ya que puede ocurrir hiperlactatemia con perfusión/oxigenación tisular normal e hipolactatemia relativa con perfusión/oxigenación tisular deficiente.
Aunque la producción de lactato (el principal precursor gluconeogénico, una molécula de señalización y una importante fuente de energía) ocurre normalmente durante el reposo, aumenta con sepsis, pancreatitis, traumatismos, insuficiencia cardíaca, etc.68,99-102 La acidosis láctica resultante, la sobreproducción o la subutilización del ácido láctico, cuando el cuerpo no puede adaptarse a estos cambios, se asocia con una acumulación de ácido y un desequilibrio del nivel de pH del cuerpo.

Los niveles elevados se utilizan como biomarcador de riesgo y terapia, y los niveles altos se asocian con un mayor riesgo de muerte independientemente de la insuficiencia orgánica y el shock.103-105 Se produce reprogramación metabólica celular, inflexibilidad metabólica y una disminución de la proliferación celular.106-111 Los efectos sobre el sistema cardiovascular pueden provocar una hiporreactividad del sistema vascular a los vasopresores y una reducción de la contractilidad cardíaca. La relación NAD+/NADH, la producción de especies reactivas de oxígeno, la regulación de genes, la liberación del factor de crecimiento endotelial vascular/interleucina-1/factor de crecimiento transformante- y la activación de las sirtuinas están afectadas.101,109-112 Láctico severo Se ha sugerido que la acidosis es un requisito previo para el infarto cerebral por isquemia completa.
Esto puede deberse al elevado metabolismo de la glucosa cerebral en lactato y su efecto sobre los astrocitos, ya que se considera que el exceso de lactato es perjudicial para el SNC y puede afectar la recuperación de un trauma cerebral, anoxia, epilepsia e isquemia.102 Sin embargo, el metabolismo y las interacciones celulares determinan si el lactato se desperdicia. producto o un sustrato útil.
Mientras que las patologías agudas y crónicas alteran el metabolismo cerebral dando como resultado cambios en la concentración de lactato, el lactato es un combustible preferido sobre la glucosa en las preparaciones cerebrales.32,112,113 Cuando hay un aumento del lactato en sangre en humanos que hacen ejercicio (o cuando se suministra lactato exógeno), el lactato es el principal precursor gluconeogénico y sustituto de Glucosa como sustrato energético: aumenta la absorción de lactato cerebral.
La mejora de la función cognitiva en ratas con lesión cerebral que recibieron terapia con lactato intravenoso y los rápidos aumentos de la expresión de la proteína MCT de lactato en cerebros de ratas después de una lesión cerebral traumática sugieren que el metabolismo del lactato en humanos después de una lesión cerebral traumática es importante para la recuperación. Se están redefiniendo las funciones del lactato en el metabolismo cerebral normal y en la patología del SNC.
El lactato apoya la gluconeogénesis hepática andrenal, que es importante para el metabolismo cerebral, la producción por parte del cuerpo suministra indirectamente glucosa al cerebro lesionado, el lactato marcado isotópicamente es consumido y utilizado directamente por el cerebro humano lesionado, y la infusión de lactato exógeno aumenta el suministro de sustrato cerebral cuando la glucólisis se ve afectada.{{ 0}} Los cambios de lactato, que reflejan la salud metabólica general, se ven afectados por la hemooxigenasa (y el CO) y afectan la salud del SNC.
EFECTOS DEL MONÓXIDO DE CARBONO SOBRE EL LACTATO EN EL SISTEMA NERVIOSO CENTRAL
La concentración de lactato extracelular del SNC aumenta con la neuropatología y con la activación del SNC; ambos dan como resultado una liberación significativa de lactato.117 Este último, que puede estar asociado con excitotoxicidad, puede provocar daño neuronal y muerte, ya que la excitotoxicidad es un componente importante de la patología del SNC.{{2} }L-lactato (protege las neuronas contra la excitotoxicidad, un regulador y metabolito en el SNC, regula la expresión de la plasticidad sináptica y los genes de neuroprotección en las neuronas corticales, promueve la angiogénesis/escape inmune/migración celular, sirve como sustrato ahorrador de glucosa, regula el flujo sanguíneo cerebral ,y juega un papel importante en el aprendizaje y la memoria)123-127actúa como molécula de señalización en estados patológicos,123-125 es neuroprotector y sus efectos están dirigidos a la neurotransmisión.
Se ha descubierto que el CO modula los niveles de L-lactato en los astrocitos, lo que proporciona evidencia de que los sistemas neuroprotectores hemo oxigenasa y L-lactato interactúan. 8 La relación entre el L-lactato del SNC y el sistema hemo oxigenasa/CO es compleja. Las propiedades citoprotectoras de las hemooxigenasas se atribuyen a la producción de CO.
La producción endógena se origina a partir del metabolismo del hemo (al menos 86%) y de fuentes independientes del hemo que incluyen la peroxidación lipídica catalizada por ascorbato de hierro de lípidos y fosfolípidos microsomales, la fotooxidación de compuestos orgánicos, la oxidación auto y enzimática de fenoles y la reducción. del citocromo b5.
Las isoenzimas hemo oxigenasa catalizan el primer paso y limitante de la velocidad en la degradación del hemo a CO, hierro y biliverdina. Los efectos neuroprotectores del CO se encuentran en el metabolismo (apoyo metabólico, regulación del flujo sanguíneo local, síntesis/almacenamiento de glucógeno, formación del sistema neuroglial). -unidad vascular e interfaz glial-vascular), molecular (regulación del pH, transporte de agua/homeostasis, homeostasis de neurotransmisores, homeostasis de iones), de órgano (efectos sobre el sistema linfático y la BHE), celular/red (plasticidad sináptica, sinaptogénesis/mantenimiento/ eliminación, neurogénesis, desarrollo/guía neuronal, definición de la arquitectura del SNC) y niveles sistémicos (afecta el sueño, regula el equilibrio energético, importante para la quimiodetección). Las interacciones entre el L-lactato del SNC y los sistemas hemo oxigenasa/CO que afectan la neuroprotección pueden ocurrir en múltiples niveles.
Metabólico
Apoyo metabólico
El metabolismo energético respalda la función cerebral, tiene rangos dinámicos de momento a momento, implica interacciones funcionales y metabólicas esenciales entre neuronas y astrocitos, y está compartimentado.
Las neuronas y los astrocitos dependen unos de otros para el apoyo metabólico del SNC. La formación de lactato por los astrocitos es una respuesta a la estimulación neuronal: el lactato complementa el suministro de energía del SNC durante la euglucemia, puede contribuir a un aumento de las reservas de ATP (el cerebro prioriza la regulación de su propia concentración de ATP) y es un sustrato primario del ciclo del ácido tricarboxílico.
La tasa de metabolismo oxidativo en los astrocitos puede aumentar tanto como la tasa de metabolismo neuronal en respuesta a la estimulación sensorial. En este medio, existe un gradiente permanente de lactato con una concentración de lactato mayor en los astrocitos que en las neuronas y el lactato neuronal puede ser extruido a las neuronas cercanas con concentraciones de lactato más bajas. o el espacio extracelular.
La captación de K+ por parte de los astrocitos, pero no la captación de glutamato acoplado a Na+- por parte de los astrocitos, es importante para el establecimiento de una asociación metabólica entre neuronas y astrocitos. Una disminución en el índice oxígeno-glucosa, acompañada por la estimulación de la formación de piruvato (y, por lo tanto, la formación de lactato) y la respiración de los astrocitos, también se observa con la activación neuronal.3,60,65,128,129 Los astrocitos son objetivos para el tratamiento de trastornos neurológicos, ya que las neuronas son superadas en número por las no -Las células neuronales (es decir, los astrocitos) y los astrocitos contienen glucógeno que puede transformarse en L-lactato (ver arriba).
Los niveles locales elevados de CO pueden aumentar la formación de L-lactato en los astrocitos y, por lo tanto, afectar la expresión de enfermedades neurológicas.8 Se necesitan estudios para evaluar más a fondo los efectos del CO en la formación de astrocitos lactato (y en el apoyo metabólico) y la interacción entre el CO, la formación de lactato en astrocitos y apoyo metabólico y enfermedades neurológicas.
Regulación del flujo sanguíneo local.
El acoplamiento neurovascular da como resultado un aumento local en el flujo sanguíneo para satisfacer las demandas de energía y ocurre fisiológicamente y en enfermedades a nivel de capilares y arteriolas (de manera diferente desde el punto de vista mecánico).
A nivel capilar, esto depende de la señalización del calcio (la concentración de calcio cambia en respuesta a la actividad neuronal). La dilatación de las arteriolas depende de la activación del receptor de Nmetil-D-aspartato (NMDA) y de la síntesis de óxido nítrico.130 El CO y el lactato afectan la señalización del calcio y los receptores de NMDA y, por lo tanto, el flujo sanguíneo potencialmente local del SNC y este último pueden depender de la concentración de CO.
Se sabe que el CO es un modulador vascular endógeno que funciona como vasoconstrictor y vasodilatador y es altamente protector de la vasculatura. La acción vasoconstrictora puede estar asociada a la generación de especies reactivas de oxígeno.131 En el SNC, el gasotransmisor dilata las arteriolas cerebrales. Los estímulos vasodilatadores (convulsiones, hipoxia, difosfato de adenosina, estimulación glutamatérgica) provocan un aumento de CO. El CO se une a las células del músculo liso Ca2+-canal de K+ activado BKCa)hemo unido al canal que conduce a un aumento de Ca{{4 }} provoca el acoplamiento a BKCa (también se une directamente al canal BKCa en diferentes ubicaciones) lo que resulta en vasodilatación. La inhibición de la hemo oxigenasa afecta la dilatación de la vasculatura ante estos estímulos.
La apoptosis y las vías de generación de oxidantes también se inhiben.132,133 El lactato puede actuar como un regulador dosis dependiente de la microcirculación cerebral al afectar la respuesta hiperemicre, que puede estar relacionada con un deterioro del sistema redox citosólico, y la optimización del flujo sanguíneo puede interactuar con los metabolitos del óxido nítrico y del ácido araquidónico. liberado por las células neuronales y gliales durante la actividad neural.109,134,135 Como tanto el CO como el lactato afectan los canales de calcio y el NMDA, la relación entre sí, los canales de calcio/NMDA y el flujo sanguíneo local del SNC son cuestiones importantes que no se han abordado. Se necesitan más estudios.
Síntesis y almacenamiento de glucógeno.
El glucógeno, un polímero de glucosa, está presente en el SNC en concentraciones bajas en relación con el hígado y el músculo esquelético y, en cerebros desarrollados de mamíferos en condiciones normales, se encuentra predominantemente en astrocitos (se ha encontrado en neuronas embrionarias). La síntesis es un proceso de varios pasos. El proceso está estrechamente regulado y es necesario el transporte de glucosa a través de la BHE.
La glucógeno sintasa y la enzima ramificadora del glucógeno alargan las cadenas de glucosa e introducen puntos de ramificación. Los astrocitos sin glucógeno no tienen tanto éxito en el soporte de las neuronas como aquellos que no tienen glucógeno.136-138El metabolismo del glucógeno de los astrocitos es importante para el funcionamiento del SNC. La sustancia es demasiado grande para ser liberada y viajar entre las células, pero los estudios han demostrado que los astrocitos liberan lactato en el medio.1,3,7,8,19,22 Moduladas por varios factores, las señales de actividad neuronal dan como resultado la liberación de lactato por parte de los astrocitos, formado predominantemente en los astrocitos a partir de la glucosa o el glucógeno y se transfiere de los astrocitos a las neuronas para satisfacer las necesidades energéticas neuronales y proporcionar señales que modulen las funciones neuronales e importantes para la salud y la enfermedad del SNC. El CO modula los niveles de L-lactato (y, por tanto, el metabolismo del glucógeno) en los astrocitos y se está estudiando más a fondo.3,8,139,140.
Formación de la unidad neuroglialvascular y la interfaz glialvascular.
Compuesta por neuronas, astrocitos, células microgliales, células endoteliales, pericitos, células de músculo liso y células sanguíneas circulantes, la unidad neuroglial-vascular interactúa para controlar la comunicación sináptica, la función BHE, el suministro de sangre local, el desarrollo neuronal y la vigilancia/función inmune.
Los modelos (modelo de dinámica vascular de Buxton-Want, formulación de Hodgkin-Huxley de excitabilidad de la membrana neuronal, modelo biofísico de vías metabólicas) de la unidad neuroglial-vascular describen la dinámica neuronal y proponen que la energía dentro de la neurona es dinámica y depende de la actividad neuronal: el lactato. en los astrocitos puede alimentar la actividad neuronal y la vasculatura local.
Estos modelos predicen la lanzadera de lactato astrocito-neurona: dinámica temporal del lactato tisular, glucosa tisular y consumo de oxígeno, y señal BOLD informada, estudios en humanos predichos correctamente, transferencia de lactato de los astrocitos a las neuronas observada en respuesta a la actividad, dinámica del lactato extracelular y oxígeno. como se observó in vivo en ratas y se predijo correctamente, el metabolismo oxidativo neuronal aumentó primero tras la activación con un posterior aumento retardado de la glucólisis astrocítica.141,142 Esto requiere MCT.

Se ha demostrado que el óxido nítrico regula negativamente los MCT 1. No se ha estudiado el efecto del CO sobre los MCT y, por lo tanto, los efectos del lactato sobre la unidad neuroglial-vascular.
For more information:1950477648nn@gmail.com


