Evaluación de la exposición al nitrógeno amoniacal en las defensas inmunitarias presentes en el bazo y la cabeza-riñón de la dorada de Wuchang (Megalobrama Amblycephala) Ⅱ
Nov 14, 2023
3. Discusión
Cómo responde el sistema inmunológico de los peces a diferentes tipos de contaminantes ambientales se ha convertido en un tema candente [34–37]. Como tóxico ubicuo, el amoníaco puede tener un impacto inesperado en la salud de los animales acuáticos, ya que los peces a menudo sufren estrés crónico por amoníaco en situaciones realistas. Nuestro presente estudio aclaró las influencias de la exposición prolongada al amoníaco en la inmunidad de los peces y su mecanismo.
En nuestro presente experimento, el cortisol sérico aumentó significativamente con el aumento de la concentración de exposición al amoníaco, lo que indica la aparición de estrés en la dorada de Wuchang. Se observaron resultados similares en el rodaballo (Scophthalmus ma. imus), la carpa común (Cyprinuscarpio) y la dorada juvenil (Megalobrama). amblycephala) [32,38,39. La exposición crónica al amoníaco también provocó disminuciones significativas en la lisozima sérica, el complemento y la C4 en este estudio. La lisozima, como indicador de la función inmune innata, es la principal enzima inmune para combatir las infecciones (40). El sistema del complemento, como uno de los puentes entre la inmunidad innata y la inmunidad adquirida, desempeña funciones esenciales en la eliminación de complejos inmunes y la eliminación de enfermedades que causan enfermedades. bacterias y virus [41,42). Algunos estudios previos han informado que el estrés agudo por amoníaco puede inhibir las actividades de la lisozima (17,43] y disminuir los niveles de proteínas y ARNm de C3 y C4 en peces (44-46]. Por lo tanto, nuestros resultados actuales revelaron que el estrés crónico por amoníaco subvirtió la inmunidad innata de los peces.índices cabeza-riñón, lo que indica que el estrés por amoníaco causó daños graves a dos órganos inmunitarios principales. Los hallazgos histológicos revelaron además que la acumulación de amoníaco podría ser la causa principal de lesiones patológicas en el bazo ycabeza riñón, que se caracterizaron por un aumento de los centros de melanoma-macrófagos y la vacuolización del citoplasma. Los centros de melanocrófagos se conocen como agregados de macrófagos y sus funciones principales son el almacenamiento de fosfolípidos y hierro derivados de células después de la eritrofagocitosis, el depósito de patógenos resistentes y el procesamiento de antígenos en las respuestas inmunes [47-51]. El mayor tamaño y frecuencia de los centros de melanomacrófagos a menudo indican que los peces están experimentando estrés o daños o envejeciendo [36,48,52]. La investigación de Kwon y Chang informó que una exposición de 5-días a amoníaco (4,0~10,4 mg/L de nitrógeno amoniacal total) indujo una deposición grave de hemosiderina y un aumento de los macrófagos de melanina en el bazo de la dorada [ 53]. Se observó un ensamblaje de melano-macrófagos similar en el bazo de Pelteobagrus vachellii expuesto a 1 y 5 mg/L de nitrógeno amoniacal total [17]. Además, la evaluación cuantitativa de las alteraciones histopatológicas mostró que el grado de lesión patológica causada por el estrés persistente por amoníaco era mayor en el bazo que en el riñón principal.
EXTRACTO DE CISTANCHE ORGÁNICO CON 25% DE EQUINACOSIDO Y 9% ACTEÓSIDO PARA LA INFECCIÓN RENAL
El daño a los órganos inmunológicos en los peces siempre está asociado con alteraciones de las moléculas inmunes [35]. En elSistema inmune innato, elcitocinas inflamatorias IL-1y TNF- son los reguladores importantes del inicio y modulación de la respuesta inflamatoria [54-57]. Los niveles reducidos de moléculas de citoquinas (TNF-, IL-1) representan una reducción de la función inmunológica celular, que en última instancia resulta en una alta tasa de infección bajo factores estresantes externos [58-60]. Estudios limitados han documentado que la exposición aguda a 40 mg/L de nitrógeno amoniacal total puede elevar los niveles transcripcionales de citocinas como IL-1 y TNF- en el rodaballo (Scophthalmus maximus), mientras que la exposición crónica a niveles elevados de amoníaco (50 mg/L nitrógeno amoniacal total) indujo la tendencia opuesta en la carpa cruciana (Carassius auratus) [14,60]. Nuestros resultados actuales mostraron que la exposición crónica al amoníaco causó marcadas disminuciones en los niveles proteicos y transcripcionales de IL-1 y TNF- esplénico, que fueron respaldados aún más por el análisis de correlación de Spearman entre las concentraciones de amoníaco y los niveles de IL esplénico{{15} } y TNF- . También se encontraron resultados similares en el riñón principal. Nuestros datos actuales indicaron que la exposición crónica al amoníaco interrumpió la defensa inmune innata al inhibir la transcripción y la síntesis de proteínas de las moléculas inflamatorias IL-1 y TNF- en dos órganos inmunes, el bazo y la cabeza del riñón.
Además del sistema de defensa inmune innato, la inmunidad adaptativa también juega un papel crucial en la defensa inmune de los peces. La IgM es el primer anticuerpo secretado por la respuesta inmune adaptativa a una nueva infección o a un antígeno extraño, que se expresa principalmente en el bazo y la cabeza-riñón de los peces [61,62]. Los niveles más bajos de IgM pueden estar asociados con una inmunidad adaptativa débil [63]. En el presente estudio, se detectaron disminuciones significativas en los niveles proteicos y transcripcionales de IgM en el bazo pero no en la cabeza del riñón, lo que indica que la exposición al amoníaco tiene un efecto inhibidor sobre la producción de IgM esplénica. Qin y cols. informaron que la exposición a 1 mg/L de nitrógeno amoniacal total durante 48 h y 96 h disminuyó significativamente los niveles transcripcionales de igm en el bazo de Pelteobagrus vachellii, pero no en la cabeza-riñón [17]. También se encontraron niveles reducidos de IgM en las branquias, el bazo y el cerebro de Rhynchocypris lagowski expuestos a 0.99 mg/l de amoníaco no ionizado durante 96 h [18]. Nuestro análisis de correlación de Spearman mostró además que la concentración de exposición al amoníaco tenía una correlación significativamente negativa con la IgM esplénica, pero no se correlacionaba significativamente con la IgM cabeza-riñón. Por lo tanto, nuestro estudio sugirió que el estrés crónico por amoníaco disminuía la inmunidad adaptativa sólo en el bazo. Esto podría sugerir que el bazo es más vulnerable al estrés ambiental por amoníaco que el riñón principal. Una razón para esta hipótesis puede ser el deterioro discrepante de la estructura del bazo y la cabeza del riñón inducido por el estrés por amoníaco en nuestro presente estudio.

Los TLR ampliamente distribuidos en las células inmunes son sensores primarios de patógenos invasores. En el presente estudio, se detectaron niveles transcripcionales reducidos de TLR en el bazo y la cabeza del riñón de la dorada Wuchang, lo que implica que el amoníaco podría causar efectos negativos a través de la vía de señalización de los TLR. De hecho, la inhibición de los TLR podría estar relacionada con los aumentos del cortisol sérico inducido por la exposición al amoníaco. Carrizo et al. demostró que el tratamiento con cortisol disminuía los niveles de ARNm de TLR (tlr1/5 m/9/22) en miotubos de Oncorhynchus mykiss [64]. Susarla et al. descubrieron que el cortisol podría disminuir los niveles transcripcionales de citoquinas (VEGF, CCL5, IFN-, CXCL-10, IL-8 y GCSF) después de la estimulación con TLR3 y TLR4 de fibroblastos corneales humanos primarios o ambos [65]. Además, la inhibición de TLR podría implicar un bloqueo de las vías de señalización de TLR. La vía dependiente de MyD88-está regulada por todos los TLR, y la vía independiente de MyD88-es peculiar de las vías de señalización TLR3 y TLR4 [66]. La señalización de TLR también conduce a la activación de la vía PI3 K-AKT, que a su vez activa las células B para producir anticuerpos y sintetizar moléculas proinflamatorias como IL-1 y TNF- a través de la vía de señalización NF-κB [67–69]. Vale la pena señalar que los niveles transcripcionales de traf6 disminuyeron tanto en el bazo como en la cabeza del riñón después de la exposición al amoníaco, mientras que no se detectaron cambios significativos en la expresión de myd88 y pi3 k. Por lo tanto, nuestros resultados indicaron que el amoníaco interfirió con la vía independiente de MyD88- -al inhibir TRAF6 tanto en el bazo como en la cabeza del riñón. Además, la activación de TRAF6 puede desencadenar la activación de la señalización descendente de NF-κB y de la señalización de MAPK (p38, JNK y ERK), que en última instancia induce la producción de varias citoquinas inflamatorias, incluidas TNF- e interleucina.-1 /6/12 (IL-1 /6/12) [70,71]. Además, TRAF6 también es el mediador crucial para la señalización de CD40 que regula la secreción de IL-6 e Ig [72]. En nuestro estudio, la importante regulación a la baja de los ARNm de erk1 y nf-κb2 del bazo, así como de los ARNm de erk1, jnk1 y nf-κb1 de la cabeza del riñón, sugirió que la exposición al amoníaco suprimió las moléculas de señalización de NF-κB y MAPK en el bazo y la cabeza. -riñón. Además, la exposición al amoníaco reguló negativamente la señalización de NF-κB al suprimir el gen nf-κb1 en el bazo pero el gen nf-κb2 en la cabeza-riñón, lo que refleja la respuesta inflamatoria específica del tejido entrebazo y cabeza-riñón. En cuanto a la vía de señalización MAPK, la exposición al amoníaco inhibió significativamente la expresión de erk1 esplénico y erk1 y jnk1 de cabeza-riñón. Después de realizar el análisis de correlación de Spearman, encontramos que la concentración de exposición al amoníaco se correlacionaba significativamente negativamente con los niveles de parámetros inmunes (IL-1, TNF- e IgM), así como con la expresión de genes relacionados con la señalización de TLR en el bazo y cabeza-riñón. Por lo tanto, nuestros resultados sugirieron que la exposición crónica al amoníaco podría afectar la inmunidad innata y adaptativa a través de la vía de señalización independiente de TLR/MyD88-.
Los valores altos de IBR reflejaron respuestas biológicas mejoradas y el mal estado de salud de los organismos [73]. Los resultados actuales para los valores de IBR aumentaron con los aumentos en la concentración ambiental de amoníaco tanto en el bazo como en la cabeza del riñón. Este resultado fue consistente con los datos sobre histopatología y parámetros inmunes en suero. Además, bajo la misma concentración de estrés por amoníaco, el valor IBR fue mayor en el bazo que en la cabeza del riñón, lo que demostró además que las influencias del estrés por amoníaco en el bazo fueron más severas que en la cabeza del riñón de la dorada de Wuchang.
4. Materiales y métodos
4.1. Mantenimiento Animal y Protocolo Experimental Juvenil
Dorada Wuchang con un peso medio de 9,98 ± 0.48 g de la pesquería Tuanfeng (Hubei, China) se trasladó a tanques de fibra de vidrio de 300 L, donde se les suministró agua corriente sin cloro y aireación continua. agua. Se aclimataron durante 14 días alimentándolos con dietas comerciales dos veces al día (9:{{10}} am y 15:00 pm). Después de un experimento preliminar, se encontró que la LC50 de 96 h y las concentraciones seguras de nitrógeno amoniacal total para los juveniles de dorada eran 46,013 mg/L y 4,601 mg/L, respectivamente. Por lo tanto, el rango de exposición al amoníaco se estableció en 0 mg/L, 5 mg/L, 10 mg/L, 20 mg/L y 30 mg/L de nitrógeno amoniacal total. Los peces se distribuyeron aleatoriamente en 5 grupos de tratamiento con tanques por triplicado y la densidad de avivamiento fue de 20 juveniles por tanque. Las concentraciones experimentales de amoníaco se obtuvieron a partir de una solución madre de 10 g/L elaborada con cloruro de amoníaco grado reactivo (BASFR, 99,5%). Para mantener concentraciones estables de tratamiento de amoníaco, la solución del experimento 1/2 se renovó todos los días con una concentración nueva e igual de solución de nitrógeno amoniacal. Mientras tanto, el grupo de control se sometió a una manipulación similar con agua del grifo aireada. Los niveles reales de nitrógeno amoniacal total para cada tratamiento se midieron mediante nesslerización todos los días. Durante todo el período experimental, los datos de monitoreo diario realizados por el analizador de agua HQ40 D (Hach, Loveland, CO, EE. UU.) mostraron que la temperatura del agua era de 25,0 ± 0,60 ◦C, las concentraciones de oxígeno disuelto estaban por encima de 5,0 mg/L y el pH se mantuvo en 7,55 ± 0,04, con ligeros ajustes utilizando 10% H2SO4 y 10% NaOH. Los peces fueron alimentados con una dieta comercial dos veces al día al igual que durante la aclimatación.
4.2. Recolección y preparación de muestras
Después de una exposición experimental de 30-días, los peces primero se mantuvieron en ayunas durante 48 h y luego se anestesiaron en una solución MS-222. El peso corporal de cada juvenil se midió antes de la disección y la sangre se recogió inmediatamente de las venas caudales para separar el suero para la posterior determinación de los parámetros bioquímicos. Los tejidos (bazo y cabeza-riñón) fueron extraídos y pesados. Los índices bazo y cabeza-riñón se calcularon utilizando la fórmula [peso del tejido (g)/peso corporal (g) * 100%]. Se utilizaron tres bazos y cabezas-riñones individuales de cada grupo para el análisis histopatológico, y los demás se congelaron inmediatamente a -80 ◦C para el análisis de las concentraciones de amoníaco en los tejidos, los parámetros de inmunidad y los niveles de transcripción de genes. Este trabajo realizado con M. amblycephala fue aprobado por el Comité de Uso y Cuidado de Animales (IACUC) de la Universidad Agrícola de Huazhong, Wuhan, China (HZAUFI-2019-018).
4.3. Detección de amoníaco en bazo y cabeza-riñón
Para el análisis de los niveles de amoníaco, el pretratamiento de muestras de tejido y la detección de amoníaco se llevaron a cabo según estudios previos [74,75]. Los pasos de prueba detallados se pueden encontrar en Información de respaldo (Texto complementario S1).
4.4. Ensayo de parámetros inmunes en suero
Las muestras de sangre se centrifugaron (845 g, 20 min, 4 ◦C) para la preparación de muestras de suero. Cada grupo experimental tuvo seis réplicas y una réplica incluyó el suero de 10 individuos del mismo tanque. El cortisol sérico se determinó mediante radioinmunoensayo (RIA) utilizando el kit del Beijing North Institute of Biotechnology Co., Ltd. (Beijing, China) (www.bnibt.com, consultado el 15 de marzo de 2020) según un estudio anterior [76]. Los contenidos de complemento C3 y complemento C4 y la actividad de la lisozima se midieron utilizando kits comerciales producidos por el Jiancheng Bioengineering Institute (Nanjing, China) (www.njjcbio.com, consultado el 15 de marzo de 2020).
4.5. Ensayo de parámetros inmunes del tejido
Se combinaron muestras de tejido de cinco peces del mismo grupo como un duplicado y se homogeneizaron con 0.cloruro de sodio al 85%, luego se centrifugaron a 845 x g durante 15 minutos (4 ◦C) para recolectar el sobrenadante. Cada grupo experimental tuvo seis réplicas. Como se describe en estudios previos [77,78], el sobrenadante se usó para probar las concentraciones de IgM, IL-1, TNF- y proteína total usando kits comerciales. Todos los kits se compraron en el Jiancheng Bioengineering Institute (Nanjing, China) (www.njjcbio.com, consultado el 15 de marzo de 2020).
4.6. Análisis de expresión genética
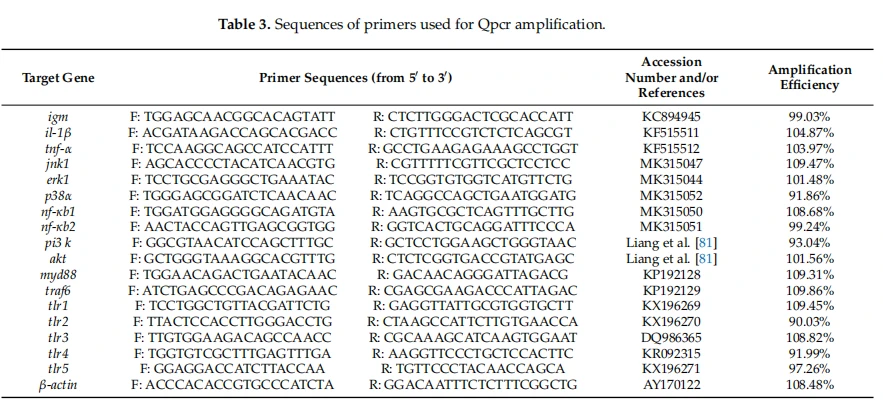
Los niveles de ARNm de genes inmunes asociados en el bazo y la cabeza del riñón se probaron según el método de un estudio anterior [79]. Se proporciona información detallada sobre el procedimiento de prueba en Información de respaldo (Texto complementario S2). Las secuencias de los cebadores se enumeran en la Tabla 3. Se realizó un análisis de la curva de fusión para cada cebador al final de la reacción para demostrar la especificidad de la reacción. Después de verificar que las eficiencias de amplificación de todos los genes seleccionados oscilaban entre 90% y 110%, los niveles relativos de Mrna se calcularon mediante el método de 2−∆∆Ct con -actina como control interno [80].
4.7. Evaluación histopatológica
Las muestras de bazo y cabeza-riñón se fijaron en formalina tamponada neutra al 10%, luego se deshidrataron en etanol y se incluyeron en parafina. Finalmente, los cortes de tejido se tiñeron con hematoxilina y eosina (H&E). Se realizaron análisis cuantitativos adicionales de los cambios patológicos según estudios previos [82,83]. El protocolo de análisis detallado se proporciona en Información de respaldo (Texto complementario S3).
4.8. Análisis de respuesta de biomarcadores integrados
El análisis IBR es un método para integrar todas las respuestas de biomarcadores medidas en un índice integrador para evaluar los niveles de estrés [84–86]. En el estudio actual, se aplicó para evaluar los efectos tóxicos de diferentes concentraciones de amoníaco en el bazo y el riñón de la cabeza de la dorada Wuchang después de una exposición de 30- días. Se proporciona información detallada sobre el procedimiento de cálculo en Información de respaldo (Texto complementario S4).
4.9. Análisis estadístico
Todos los valores se sometieron a un análisis de varianza unidireccional seguido de la prueba post hoc de Dunnett para evaluar las diferencias entre medias (SPSS 22.0, Chicago, IL, EE. UU.). Se eligió el análisis de correlación de Spear-man para determinar la relación entre las concentraciones totales de amoníaco, los parámetros inmunológicos y los niveles de expresión genética. Previamente se verificó la normalidad y la homogeneidad de la varianza. Las diferencias se midieron y se consideraron significativas con el valor p < 0.05.
5. Conclusiones
Nuestro estudio proporciona evidencia de que el estrés crónico por amoníaco elevó el COR sérico, redujo la lisozima sérica y C3/C4, y disminuyó los niveles proteicos y transcripcionales de IL-1, TNF- e IgM, así como los niveles de expresión de genes involucrados con los TLR. /MyD88- vía de señalización independiente en el bazo y cabeza-riñón de M.amblicéfala. Además, los índices de ydaño patológicoa los dos órganos inmunes aumentó con la acumulación de amoníaco en los tejidos. Estos hallazgos indicaron que la acumulación de amoníaco en el bazo y la cabeza del riñón causó daño histopatológico e indujo supresión inmune a través de la inhibición de la señalización independiente de TLR/MyD88-. Además, se demostró que las influencias adversas del estrés crónico por amoníaco en el bazo son más graves que las que afectan a la cabeza-riñón de la dorada de Wuchang.
Financiamiento: este trabajo fue apoyado conjuntamente por el Programa Nacional Clave de Investigación y Desarrollo de China (2019 YFD0900303), el Sistema de Investigación Agrícola de China del MOF y MARA (CAS-45-24) y la Fundación Nacional de Ciencias Naturales de China (No. 32071621). .
Declaración de la Junta de Revisión Institucional: Cumplimos con todas las regulaciones y convenciones locales, nacionales e internacionales, y respetamos las prácticas éticas científicas normales. Los especímenes utilizados en este estudio provienen de una población principalmente de individuos pescados comercialmente y destinados al consumo humano. El protocolo animal fue aprobado por el Comité Institucional de Ética de Uso y Cuidado de Animales de la Universidad Agrícola de Huazhong (Wuhan, China) (HZAUFI-2019-018).
Declaración de consentimiento informado: Se obtuvo el consentimiento informado de todos los sujetos involucrados en el estudio.
Declaración de disponibilidad de datos: todos los conjuntos de datos generados para este estudio se incluyen en el artículo/materiales complementarios.
Conflictos de intereses: Los autores declaran sobre conflicto de intereses.
Referencias
1. Randall, DJ; Tsui, T. Toxicidad del amoníaco en peces. Mar. Contaminación. Toro. 2002, 45, 17-23. [Referencia cruzada]
2. David, AA; Debbie, C.; Allen, WK; John, Interacción de la CE del amoníaco ionizado y no ionizado sobre la supervivencia y el crecimiento a corto plazo de las larvas de langostino, Macrobrachium rosenbergii. Biol. Toro. 1978, 154, 15–31. [Referencia cruzada]
3. Thurston, RV; Ruso, RC; Vinogradov, GA Toxicidad del amoníaco para los peces. Efecto del pH sobre la toxicidad de las especies de amoníaco ionizado. Reinar. Ciencia. Tecnología. 1981, 15, 837–840. [Referencia cruzada]
4. Armstrong, BM; Lazorchak, JM; Murphy, California; Haring, HJ; Jensen, KM; Smith, ME Determinación de los efectos del amoníaco en la reproducción del pececillo de cabeza gorda (Pimephales promelas). Ciencia. Medio ambiente total. 2012, 420, 127-133. [Referencia cruzada] [PubMed]
5. Eddy, FB Amoníaco en estuarios y efectos sobre los peces. J. Biol de pescado. 2005, 67, 1495-1513. [Referencia cruzada]
6. Mirón, DS; Moraes, B.; Becker, AG; Crestani, M.; Spanevello, R.; Loro, VL; Baldisserotto, B. Efectos del amoníaco y el pH sobre algunos parámetros metabólicos y la histología branquial del bagre plateado, Rhamdia quelen (Heptapteridae). Acuicultura 2008, 277, 192–196. [Referencia cruzada]
7. Yu, C.; Huang, X.; Chen, H.; Godfray, HCJ; Wright, JS; Hall, JW; Gong, P.; Ni, S.; Qiao, S.; Huang, G.; et al. Gestión del nitrógeno para restaurar la calidad del agua en China. Nature 2019, 567, 516. [CrossRef] 8. Organización Mundial de la Salud (OMS). Una visión global de las regulaciones y estándares nacionales para la calidad del agua potable, 2ª ed.; Organización Mundial de la Salud: Ginebra, Suiza, 2021; 66p.
9. Passell, HD; Dahm, CN; Bedrick, EJ Modelado de amoníaco para evaluar la toxicidad potencial para las especies de peces en el RIO Grande, 1989–2002. Ecológico. Aplica. 2007, 17, 2087–2099. [Referencia cruzada]
10. Fan, B.; Li, J.; Wang, X.; Chen, J.; Gao, X.; Li, W.; Ai, S.; Gui, L.; Gao, S.; Liu, Z. Distribución espaciotemporal del amoníaco y evaluación de riesgos para especies de agua dulce en ecosistemas acuáticos en China. Ecotox. Reinar. Seguro. 2021, 207, 111541. [Referencia cruzada]
11. Yue, F.; Pan, LQ; Xie, P.; Zheng, D.; Li, J. Respuestas inmunes y expresión de genes relacionados con el sistema inmunológico en el cangrejo nadador Portunus trituberculatus expuesto a estrés ambiental elevado por amoníaco-N. comp. Bioquímica. Fisiol. Un mol. Integral Fisiol. 2010, 157, 246–251. [Referencia cruzada]
12. Qin, CJ; Shao, T.; Zhao, DX; Duan, HG; Wen, ZY; Yuan, D.; Li, HT; Qi, ZM Efecto del amoníaco-N y la exposición a patógenos sobre la expresión de los componentes 8 y 8 del complemento en el bagre barbo oscuro Pelteobagrus vachellii. Inmunol de pescado y marisco. 2017, 62, 107-115. [Referencia cruzada] [PubMed]
13. Cheng, CH; Yang, FF; Ling, RZ; Liao, SA; Miao, YT; Sí, CX; Wang, AL Efectos de la exposición al amoníaco sobre la apoptosis, el estrés oxidativo y la respuesta inmune en el pez globo (Takifugu obscurus). Agua. Toxico. 2015, 164, 61–71. [Referencia cruzada]
14. Liu, BL; Jia, R.; Huang, B.; Lei, JL Efecto interactivo del amoníaco y el estrés por hacinamiento sobre la regulación iónica y la expresión de genes relacionados con el sistema inmunológico en rodaballo juvenil (Scophthalmus maximus). Mar. Freshw. Comportamiento. Fisiol. 2017, 50, 179–194. [Referencia cruzada]
15. Li, M.; Zhang, M.; Qian, Y.; Shi, G.; Wang, R. Toxicidad del amoníaco en el bagre amarillo (Pelteobagrus fulvidraco): la visión mecanicista desde la desintoxicación fisiológica hasta el envenenamiento. Inmunol de pescado y marisco. 2020, 102, 195–202. [Referencia cruzada] [PubMed]
Servicio de apoyo de Wecistanche: el mayor exportador de cistanche de China:
Correo electrónico:wallence.suen@wecistanche.com
Whatsapp/Tel:+86 15292862950
Compre para obtener más detalles de especificaciones:
https://www.xjcistanche.com/cistanche-shop