

La espectrometría de masas en tándem de alta resolución identifica un patrón particular de gangliósidos en la enfermedad renal diabética temprana de pacientes con diabetes mellitus tipo 2 Ⅱ
Dec 08, 2023
2.2. Análisis estructural detallado de especies polisialiladas asociadas a macroalbuminuria mediante HCD MS/MS
El cribado HR-MS demostró que el gangliósido de los pacientes macroalbuminúricos se caracteriza por un contenido general elevado de ácido siálico. Se identificaron no menos de cuatro pentasialo gangliotetraosis de clase GQ1 en la muestra A3 con una alta precisión de masa. El ion m/z 812,7{{10}}68, detectado sólo en el espectro de masas de detección de A3, fue asignado, según el cálculo de masa, al GQ1(d18:1/18) triplemente desprotonado y sodiado. :0). Para caracterizar estructuralmente en detalle esta especie asociada a la macroalbuminuria, aislamos el ion en m/z 812.7068 y lo sometimos a HCD MS/MS a HR en el modo de ion negativo. Los objetivos de este experimento de EM en tándem fueron: (i) la investigación de la estructura de la cadena de oligosacáridos; (ii) la confirmación de la composición de ceramida, que se postuló considerando la masa de todas las moléculas de GQ1; (iii) recopilar datos específicos sobre la localización de los monosacáridos Neu5Ac a lo largo de la columna vertebral del oligosacárido, lo que lleva a la discriminación de isómeros de las cinco estructuras GQ1(d18:1/18:0) más comunes (Figura 3) que podrían estar presentes en la orina de Pacientes macroalbuminúricos.
Se representa el espectro de fragmentación del ion precursor [M-4H+Na]3− detectado en m/z 812,7068, generado combinando el TIC adquirido durante dos minutos bajo una energía de colisión variable dentro de un rango de 30 a 80 eV. en la Figura 4.
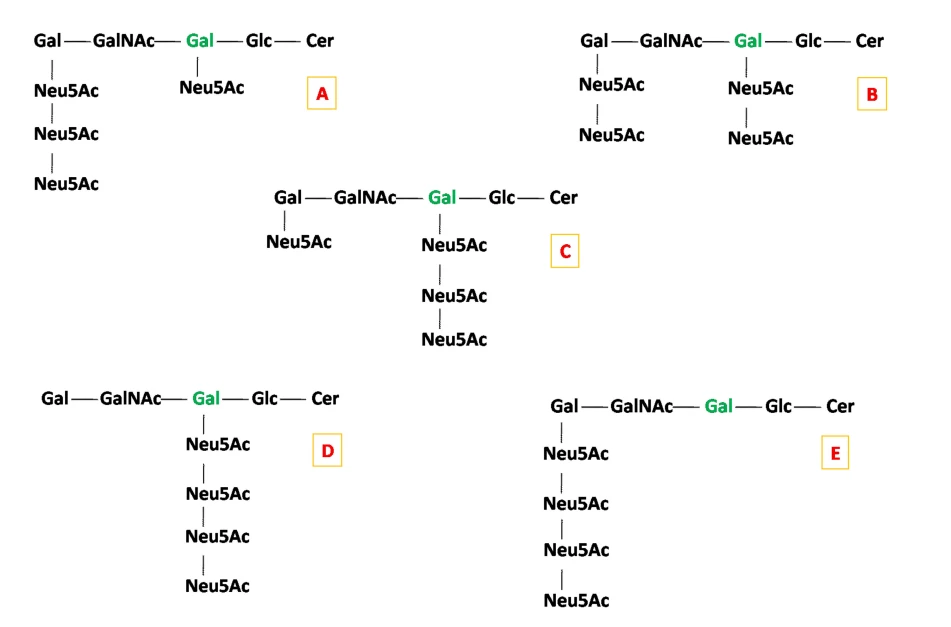
Figura 3. Los cinco isómeros más comunes de GQ1(d18:1/18:0): (A) isómero GQ1a(d18:1/18:{{10}}); (B) isómero GQ1b(d18:1/18:{{20}}); (C) isómero GQ1c(d18:1/18:0); (D) isómero GQ1d(d18:1/18:0); (E) Isómero GQ1e(d18:1/18:0).

Servicio de apoyo de Wecistanche: el mayor exportador de cistanche de China:
Correo electrónico:wallence.suen@wecistanche.com
Whatsapp/Tel:+86 15292862950
Compre para obtener más detalles sobre las especificaciones:
https://www.xjcistanche.com/cistanche-shop
HAGA CLIC AQUÍ PARA OBTENER EXTRACTO DE CISTANCHE ORGÁNICO NATURAL CON 25% DE EQUINACOSIDO Y 9% DE ACTEÓSIDO PARA LA INFECCIÓN RENAL

Los datos de MS/MS validan la composición (d18:1/18:0) de la ceramida por Y0 en m/z 564,8704 e Y1 en m/z 726,5845. correspondiente a la secuencia Glc-Cer, así como el ion de escisión interna, S, en m/z 325,1828 correspondiente al ácido graso C18:0 (Figura 5). Asimismo, también se documenta el estado general de sialilación de la molécula. Por lo tanto, por el ion B1 detectado en m/z 290,0868 y su contraparte sodiada en m/z 312,0686 correspondiente al desprendimiento de un residuo de Neu5Ac del ion original, junto con el elemento distal detectado en m/z 581,1807 y m/z 603,1626 , confirma la aparición del enlace Neu5Ac-Neu5Ac.

Figura 5. Esquema de la fragmentación por HCD MS/MS experimentada por el precursor [M-4H++Na+ ] 3− a m/z 812.7068 y la secuencia de iones diagnósticos para el isómero estructural GQ1d.
Teniendo en cuenta la posición de enlace más común de los residuos de Neu5Ac en la Gal interna o externa, existen cinco posibles candidatos estructurales para GQ1(d18:1/18:0), como se muestra en la Figura 3. Sin embargo, el ion en m/z 1032.3662 formado por un doble enlace y escisiones de anillos cruzados internos y asignado a Z4 /Y0/ 2,4A2, junto con el ion detectado en m/z 936.7894 como Y2/ 3,5A1, apoya la unión de los cuatro residuos de Neu5Ac al Gal interno. Aunque no se puede excluir completamente la incidencia de otros isómeros estructurales, estos dos iones fragmentados demuestran que el motivo estructural consistente con el candidato (D), que corresponde al isómero d de GQ1(d18:1/18:0) , definitivamente está presente en la muestra A3. El esquema de la Figura 5 representa la ruta de fragmentación experimentada por el ion precursor correspondiente a GQ1d(d18:1/18:0).
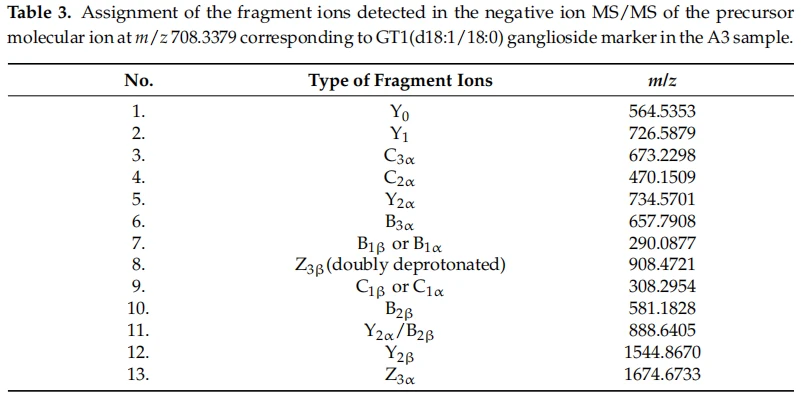
El siguiente candidato polisiálico asociado a macroalbuminuria para un análisis estructural detallado es el ion [M-3H+ ] 3− detectado únicamente en el espectro de masas de detección de la muestra A3 a m/z 708,3379 y asignado, sobre la base del cálculo de masa exacto, a GT1(d18:1/18:0). Este ion fue aislado y sometido al análisis de fragmentación mediante MS en tándem usando HCD. En la Figura 6 se presenta el espectro de iones del producto generado al resumir los escaneos adquiridos durante 2 minutos con energías de colisión variables entre 30 y 80 eV, junto con la estructura química de esta especie y la asignación de las señales principales. El mecanismo de fragmentación en las condiciones de MS/MS empleadas, junto con los iones de fragmentos de diagnóstico, se muestra en la Figura 7. Para mejorar la visibilidad de todos los iones de producto asignados, la Tabla 3 complementa la lista de señales identificadas en el espectro presentado en la Figura 6.

Figura 6. Análisis estructural mediante (−) nanoESI HR HCD MS/MS del ion precursor [M-3H+ ] 3− detectado en la muestra A3 a m/z 708,3379, que, según para el cálculo de masa, corresponde a GT1(d18:1/18:0). Tiempo de adquisición: 2 min; energías de colisión variables entre 30 y 80 eV. Recuadro: la estructura del isómero GT1b(d18:1/18:0) deducida de los datos de MS/MS.

La fragmentación de HCD dio lugar a varias secuencias de iones, que se produjeron como resultado de enlaces glicosídicos y escisiones entre anillos. Estos iones son muy útiles para la asignación de toda la secuencia de carbohidratos, con la identificación de isómeros posicionales GT1 y para la confirmación de la composición de ceramida aglicona.
El tipo de ceramida d18:1/18:0 es revelado por el ion Y0 en m/z 564,5353 y respaldado por la secuencia Glc-Cer identificada a través de Y1 en m/z 726,5879. Además, la asignación de iones evidencia la presencia de una isoforma GT1. El ion m/z 493.1669, con una composición NeuAc-GalNAc, puede ocurrir exclusivamente a partir de GT1, que se caracteriza por la sialilación del residuo GalNAc. El resto de iones del fragmento sugieren la existencia del isómero estructural GT1b en la muestra A3. La estructura del GT1b está sustentada por todos los iones que surgen del extremo no reductor de la molécula, documentada por la serie de tipo Y, acompañada de dos iones Z, de los cuales uno aparece en menor abundancia (Figura 6). Sin embargo, el Y2/B2 detectado como un ion de bastante abundancia en m/z 888,6405 proporciona evidencia de la secuencia Gal-Glc-Cer, posiblemente originándose a partir del isómero GT1a o GT1b después de la desialilación respectiva mediante el desprendimiento de Neu5Ac o Neu5Ac-Neu5Ac de la Gal interna o de un isómero que contiene una Gal interna no sustituida, como el GT1d.
Por otro lado, Y2 detectado en m/z 734.5701 corrobora la localización del elemento disialo Neu5AcNeu5Ac en el Gal interno, una configuración consistente con el isómero GT1b. La presencia del grupo distal también se evidencia por el ion B2 en m/z 581,1828.
En la MS/MS HCD, varias señales están relacionadas con la desialilación parcial de la molécula, como los iones Y4 y/o Y3 correspondientes a la secuencia de Gg4Cer desialilada; sin embargo, estos iones no pueden indicar los sitios de unión de Neu5Ac en el núcleo neutro de glicano Gg4. Además, la señal en m/z 364.1243 correspondiente a la secuencia Gal-GalNAc asignada al ion B3/B1 de escisión interna de GT1b es atribuible al isómero GT1c porque esta glicoforma contiene un disacárido Gal-GalNAc terminal no sustituido. Por lo tanto, a excepción del Y2, que está asociado al GT1b, todos los iones podrían surgir de otros isómeros posicionales de Neu5Ac, como GT1a, GT1, GT1c o incluso el raramente reportado GT1d. Por otro lado, el propio Y2 podría ser el resultado de un evento de baja probabilidad, que también eliminó el Neu5Ac del elemento de prueba vinculado al Gal interno.
Dado que, excepto para revelar GT1, los datos de MS/MS relacionados con las escisiones de enlaces glicosídicos no pudieron asignar de manera inequívoca otros isómeros de GT1 en la mezcla A3, analizamos más cuidadosamente los iones de escisión del anillo para descubrir una posible fragmentación interna que respalda a GT1b. Notamos el ion triplemente cargado de baja intensidad en m/z 634,6067, lo cual es consistente con el tipo 0,2 de escisión del anillo cruzado en uno de los residuos terminales de ácido siálico, que, en en el caso de las especies GT1b, puede ocurrir desde 0,2X4 o 0,2X3 o ambos. Debido a que el isómero GT1b es generalmente más común que GT1, las Figuras 6 y 7 presentan la asignación de iones y el esquema de fragmentación específico de GT1b.
Debido a la simetría de la cadena Gal-GalNAc-Gal, no es posible descartar completamente otros isómeros estructurales. Aunque los datos de HCD MS/MS demuestran la existencia de GQ1d(d18:1/18:0), GT1 (d18:1/18:0) y GT1b(d18:1/18: 0) en la muestra A3, no se puede excluir la posible aparición de otros isómeros GQ1 y GT1. Sin embargo, nuestros hallazgos indican que tres isómeros: GQ1d(d18:1/18:0), GT1b(d18:1/18:{{30}}) y GT1 (d18:1 /18:0) están definitivamente presentes en la muestra A3 y pueden estudiarse más a fondo como marcadores moleculares de macroalbuminuria.

3. Materiales y métodos
3.1. Criterios de inscripción de materias
Para desarrollar y validar el método, se evaluó en un estudio piloto transversal una cohorte de detección de pacientes con DM tipo 2 y sujetos de control sanos. Un total de 30 pacientes con DM tipo 2 que acudieron al Servicio Ambulatorio de Nefrología y al Servicio Ambulatorio de Diabetes y Enfermedades Metabólicas se dividieron en 3 grupos segúnalbúmina en orina/proporción de creatinina(UACR) de la siguiente manera: 10 pacientes con normoalbuminuria (A1, definida como UACR < 30 mg/g), 10 con microalbuminuria (A2, UACR 30–300 mg/g) y 10 con macroalbuminuria (A3, UACR > 300 mg/g). gramo). También se inscribieron en este estudio diez sujetos de control sanos (C) de la misma edad y sexo que asistieron al consultorio de un médico general para controles de rutina sin antecedentes conocidos de enfermedades renales y sin DM (excluidos por un valor de HbA1c menor o igual al 5,6%). estudiar
Todos los pacientes incluidos en el estudio tenían una duración mínima de 5-años de DM, función renal estable durante al menos 2 años, buen control de la presión arterial (<130/80 mmHg), negative urinary sediment, and a negative urine culture. The exclusion criteria were represented by other causes of proteinuria (other glomerular diseases, neoplasia, or autoimmune diseases), hematuria, poor control of DM (HbA1c > 10%), liver diseases, and pregnant or lactating women. The patients had no indication for biopsia de riñón(ausencia de hematuria y de otras causas de proteinuria, sin disminución rápida de la TFG).
3.2. Declaración de Ética
El estudio se realizó de acuerdo con la Declaración de Helsinki y el protocolo fue aprobado por el Comité de Ética en Investigación de la Institución (Junta de Estudios Humanos-Universidad de Medicina y Farmacia "Victor Babes" Timisoara, Nr. 15/12.09.2016 (Hospital de urgencias del condado, nº 100/23.11.2016). Todos los pacientes y controles aceptaron participar en el estudio firmando un formulario de consentimiento informado.
3.3. Evaluaciones de laboratorio
Se investigó el gangliósido en orina de 30 pacientes con DM tipo 2 en un estudio piloto transversal mediante un ensayo comparativo con 10 controles sanos. Parámetros bioquímicos referidos a urea y creatinina séricas, proteinuria de 24 h, UACR, sedimento urinario y urocultivo. Todos los pacientes fueron negativos para infecciones urinarias. La composición de las mezclas de gangliósidos nativos se detectó a partir de muestras de orina recolectadas durante 24 h. Las muestras de orina de pacientes y controles se almacenaron a corto plazo a -20 ◦C y se descongelaron antes del ensayo.ERCse definió según la directriz KDIGO para la evaluación yManejo de la enfermedad renal crónica.. La TFGe se calculó utilizando elenfermedad renal crónicaFórmula de ecuación de colaboración epidemiológica (ecuación de creatinina CKD-EPI 2009) [16].
3.4. Extracción y purificación de gangliósidos
La extracción de gangliósidos siguió el método desarrollado por Svennerholm y Fredman [17] y modificado por Vukeli´c et al. [18]. Anteriormente adaptamos este protocolo para la extracción y purificación de gangliósidos de fluidos corporales y lo aplicamos a gangliósidos del líquido cefalorraquídeo (LCR). El método se describe en detalle en nuestro estudio anterior relacionado con el análisis de perfiles y fragmentación de gangliósidos del LCR mediante espectrometría de masas [19]. Brevemente, los lípidos se extrajeron dos veces usando una mezcla de cloroformo (C)/metanol (M)/agua (W) hasta una relación de volumen total de 1:2:0.75 C/M/W, correspondiendo "W". a la orina; por lo tanto, la mezcla contenía 4 ml de C, 8 ml de M y 3 ml de muestra de orina. Se adquirieron cloroformo y metanol de calidad analítica de Merck (Darmstadt, Alemania) y se utilizaron sin purificación adicional. Después de la separación completa de las fases, siguiendo los procedimientos descritos en [19], se recogió la fase superior que contenía glicoesfingolípidos polares.
La purificación de los gangliósidos crudos recolectados se logró en varios pasos [19]: la eliminación de los complejos de proteína-sal precipitados, seguida de centrifugación, filtración en gel en una columna Sephadex G-25 (Sigma-Aldrich, Burlington, MA, EE. UU. ) para eliminar contaminantes de bajo peso molecular y, finalmente, diálisis durante la noche a 4 ◦C frente a agua. Los gangliósidos se extrajeron en condiciones idénticas de todas las alícuotas de orina, obteniéndose las mezclas A1 (normoalbuminuria), A2 (microalbuminuria), A3 (macroalbuminuria) y C (control).
3.5. Preparación de muestras para espectrometría de masas
Los extractos de gangliósidos A1, A2, A3 y C purificados se evaporaron hasta sequedad completa en un sistema SpeedVac Concentrator SPD 111 V (Savant, Düsseldorf, Alemania) acoplado a una bomba de vacío. Para el análisis de MS, cada extracto seco se disolvió en metanol puro para generar la solución madre y se almacenó a -20 ◦C. Antes del análisis de MS, las soluciones madre se centrifugaron en una centrífuga modelo Sigma 2–16 (Sartorius AG, Göttingen, Alemania). Para la infusión de Orbitrap MS, se obtuvieron muestras de trabajo con una concentración de 5 pmol·μL −1 en metanol puro diluyendo alícuotas de la solución madre. La concentración de gangliósidos en la solución infundida se calculó para un peso molecular promedio de 2000 g mol-1.

3.6. Espectrometría de masas Orbitrap con nanoESI
Los experimentos de MS se realizaron en un espectrómetro de masas LTQ Orbitrap Velos Pro ™ (Thermo Fisher Scientific, Bremen, Alemania) equipado con una fuente nanoES fuera de línea ES 259 (Thermo Fisher, Bremen, Alemania).
El instrumento es un espectrómetro de masas híbrido que combina dos tipos diferentes de analizadores de masas y ofrece una multitud de ventajas: alta sensibilidad y precisión, buena calidad de los datos y velocidad de análisis, potencial para la detección de componentes menores en mezclas complejas, bajo consumo de muestra, y evitar el contrainterrogatorio y la transferencia de una muestra a otra.
El primer analizador es una trampa de iones cuadrupolo lineal de doble presión capaz de aislar un ion con una relación masa-carga específica (m/z) y de activarlo poniendo energía cinética en el ion con la m/z específica en orden. para causar disociación inducida por colisión. El segundo analizador es el Orbitrap, que consta de un electrodo exterior cilíndrico y un electrodo interior de barril, que atrapa los iones en órbitas circulares alrededor del electrodo interior. Tiene un excelente poder de resolución y ofrece la posibilidad de secuenciar especies iónicas complejas en experimentos de MS (MSn) de múltiples etapas mediante técnicas de fragmentación eficientes.
Se extrajeron capilares de borosilicato (10 cm de largo) con un extractor de micropipetas Sutter p-97 para producir capilares de electropulverización con tamaños de punta de 10 µm y longitudes cónicas de 4 mm. Se introdujo un volumen de 10 µL de la solución a una concentración de 5 pmol · µL −1 en metanol en la parte posterior del emisor y se insertó un alambre de platino de 0,25 mm en la solución. Los valores de potencial aplicados al alambre de platino y al cono se ajustaron permanentemente para lograr una ionización eficiente de los componentes. El proceso nanoESI se inició estableciendo los parámetros instrumentales de la siguiente manera: voltaje nanoESI, 0,80 kV; voltaje del cono, 40 a 60 V; temperatura de desolvatación, 80 ◦C; Nivel de RF de la lente S, 60 %. Estos valores de los parámetros de MS mejoraron la ionización y una pulverización constante y, al mismo tiempo, minimizaron la fragmentación en la fuente del residuo lábil de Neu5Ac unido al núcleo de oligosacárido de la molécula de gangliósido.
Todos los espectros de masas (MS y MS en tándem) se adquirieron en modo HR, detección en modo de iones negativos y dentro del rango de 200–2000 m/z. Los escaneos de MS se adquirieron con una resolución establecida en 60.000. El espectrómetro de masas fue operado y controlado por LTQ Tune Plus v2.7 (Thermo Scientific, Bremen, Alemania), y la adquisición y el procesamiento de datos de MS se lograron utilizando el software Xcalibur 3.0.63 (Thermo Scientific, Bremen, Alemania).
Los experimentos de MS/MS se realizaron en el LTQ mediante CID en la celda de colisión utilizando helio 5.0 de pureza a una presión de 50 psi como gas de colisión. Los escaneos MS/MS se adquirieron con una resolución establecida en 20,000. La selección y fragmentación de iones se realizaron manualmente. Los iones precursores se seleccionaron dentro de un ancho de aislamiento de 1 unidad m/z y se fragmentaron mediante HCD utilizando energías de colisión variables dentro del rango de 30 a 80 eV para mejorar la cobertura de los iones fragmentados.
Las TIC y los espectros de masas derivados de la combinación de los escaneos acumulados se procesaron utilizando el software Xcalibur 2.1 (Thermo Scientific, Waltham, MA, EE. UU.), que permite la extracción de los espectros, así como su suavizado y resta.
Antes de los experimentos, la escala m/z se calibró externamente utilizando la referencia dedicada comercialmente conocida como solución de iones negativos Pierce® ESI de Thermo Scientific (Waltham, MA, EE. UU.). En modo de iones negativos, este estándar proporcionó un espectro con una cobertura iónica justa del rango m/z escaneado tanto en experimentos de MS como de MS en tándem.
Para la optimización de las condiciones nanoESI MS y MS/MS en modo de iones negativos, comparación y evaluación de datos, se midieron las siguientes fracciones de gangliósidos estándar, que están disponibles comercialmente: GM1 (cerebro bovino); GD1a, GD1b, GT1b y GQ1b (cerebro porcino); y GM3 y GD3 (leche bovina) de Avanti Polar Lipids (Birmingham, AL, EE. UU.), así como el extracto completo de gangliósido de cerebro bovino, conocido comercialmente como mezcla Cronassial. de Abano Terme (Padua, Italia).
3.7. Abreviatura de gangliósidos
Para la asignación de gangliósidos, el sistema de abreviaturas introducido en 1980 por Svenner-holm [20], junto con las recomendaciones de 1998 de la Comisión de Nomenclatura Bioquímica de la IUPAC-IUB, [21] se aplicó de la siguiente manera:
LacCer-Gal 4Glc 1Cer; GM3-II3 - -Neu5Ac-LacCer; GD3-II3 - -(Neu5Ac)2-Laca; GT3-II3 - -(Neu5Ac)3-Laca; GM2-II3 - -Neu5Ac-Gg3Cer; GD2-II3 - -(Neu5Ac)2-Gg3Cer; GM1a o GM1-II3 - -Neu5Ac-Gg4Cer; GM1b-IV3 - -Neu5Ac-Gg4Cer; GalNAc-GM1b-IV3 - -Neu5Ac-Gg5Cer; GD1a-IV3 - -Neu5Ac, II3 - -Neu5Ac-Gg4Cer; GD1b-II3 - -(Neu5Ac)2- Gg4Cer; GT1b-IV3 - -Neu5Ac, II3 - -(Neu5Ac)2-Gg4Cer; GQ1b-IV3 - -(Neu5Ac)2, II3 - - (Neu5Ac)2-Gg4Cer; nLM1 o 30 -nLM1-IV3 - -Neu5Ac-nLc4Cer; LM1 o 30 -isoLM1-IV3 - - Neu5Ac-Lc4Cer; nLD1-disialo-nLc4Cer.
3.8. Interpretación de datos de MS
Debido a que hasta la fecha no hay disponibles programas informáticos, bases de datos u otros servicios de TI dedicados para ayudar en la interpretación de la detección de gangliósidos y los espectros de masas en tándem, en este estudio, los iones moleculares detectados se asignaron a especies de gangliósidos mediante un cálculo de masa exacto y sobre la base de la información que habíamos adquirido previamente sobre este tipo de glicoesfingolípidos y las vías de biosíntesis conocidas. En la interpretación de los datos de MS y MS/MS y los cálculos de masa, nos ayudó el gran inventario de gangliósidos moleculares y fragmentos de iones que hemos identificado y caracterizado en varios tejidos y fluidos humanos hasta la fecha utilizando enfoques avanzados de MS. Estas estructuras representan nuestras bases de datos originales, que se incluyeron en nuestros estudios publicados anteriormente [12,19,22–31]. Las nuevas especies reportadas en este trabajo completan nuestro registro de gangliósidos actualmente existente.
La asignación de los iones de la secuencia principal de oligosacáridos generados dentro del HCD MS/MS siguió la nomenclatura generalmente aceptada [24, 25].
4. Conclusiones
En este estudio, desarrollamos un enfoque basado en HR MS y tándem MS para la determinación de gangliósidos en DKD mediante un ensayo comparativo de extractos urinarios de pacientes normo, micro y macroalbuminúricos, así como controles sanos, realizados bajo solución idéntica. y condiciones instrumentales. El objetivo final de nuestro estudio fue determinar los cambios que ocurren en la composición y estructura de los gangliósidos renales expresados en DKD vs. controles y en diferentes etapas de la enfermedad.
La alta sensibilidad, reproducibilidad, resolución y precisión de masa proporcionada por la plataforma MS optimizada para este propósito nos permitió establecer que el grado de sialilación de las especies expresadas parece desempeñar un papel importante en la progresión de la enfermedad, representando un marcador de DKD. , incluso en la etapa de normoalbuminuria de pacientes con DM tipo 2. Además, las modificaciones observadas en la composición de Cer muestran que, además de la estructura de glicano, la fracción lipídica también puede considerarse una huella molecular para las etapas de DKD.
En la fase más avanzada de la investigación, se empleó MS/MS por HCD para el análisis estructural de las especies con un posible papel como biomarcador. En el caso de la muestra A3, los iones moleculares que, según el cálculo de masa, corresponden a GQ1(d18:1/18:0) y GT1(d18:1/18:{{1 0}}), respectivamente, fueron aislados y sometidos a fragmentación en la celda de colisión del instrumento. El objetivo de estos experimentos era recopilar información sobre la configuración estructural detallada de la molécula. Las condiciones de secuenciación optimizadas, en particular el rango de energía de colisión y la presión del gas de colisión, indujeron escisiones específicas de los enlaces glicosídicos, lo que resultó en la formación de iones fragmentados detectados como señales relevantes en los espectros de masas en tándem. Se encontraron varios iones diagnósticos para ciertos isómeros relacionados con la localización de los restos Neu5Ac en la cadena de carbohidratos de la molécula de gangliósido. Basándonos en estos iones de secuencia estructuralmente informativos, descubrimos que GQ1d(d18:1/18:0), GT1 (d18:1/18:0) y GT1b(d18:1/18: 0) los isómeros están presentes en la muestra A3 y están asociados a macroalbuminuria.
Los resultados obtenidos requieren una mayor validación de algunas hipótesis en estudios longitudinales realizados en cohortes más grandes para demostrar una relación de causalidad entre la complejidad de los gangliósidos detectados en la orina dePacientes con ERCy la afectación renal muy temprana en el curso de la DM tipo 2, incluso en el estadio de normoalbuminuria. Sin embargo, consideramos que los presentes hallazgos abren una dirección de investigación hacia la investigación del papel que desempeñan en la progresión de la enfermedad la sialilación, O-acetilación y O-fucosilación de gangliósidos, así como sus modificaciones por O-GalNAc y CH3COO-. Otro aspecto beneficioso de estos resultados es el posible desarrollo de procedimientos para el diagnóstico temprano de DKD basados en perfiles de gangliósidos mediante espectrometría de masas avanzada.
Referencias
1. Ghaderian, SB; Beladi-Mousavi, SS El papel de la diabetes mellitus y la hipertensión en la enfermedad renal crónica.J. Ren. Inj. Anterior.2014, 3, 109–110. [Referencia cruzada] [PubMed (en inglés)]
2. Johansen, KL; Chertow, GM; Foley, enfermera registrada; Gilbertson, DT; Herzog, California; Ishani, A.; Israní, Alaska; Ku, E.; Tamura, MK; Li, S. Informe anual de datos 2020 del sistema de datos renales de EE. UU.: Epidemiología de la enfermedad renal en los Estados Unidos.Soy. J. Enfermedad renal.2021, 77, A7–A8. [Referencia cruzada] [PubMed (en inglés)]
3. Lin, YC; Chang, YH; Yang, SY; Wu, KD; Chu, TS Actualización de la fisiopatología y el tratamiento de la enfermedad renal diabética.J. Med. Asociación.2018, 117, 662–675. [Referencia cruzada] [PubMed (en inglés)]
4. Vallon, V.; Thomson, SC Función renal en modelos de enfermedad diabética: el sistema tubular en la fisiopatología del riñón diabético.Año. Rev. Physiol.2012, 74, 351–375. [Referencia cruzada]
5. Milas, O.; Gadalean, F.; Vlad, A.; Dumitrascu, V.; Velciov, S.; Gluhovschi, C.; Bob, F.; Popescu, R.; Ursoniu, S.; Jianu, CC; et al. Las citocinas proinflamatorias se asocian con daño de los podocitos y disfunción tubular proximal en la etapa temprana de la enfermedad renal diabética en pacientes con diabetes mellitus tipo 2.J. Diab. Complicado.2020, 34, 107479. [Referencia cruzada]
6. Petrica, L.; Ursoniu, S.; Gadalean, F.; Vlad, A.; Gluhovschi, G.; Dumitrascu, V.; Vlad, D.; Gluhovschi, C.; Velciov, S.; Bob, F.; et al. Los niveles de ARNm asociados a podocitos en orina se correlacionan con la disfunción del túbulo proximal en la nefropatía diabética temprana de la diabetes mellitus tipo 2.Diabetol. Metab. Sindr.2017, 9, 31–43. [Referencia cruzada]
7. Kwak, DH; Rho, YI; Kwon, OD; Ahan, SH; Canción, JH; Choo, YK; Kim, SJ; Choi, BK; Jung, KY Disminuciones del gangliósido GM3 en glomérulos diabéticos de ratas inducidos por estreptozocina.Ciencias de la vida.2003, 72, 1997–2006. [Referencia cruzada]
8.Mason, E.; Troncy, L.; Ruggiero, D.; Wiernsperger, N.; Lagarde, M.; El Bawab, S. Los gangliósidos de la serie a median los efectos de los productos finales de glicación avanzada sobre la proliferación de pericitos y células mesangiales: ¿un mediador común para la microangiopatía retiniana y renal?Diabetes2005, 54, 220–227. [Referencia cruzada]
9. Zador, Z.; Deshmukh, GD; Kunkel, R.; Radin, NS; Shayman, JA El papel de la acumulación de glicoesfingolípidos en la hipertrofia renal de la diabetes mellitus inducida por estreptozocina.J.Clin. Investigando.1993, 91, 797–803. [Referencia cruzada]
10. Ene, CD; Penescu, M.; Anghel, A.; Neagu, M.; Budu, V.; Nicolae, I. Monitoreo de la nefropatía diabética mediante gangliósidos circulantes.J. Inmunoass. Inmunoquímica.2016, 37, 68–79. [Referencia cruzada]


