

Impacto de la administración dietética de polisacáridos de algas en el crecimiento, la abundancia microbiana y el crecimiento y la expresión de genes relacionados con la inmunidad del camarón patiblanco del Pacífico (Litopenaeus vannamei)
May 09, 2023
Abstracto:
Este trabajo tiene como objetivo determinar el impacto de la suplementación dietética de polisacáridos, extraídos de algas pardas Sargassum dentifolium en los índices de crecimiento, utilización de alimentos, composiciones bioquímicas, abundancia microbiana, expresiones de crecimiento y genes relacionados con la inmunidad, y genes de estrés del camarón patiblanco del Pacífico Litopenaeus. vannamei. Un total de 360 postlarvas de L. vannamei se distribuyeron aleatoriamente en un 12-acuario de vidrio (40 L de cada uno) con una densidad de población de 30 camarones con un peso inicial de (0,0017 ± 0,001 g).
Durante la prueba experimental de {{0}días, todas las larvas de camarón fueron alimentadas con sus respectivas dietas al 10 por ciento del peso corporal total, tres veces al día. Se prepararon tres dietas experimentales con diferentes niveles de polisacáridos de algas (SWP). La dieta de control basal no tenía nivel de polisacáridos (SWP0), mientras que SWP1, SWP2 y SWP3 contenían polisacáridos en concentraciones de 1, 2 y 3 g kg−1 de dieta, respectivamente. Las dietas suplementadas con niveles de polisacáridos mostraron mejoras significativas en el aumento de peso y la tasa de supervivencia, en comparación con la dieta de control. La composición bioquímica de todo el cuerpo y la abundancia microbiana (el recuento total de bacterias heterótrofas y Vibrio spp.) de L. vannamei mostraron diferencias significativas entre las dietas tratadas con polisacáridos en comparación con el control.
Al final del experimento de alimentación, la suplementación dietética de niveles de polisacáridos mejoró la expresión de genes relacionados con el crecimiento (factores de crecimiento similares a la insulina (IGF-I, IGF-II), genes relacionados con el sistema inmunitario (proteína de unión a glucano (- Bgp), Profenoloxidasa (ProPO), Lisozima (Lys) y Crustin) y genes de estrés (Superóxido dismutasa (SOD) y Glutatión peroxidasa (GPx) en el tejido muscular de L. vannamei. Sin embargo, el presente estudio concluyó que la inclusión tasa de 2 g kg–1 de polisacárido como administración de un aditivo dietético mejoró tanto el aumento de peso como la tasa de supervivencia de L. vannamei, mientras que el nivel de incorporación de 3 g kg–1 reduce la abundancia de microbios patógenos y mejora el crecimiento, la inmunidad y expresiones génicas relacionadas con el estrés de L. vannamei.
Palabras clave: Sargassum dentifolium; Aditivos alimentarios; industria camaronera; actuaciones de crecimiento; genes relacionados con el crecimiento; genes relacionados con el sistema inmunitario; genes de estrés.
La superóxido dismutasa (superóxido dismutasa, SOD) es una enzima antioxidante intracelular que puede convertir los radicales superóxido dañinos en iones de oxígeno e hidróxido que son inofensivos para las células. La inmunidad es la capacidad del cuerpo para reconocer y atacar patógenos extraños y células anormales.
Los estudios han demostrado que tanto las células T como las B del sistema inmunológico necesitan ciertos procesos metabólicos oxidativos para mantener sus funciones normales. Sin embargo, el metabolismo oxidativo excesivo generará una gran cantidad de radicales libres, lo que resultará en daño oxidativo celular y disminución de la función inmunológica. SOD puede eliminar el exceso de radicales libres de superóxido, proteger las células del daño oxidativo y mejorar la inmunidad. Además, el estudio también encontró que la SOD también puede actuar como una molécula de señalización para transmitir información entre las células y regular procesos biológicos importantes como el crecimiento, la diferenciación y la función de las células inmunitarias. Por tanto, existe una estrecha relación entre la SOD y la inmunidad.
Desde este punto de vista, debemos prestar atención a la mejora de la inmunidad en nuestra vida. En nuestro descubrimiento, Cistanche puede mejorar significativamente la inmunidad. Cistanche contiene una variedad de componentes biológicamente activos, como polisacáridos, dos hongos, Huang Li, etc. Estos ingredientes pueden estimular varias células del sistema inmunológico y aumentar su actividad inmunológica.

Haga clic en beneficios para la salud de la cistanche
1. Introducción
La industria de la acuicultura del camarón ha experimentado un rápido crecimiento y se ha convertido en el sector acuícola más importante y líder [1,2]. Aunque la industria del camarón se ha desarrollado rápidamente, los desafíos que enfrentan los productores son obtener un aumento en la tasa de crecimiento, dietas de bajo precio y reducción de los brotes de enfermedades [3,4]. Además, el consumo mundial de camarones ha aumentado en los últimos diez años, lo que ha obligado a los expertos en nutrición a incorporar muchas sustancias derivadas de la agricultura en las dietas de los animales acuáticos [1,5,6]. El camarón de pata blanca del Pacífico (Litopenaeus vannamei) se cultiva con mayor frecuencia en todo el mundo, alcanzando más del 70 por ciento de todo el cultivo de camarón en todo el mundo [7,8]. Para sostener la industria del camarón en todo el mundo, se deben resolver muchos problemas, como la mala calidad del agua, la baja capacidad de supervivencia y la mejora de la industria de la dieta [9–14]. Además, el cambio climático y el impacto negativo de la contaminación ambiental son problemas significativos que restringen la sostenibilidad de la acuicultura, la pesca, los ecosistemas acuáticos y los animales acuáticos hasta el momento [15–20].
Por lo tanto, las dietas de camarón se han ampliado utilizando varias estrategias para hacer frente a tal desarrollo global en el sector de cultivo de camarón [10,21]. Una de las estrategias más fundamentales es la suplementación con aditivos alimentarios, que se ha vuelto muy importante para muchas especies de camarones como estímulo de crecimiento, refuerzo inmunológico y enfoque alternativo de resistencia a enfermedades [22,23]. Las plantas acuáticas (microalgas y algas marinas) todavía se emplean ampliamente en muchos sectores importantes, como aditivos para alimentos acuícolas [24], potenciadores del crecimiento vegetal [25], fitorremediación [26–30], suplementos alimenticios para humanos [31,32], productos farmacéuticos [33,34], sustancias cosméticas [35,36], actividades antimicrobianas [37,38] y bioenergía [39,40].
Como se informó en 2018, la producción mundial de algas marinas (capturadas en el medio silvestre y cultivadas) fue de aproximadamente 34,4 millones de toneladas, con un valor industrial de aproximadamente USD 13,3 mil millones [41]. Esta producción proviene de unos 35 países, mientras que el mayor productor, que produce más del 99 por ciento, es China [42]. Las algas marinas tienen altos niveles de proteínas, fibras, vitaminas, ácidos grasos, minerales, pigmentos y varios compuestos bioactivos [43–46].
Entre las familias de algas, las algas pardas se conocen como una fuente alta de azúcares, que pueden proteger a los organismos acuáticos de varios impactos dañinos, mientras que su polisacárido se ha utilizado sucesivamente como aditivo alimentario para la tilapia del Nilo [47] y la tilapia roja [2]. La literatura disponible ha demostrado que el polisacárido extraído de las algas marinas podría promover la inmunidad innata y mejorar la resistencia contra la infección por patógenos de los camarones [48–50] debido a su composición y estructura de polisacáridos (grado de ramificación, sustituyentes, sulfatación y tipo de enlaces). ) que son bastante diferentes de las plantas terrestres [51,52] Se ha encontrado que el alga marina parda dentiforme Sargassum contiene abundante polisacárido que es un recurso rico en Egipto, se ha confirmado que ejerce múltiples propiedades farmacológicas, como antitumoral, antioxidante, hematopoyesis, inmunomodulación y protección gastrointestinal, mientras que se informó que la administración dietética mejora las respuestas inmunitarias no específicas en los peces [2].
A pesar de la importancia de los aditivos alimentarios aplicados al camarón pata blanca del Pacífico, se sabe poco sobre la aplicación de polisacáridos preparados a partir de algas pardas en la industria de aditivos alimentarios para camarones [53,54]. Los inmunoestimulantes tienen importancia como sustancias sintéticas que potencian la capacidad del sistema inmunitario para combatir infecciones y enfermedades estimulando las respuestas inmunológicas. Las bacterias y los productos bacterianos, los carbohidratos complejos, los factores dietéticos, los extractos animales, las citoquinas, las lectinas, los extractos de plantas y los medicamentos sintéticos como el levamisol son ejemplos de inmunoestimulantes disponibles en la actualidad [55]. Los antibióticos en las dietas de peces y crustáceos cultivados se han utilizado comúnmente para controlar infecciones por enfermedades, así como para mejorar tanto la supervivencia como el crecimiento. Sin embargo, ha sido ampliamente criticado debido a la resistencia a los medicamentos y la acumulación de sustancias químicas en los tejidos de los animales acuáticos, lo que puede ser potencialmente peligroso para la salud pública. Alternativamente, los estimulantes inmunes naturales como los probióticos y los prebióticos generalmente se sugieren para usar en los alimentos para promover de manera efectiva el crecimiento y la respuesta inmune, y controlar diversas enfermedades en animales acuáticos [56].
Los efectos estimulantes de los inmunoestimulantes como el glucano, el quitosano, los nucleótidos, el lipopolisacárido (LPS), el alginato de sodio y otros polisacáridos han sido objeto de varios trabajos en peces y crustáceos [55,57].
Recientemente, se ha prestado especial atención al uso de prebióticos como alternativas naturales a los antibióticos y estimulantes inmunológicos en la acuicultura. Los polisacáridos funcionales son ingredientes no digeribles debido a sus enlaces -1, 3 o -1, 4. Según los informes, el consumo de polisacáridos funcionales puede mejorar el rendimiento del crecimiento y mejorar la respuesta inmune y la resistencia a las enfermedades de los animales acuáticos [58]. Según estudios previos, las dietas que contienen ciertos polisacáridos, incluidas las plantas medicinales y los polisacáridos de origen marino, pueden mejorar la tasa de crecimiento con respecto al sistema inmunológico y la condición gastrointestinal en peces y camarones [59–61].
La resistencia a las enfermedades se ha relacionado con un aumento de las respuestas celulares y humorales, incluida la fagocitosis, la actividad bactericida, la actividad de la fenoloxidasa (PO), el estallido respiratorio, la superóxido dismutasa (SOD) y las actividades de la lisozima en los crustáceos [62]. La información esencial sobre la activación y regulación del sistema inmunitario se revela mediante la expresión de genes relacionados con el sistema inmunitario en los camarones [63]. Las proteínas de reconocimiento de patrones (PRP), que se adhieren a las moléculas en la superficie microbiana, median en la detección de organismos invasores como un paso importante en la respuesta inmune del camarón [64].
El reconocimiento de PRP de patógenos invasores es un paso intermedio crucial en la activación del sistema del sistema de activación de profenoloxidasa (ProPO) [65]. Proteínas de reconocimiento de peptidoglicano [66], lectinas de tipo C [67], proteínas de unión a -glucano ( -Bgps) [68] y lipopolisacáridos (LPS) y proteínas de unión a 1,3-glucano (1,{{11 }}Lgp) [69] se han descrito como PRP en el sistema ProPO. Se sabe que el mecanismo de activación de la profenoloxidasa (ProPO), que se desencadena por la unión de los PRP a los componentes de la pared celular de un microorganismo, activa el sistema inmunitario del huésped [70]. El estrés activa las reacciones glucolíticas que, a su vez, aumentan el consumo de O2 y aumentan la liberación de especies reactivas de oxígeno (ROS) (como radicales hidroxilo, peróxido de hidrógeno y aniones superóxido) [71]. Sin embargo, el ROS puede eliminar el factor estresante; el aumento en el ROS causará una destrucción severa.
Por lo tanto, la eliminación rápida del exceso de ROS es fundamental para el funcionamiento adecuado de la célula. Esto se logra aumentando la expresión de enzimas antioxidantes [72]. La superóxido dismutasa (SOD) es una enzima antioxidante que depende de los aniones superóxido. Los radicales superóxido son detoxificados por la SOD transformándolos en oxígeno y peróxido de hidrógeno, que posteriormente se transforman en H2O y O2 mediante catalasa y se suministran a la célula como compuestos seguros [73,74].
El gen de superóxido dismutasa de cobre-zinc CuZnSOD y otros genes inmunitarios también están implicados en la inmunidad indirecta de Crustin, que es esencial para la inmunidad a las infecciones [75,76]. En L. vannamei, el extracto de polisacárido de Panax ginseng dietético reduce la inflamación, aumenta la actividad de las enzimas inmunitarias y modifica la expresión de genes inmunitarios [77]. Una gran cantidad de genes regulan las características del desarrollo, incluida la hormona del crecimiento (GH) y los factores de crecimiento similares a la insulina (IGF-I e IGF-II) [78]. El rápido crecimiento de la acuicultura de L. vannamei exige la creación de líneas genéticas rápidas [79]. Hasta donde sabemos, se sabe poco sobre las influencias de la suplementación con polisacáridos dietéticos de Sargassum dentifolium en el crecimiento de los camarones, la inmunidad y las expresiones génicas relacionadas con el estrés. Por lo tanto, este estudio se llevó a cabo para evaluar el efecto de la administración dietética de polisacáridos derivados de algas pardas (S. centifolia) sobre el rendimiento del crecimiento, la utilización del alimento, la composición corporal, las comunidades microbianas y las expresiones de los genes de crecimiento, inmunidad y estrés de la pata blanca. camarón Litopenaeus vannamei.
2. Materiales y métodos
2.1. Algas pardas, Sargassum centifolia
El alga parda, S. dentiform, se recolectó en la bahía de Abu-Qir, Alejandría, Egipto (31.3000 N y 30.1667 E) [2]. Las epífitas se eliminaron de las muestras obtenidas, como se describió anteriormente [80]. Antes de su uso, las muestras se lavaron, limpiaron, secaron al aire, pulverizaron y almacenaron en bolsas de plástico a temperatura ambiente [29]. Se utilizaron los procedimientos descritos por [81] para extraer el polisacárido del alga parda S. dentifolium.
2.2. Investigación de la Calidad del Agua
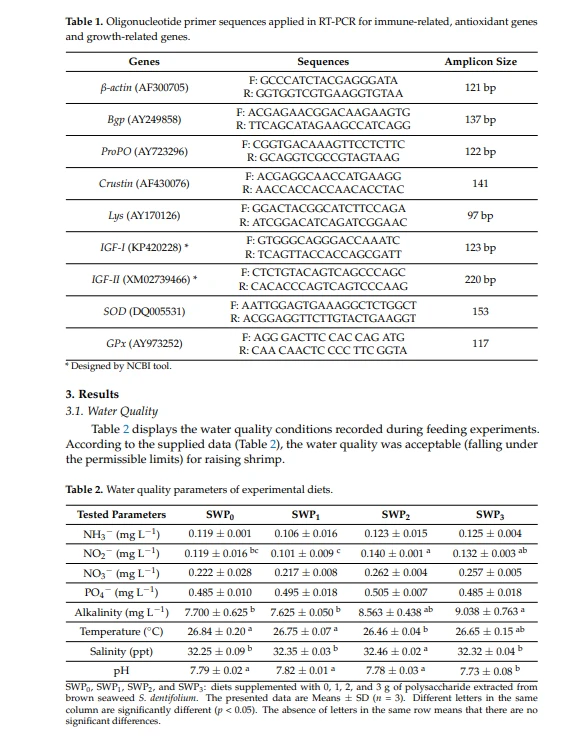
A lo largo del experimento de alimentación, nos aseguramos de que los niveles de NH3 − (mg L−1 ), NO2 − (mg L−1 ), NO3 − (mg L−1 ), alcalinidad (mg L−1 ) y PO4 − (mg L-1) estuvieron dentro de los rangos sugeridos para camarones [82] y las pautas de APHA [83]. Además, se tomaron medidas diarias de temperatura (◦C), salinidad (ppt) y pH a la 1 pm Se utilizó un termómetro colgado a una profundidad de 30 cm para obtener una lectura precisa de la temperatura del agua, y un medidor de pH y Se utilizó un refractómetro (Orion, Ipswich, MA, EE. UU.) para obtener lecturas precisas de la acidez y la alcalinidad del agua diariamente a las 9.00 h.
2.3. Camarón patiblanco del Pacífico (Litopenaeus vannamei)
2.3.1. Experimento con animales
Un criadero privado suministró postlarvas (PL) de camarón pata blanca del Pacífico L. vannamei al Laboratorio de Invertebrados, División de Acuicultura, Suez-Sucursal de NIOF, Egipto. Luego, las PL se aclimataron durante 15 días en dos tanques de fibra de vidrio de 500-L en condiciones controladas (28.0 ± 1.0 ◦C y salinidad 29 ± 3.0 ppt ) El Comité de Investigación de NIOF, Egipto, aprobó el diseño experimental y el cumplimiento de las normas éticas de manipulación de camarones.
2.3.2. Diseño e Instalaciones Experimentales
El ensayo de alimentación actual se realizó utilizando un diseño completamente al azar, con triplicados. Se sembró un total de 360 PL (con un peso inicial de 0.0017 ± 0.001 g) a una densidad de 30 camarones en 12 vasos acuarios (cada uno con una capacidad de 40 L). Para la prueba de alimentación de 90-días, los PL recibieron el 10 % del peso corporal total de los camarones tres veces al día (a las 6:00 am, 12:00 pm y 6:00 pm). Cada acuario se vaciaba de desechos y comida no consumida todas las mañanas y se limpiaba con un sifón y el 10 por ciento del volumen de agua se reemplazaba con agua de mar fresca, oxigenada y filtrada diariamente [82].
2.3.3. Dieta Experimental
Se proporcionaron cuatro dietas a los camarones: SWP{{0}}: dieta comercial para camarones (Aller-Aqua, Egipto, como dieta basal de control, proteína cruda del 40 por ciento y lípidos crudos del 9 por ciento). Las tres dietas experimentales restantes (SWP1, SWP2 y SWP3) son dietas comerciales para camarones suplementadas con 1, 2 y 3 g kg−1 de polisacárido de S. dentifolium, respectivamente. Se realizaron las adiciones de los niveles de polisacáridos, tal como lo describieron previamente Abdelrhman et al. [2]. Brevemente, la dieta comercial para camarones se molió primero y se dividió en tres porciones iguales. Cada nivel de polisacárido (1, 2 y 3 g kg−1) se disolvió en agua destilada y luego se roció sobre la superficie de la dieta hasta su completa absorción, y el mismo volumen adecuado de agua destilada se roció sobre la dieta de control (SWP0) sin polisacárido. [84]. Luego se roció el aceite de girasol (5 mL kg−1) sobre las dietas para cubrir la solución de polisacáridos [85]. Finalmente, las dietas se homogeneizaron y repeletizaron en pellets, se secaron al aire, se colocaron en bolsas de celofán y se refrigeraron a 4 ◦C hasta su uso.
2.4. Parámetros probados
2.4.1. Actuaciones de crecimiento
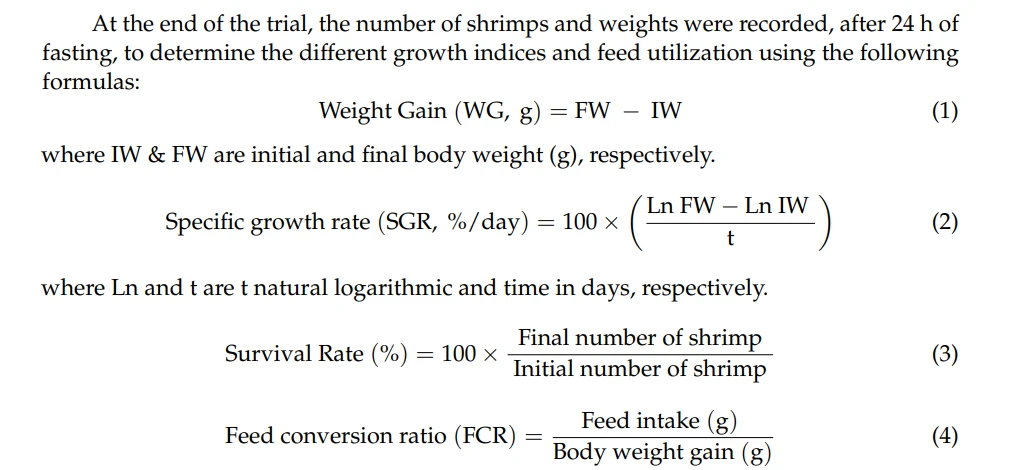
2.4.2. Análisis de composición bioquímica
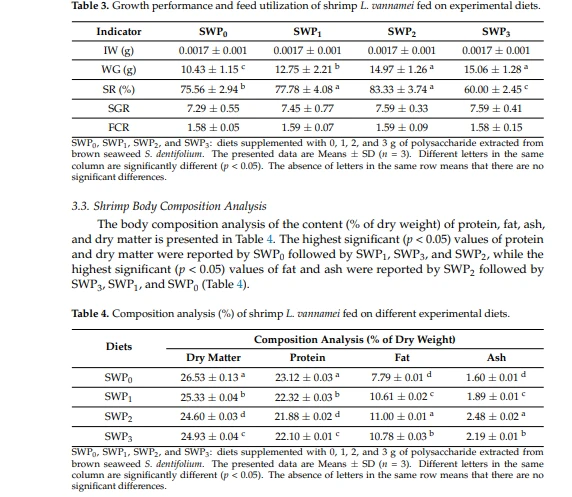
Tanto las dietas experimentales como los camarones se sometieron a un análisis proximal para estimar su contenido bioquímico de acuerdo con las pautas de la AOAC [86] preparadas como se detalla en el artículo anterior [87]. Para estimar el constituyente de todo el cuerpo (materia seca, grasa cruda, proteína cruda y ceniza cruda), se obtuvieron al azar 5 camarones de cada réplica después de que se completó la sesión de alimentación. Luego, los camarones se pulverizaron, se mezclaron hasta que quedaron suaves y se almacenaron a -20 ◦C para su posterior examen.
2.4.3. Comunidades microbianas
El enfoque APHA [83] se utilizó para determinar la riqueza de las comunidades microbianas. Se tomaron muestras de agua (1 mL) e intestino de camarón (1 g) de cada réplica (3 camarones por réplica, n=9) una vez que se completó el experimento. Cada muestra (intestino y agua) se inoculó con 9 ml de agua destilada estéril en placas de agar de soja Trypticase (TSA) y sales de tiosulfato-citrato-bilis (TCBS) [88]. Las placas de TSA y TCBS se incubaron a 37 ◦C, mientras que las placas de TCBS se incubaron a 28 ◦C. Se usaron unidades formadoras de colonias por mililitro para determinar la cantidad de bacterias heterótrofas y colonias de Vibrio presentes después de 24 h (CFU mL-1) [89].
2.4.4. Extracción de ARN y síntesis de ADNc para la expresión de genes
Se extirparon directamente muestras por triplicado de los músculos abdominales de los camarones de cada réplica con herramientas de disección completamente estériles en condiciones de frío. Antes de realizar el estudio de expresión génica, parte de los músculos se congeló a −80 ◦C. Se utilizó el reactivo TRIzol (easyRED, iNtRON Biotechnology) para extraer el ARN total de la región del abdomen del camarón al final del experimento, según las instrucciones del fabricante. Usando un sistema NanoDrop (Bio-Drop), se determinó la relación de densidad óptica (DO) de la pureza del ARN y se utilizó 1 ng L−1 de ARN para la síntesis de ADNc en cada reacción cuando la relación era ideal (A260/A{{ 5}}.8).
Para determinar la calidad del ARN se utilizó la relación 260/280 nm OD. El ARN total que había sido procesado con ADNasa I (NEB, EE. UU.) se utilizó como plantilla en un kit de transcriptasa inversa (perlas de RT-PCR, Enzynomics, Daejeon, Corea) para generar ADNc de primera cadena. La reacción se realizó mediante amplificación por PCR (usando un producto americano, un Veriti 96-Well Thermal Cycler de Applied Biosystems) y se llevó a cabo siguiendo las instrucciones del fabricante. Real-Time PCR (Bico, Thermo-Fisher) se realizó bajo las siguientes condiciones de cDNA para detectar productos únicos y distintos: Después de una desnaturalización inicial a 95 ◦C durante 15 min, la proteína se sometió a 40 ciclos en las siguientes condiciones: 95 ◦C durante 10 s, 58–62 ◦C durante 20 s y 72 ◦C durante 30 s; y finalmente, después del ciclo final, la temperatura se elevó de 58–62 ◦C a 95 ◦C en incrementos de 0,5 ◦C. Los cebadores utilizados para sondear genes similares se enumeran en la Tabla 1.
El gen de limpieza (-actina) se utilizó para evaluar la expresión del gen objetivo o el cambio de pliegue [90]. Cuando se utiliza el método 2∆∆Ct para normalizar las cantidades de umbral crítico (Ct) de los genes diana con cantidades de -actina, los valores revelan una diferencia de n veces en comparación con el control [91].
2.5. Análisis estadístico
Para evaluar la calidad del agua, el rendimiento del crecimiento, los índices de utilización del alimento, el análisis de la composición corporal, las comunidades microbianas y la inmunidad y la expresión génica relacionada con el crecimiento, se empleó un ANOVA unidireccional para identificar diferencias significativas (p < 0.{{6 }}5) en las medias de cada variable entre los tratamientos de polisacáridos (SWP1, SWP2 y SWP0) y el control (SWP0). El análisis estadístico se realizó utilizando GraphPad Prism versión 9. Para examinar cualquier correlación entre los tratamientos, se utilizaron las pruebas de Tukey. Antes de realizar el análisis estadístico, todos los datos han sido verificados por la normalidad de la distribución y la homogeneidad de la varianza. Antes del análisis, todos los datos (porcentajes) fueron transformados por arco-sen [92]. Sin embargo, para facilitar las comparaciones, los datos se presentaron sin transformar.
3.2. Rendimientos de crecimiento e índices de utilización de nutrientes
La Tabla 3 demuestra el impacto de la suplementación dietética de polisacáridos en el crecimiento, la supervivencia y la utilización del alimento de los camarones. En comparación con SWP0, la Tabla 3 mostró que SWP1, SWP2 y SWP3 demostraron aumentos significativos (p < 0.{{10}}5) en WG. Además, SWP1 y SWP2 mostraron aumentos significativos (p < 0.05) en SR, mientras que SWP3 mostró disminuciones significativas (p < 0.05), en comparación con SWP0. Por otro lado, no hubo diferencias significativas (p < 0,05) en SGR o FCR entre las dietas suplementadas (SWP0, SWP1, SWP2 y SWP3), como se presenta en la Tabla 3.
3.4. Comunidades microbianas
La Tabla 5 muestra el impacto de las dietas experimentales suplementadas con diferentes concentraciones del polisacárido (SWP1, SWP2 y SWP3), en comparación con SWP0, en el recuento total de THB y TVC tanto en el agua como en el intestino de los camarones. Los datos mostraron que la abundancia de microbios (THB y TVC) era mayor en el intestino que en el agua. En comparación con SWP0, el recuento de THB y TVC tanto en el agua como en el intestino disminuyó gradualmente a medida que aumentaban los niveles de polisacáridos (Tabla 5).

3.5. Expresiones de genes relacionados con el crecimiento, la inmunidad y el estrés
Al final del experimento, la suplementación dietética de polisacáridos mejoró las expresiones de genes relacionados con la inmunidad, el crecimiento y el estrés en el tejido muscular de L. vannamei. En cuanto a las expresiones de los genes relacionados con el crecimiento (IGF-I e IGF-II), sus expresiones se incrementaron considerablemente (p < 0.05) en los tratamientos con las diferentes concentraciones de polisacáridos comparadas al control (SWP{{10}}). La expresión aumentó en SWP3 y se encontró que era más alta que SWP0 con un cambio de aproximadamente 12 y 11- veces, respectivamente (Figura 1A, B). Las expresiones de los genes relacionados con el sistema inmunitario (Bgp, ProPO, Crustin y Lys) aumentaron notablemente en el tratamiento con SWP3, donde los cambios en las veces fueron 9,3, 12,4, 10,5 y 8,8, respectivamente, que fueron superiores a SWP0 (Figura 1C). -F).
En comparación con el grupo de control (SWPo), el gen ProPO exhibe los niveles de expresión más altos en todas las concentraciones de tratamiento. Para el gen Crusfin, hay una diferencia significativa entre el tratamiento SWP3 y el control, mientras que no hubo diferencia significativa entre el SWP y SWP y el control. Además, la expresión de genes de estrés (SOD y GPx) en SWP; aumentaron considerablemente en 5.2- y 6.9-veces, respectivamente. en relación con el control (Figura 1G, H). Sin embargo, hubo una diferencia significativa (p < 0.05) en la expresión del gen SOD entre todos los tratamientos en comparación con el control con más aumento en el tratamiento SWP. Mientras tanto, hubo una diferencia significativa (p < 0.05) en la expresión génica de GPx entre los tratamientos SWP y SWP, en relación con el control SWP, pero no se observó una diferencia significativa entre los tratamientos SWP y SWP.

4. Discusión
Los polisacáridos de algas marinas se reconocen como moléculas activas de alto valor que mejoran el rendimiento del crecimiento, mejoran la respuesta del sistema inmunitario y tienen muchos beneficios para la salud de los organismos acuícolas [2,54,93–97]. En el presente estudio, planteamos la hipótesis de que la administración dietética de polisacáridos derivados de algas pardas (Sargassum centifolia) mejora el rendimiento del crecimiento, la utilización del alimento, la composición corporal, las comunidades microbianas y las expresiones de los genes de crecimiento, inmunidad y estrés del camarón de patas blancas L .vannamei. El ensayo de alimentación actual demostró que la ganancia de peso de L. vannamei mejoró significativamente al aumentar los niveles de polisacáridos en la dieta comercial en comparación con la dieta de control. Los hallazgos actuales son paralelos a los estudios previos realizados en diferentes especies de camarones y peces.
Por ejemplo, Lee et al. [98] informaron que el extracto de agua caliente del alga parda Sargassum horneri mejora significativamente el rendimiento del crecimiento, estimula las inmunidades innatas y mejora las expresiones génicas inmunitarias del camarón L. vannamei y recomendaron que el nivel de inclusión ideal es de 5 g kg–1. Además, el estudio de Liu et al. [99] investigó el impacto de diferentes niveles de inclusión (0, 1, 2 y 3 g kg–1) de polisacáridos extraídos de algas verdes (Enteromorpha) en la dieta de camarones bananeros F. merguiensis y concluyó que 1 g kg–1 mejora significativamente el rendimiento del crecimiento, mejora la inmunidad no específica y modula la función intestinal de F. merguiensis, mientras que Abdulrahman et al. [2] investigaron el efecto de diferentes tasas de inclusión en la dieta (0, 10, 20 y 30 g kg–1) de polisacáridos obtenidos del alga parda S. dentalium en la tilapia roja híbrida, y concluyeron que los 30 g kg–1 alcanzó el mayor rendimiento de crecimiento significativo, FCR e índices hematológicos. Sin embargo, la inconsistencia en los niveles de inclusión entre estos estudios puede deberse a los diferentes pesos iniciales, especies de algas, especies (especies de peces y camarones), edad, etc.

La abundancia de microbiota intestinal responde rápidamente a las variaciones en la ingesta, la composición y los componentes de la dieta. Por lo tanto, tiene un gran impacto en los beneficios para la salud de todos los organismos acuáticos, como el consumo de alimentos, la digestión, la utilización de nutrientes, la absorción y las respuestas inmunitarias [22,87,100,101]. En la actualidad, la evaluación de la resistencia a enfermedades es importante en la industria de la acuicultura, la actividad del factor inmunitario y antioxidante en sangre es un buen indicador del estado de salud para investigar la respuesta inmunitaria y la resistencia a enfermedades en L. vannamei, como el virus del síndrome de la mancha blanca (WSSV) [ 49] y Vibrio alginolyticus [102]. Las especies reactivas de oxígeno (ROS) son moléculas químicamente reactivas que contienen oxígeno, como los iones de oxígeno y los peróxidos. Cantidades excesivas de ROS pueden afectar la estructura y la estabilidad de las proteínas funcionales, los ácidos grasos insaturados y los ácidos nucleicos, causando daño oxidativo al sistema inmunológico del organismo y aumentando la susceptibilidad a los patógenos en los camarones [73]. Por lo tanto, la salud de los organismos acuáticos depende del equilibrio entre la producción de ROS y enzimas antioxidantes como SOD y GPx que protegen las células animales contra los radicales libres. Los hallazgos actuales mostraron que los polisacáridos dietéticos derivados de algas pardas (S. centifolia) mejoraron de manera efectiva las actividades de las enzimas antioxidantes, incluidas SOD y GPx. De manera similar, las actividades SOD y GPx de diferentes crustáceos aumentaron después de alimentar dietas suplementadas con polisacáridos de Angelica sinensis en camarones de patas blancas [60] y -glucano [103], y polisacáridos de Rhodiola rosea en cangrejos de río [104].
El trabajo actual informó que, en comparación con SWP{{0}}, los recuentos de THB y TVC disminuyeron significativamente (p > 0.05) con el aumento en los niveles de inclusión de polisacáridos (SWP1, SWP2 y SWP3). Estos resultados concuerdan con los informados en el estudio de Mansour et al. [87] quienes encontraron que los niveles crecientes de astaxantina, extraída de la cepa de cianobacteria, Arthrospira platensis NIOF17/003, en la dieta de L. vannamei disminuyeron significativamente (p > 0.05) los recuentos de THB y TVC. Sin embargo, el mecanismo de acción de cómo el polisacárido de algas afecta la abundancia de microbiota aún no está claro y requiere más estudios [87,101].
Varios genes involucrados en la respuesta inmunológica fueron el foco de la investigación actual. En el tratamiento con SWP3, la expresión del gen regulador al alza fue notablemente mayor. Los resultados mostraron una mayor expresión con los tratamientos en comparación con el control (SWP0), lo que sugiere que el polisacárido puede mejorar el estado inmunológico de los camarones a través de las paredes celulares microbianas compuestas de peptidoglicanos, lipopolisacáridos (LPS) y -1 , 3-glucanos, que pueden activar la respuesta inmunitaria de los camarones al desencadenar el principal mecanismo de defensa no específico [22,87,105,106].
La profenoloxidasa es una enzima crucial en la inmunidad humoral de los invertebrados que promueve la melanización para deshacerse de los patógenos invasivos [107] y está relacionada con la esclerotización de la cutícula y la cicatrización de heridas [108]. Los invertebrados tienen un sistema de no autorreconocimiento llamado sistema de activación ProPO, que puede detectar y reaccionar ante intrusos usando peptidoglicano o lipopolisacáridos de bacterias y -1, 3-glucanos de hongos [109]. Se demostró que la expresión de ARNm del gen ProPO era considerablemente mayor en todos los tratamientos en comparación con el grupo de control, y se encontró que esta expresión era la mayor entre todos los genes investigados a medida que aumentaba el contenido de polisacáridos de algas marinas (3 g kg–1 de dieta) . La alimentación de camarones P. monodon con una dieta que incluía el polisacárido fucoidan del alga parda S. wightii aumentó la expresión del gen ProPO [110]. Algunos otros suplementos dietéticos derivados de microalgas y algas marinas elevaron el sistema ProPO de los camarones y mejoraron la respuesta inmune humoral. Nuestros hallazgos son consistentes con estudios previos realizados sobre L. vannamei [22,87].
La crustina, definida como parte del sistema inmunitario innato [111], es una proteína que se encuentra en los gránulos de hemocitos de los crustáceos y es eficaz contra varios microorganismos. En este estudio, las dietas suplementadas con el polisacárido extraído aumentaron la expresión del gen Crustin y hubo una clara diferencia entre los tres tratamientos. Se ha observado una elevación significativa de los niveles de ARNm de Crustin en Marsupenaeus japonicus después de la administración de peptidoglicano [112]. El gen Crustin se reguló positivamente (p < 0.05) en el camarón blanco del Pacífico L. vannamei al que se administró astaxantina suplementaria [87,113]. Como proteína que se encuentra en eucariotas y procariotas, la lisozima existe desde hace bastante tiempo y se considera una de las primeras proteínas antibacterianas conocidas [114]. La inmunidad innata no específica se basa en su capacidad para descomponer el enlace glicosídico b -1,4 entre el ácido N-acetilmurámico y la N-acetilglucosamina en el peptidoglicano de la pared celular bacteriana [115].
En la investigación actual, se demostró que la expresión del gen de Ly era considerablemente mayor en los grupos de tratamiento (SWP1, SWP2 y SWP3) que en el grupo de control (SWP0). Otra investigación transcriptómica que utilizó especies que enfrentan desafíos ambientales también produjo hallazgos similares [116,117]. Estos hallazgos demostraron que la lisozima es una parte crucial del mecanismo de defensa antibacteriano del camarón y es provocada por una variedad de sustancias inmunoestimulantes. Las enzimas antioxidantes catalasa y glutatión peroxidasa convierten el peróxido de hidrógeno en oxígeno y agua, mientras que la SOD, uno de los genes del estrés, participa en la eliminación de los aniones superóxido al convertirlos en peróxido de hidrógeno y agua [118]. En consecuencia, estas enzimas antioxidantes otorgan autoprotección posfagocitosis a los hemocitos de animales que respiran oxígeno, preservando así la salud y viabilidad de los organismos [119,120]. En comparación con el control, la expresión del gen SOD se elevó en las tres condiciones experimentales, e investigaciones previas [22,87,113,116] indicaron que el aditivo alimentario aumentó la expresión del gen SOD, que está involucrado en el sistema de enzimas antioxidantes en L. .vannamei.
En el sistema de defensa del glutatión, GPx es responsable de la reducción del peróxido de hidrógeno a agua [117,121]. En nuestra investigación, se encontró que la expresión de GPx era mayor en el tratamiento SWP3 donde se utilizó una mayor concentración de polisacáridos de algas. Por lo tanto, ambos genes de estrés en este estudio están significativamente regulados al alza en comparación con el grupo de control, y las actividades de SOD y GPx aumentan junto con un aumento en el anión superóxido (O2 -) y el peróxido de hidrógeno (H2O2), lo que puede indicar aumentos en la actividad de NADPH-oxidasa y la producción de una masa de especies reactivas de oxígeno (ROS) que pueden representar un mecanismo de defensa contra la infección microbiana [73,122]. Investigaciones recientes han evaluado la expresión de genes involucrados en la inmunidad en camarones [123,124] y se han concentrado en formas de estimular sus defensas naturales.
Hay dos tipos de hormonas peptídicas del factor de crecimiento similar a la insulina (IGF), IGF-I e IGF-II; también hay receptores de superficie celular y proteínas de unión circulantes. IGF-II, como IGFI, tiene un papel en el metabolismo de las proteínas, la diferenciación celular, la proliferación celular y el crecimiento somático. Según los hallazgos del estudio actual, parece que la extracción de polisacáridos de algas marinas puede aumentar la expresión de genes relacionados con el crecimiento a nivel de ARNm, lo que aumenta indirectamente la capacidad de crecimiento. Otros estudios que examinaron el impacto del empleo de diferentes fuentes de carbono para impulsar la expresión génica de IGF-I e IGF-II revelaron resultados similares [123]. Además, la utilización de nanopartículas de microalga verde, T. suecica y A. platensis como alimentos complementarios para L. vannamei aumentó en gran medida la expresión de ambos genes y mejoró el crecimiento [22,100].

5. Conclusiones
A nivel mundial, las dietas de los camarones se han expandido mediante el uso de varias estrategias para hacer frente al desarrollo en el cultivo del camarón patiblanco del Pacífico L. vannamei. A pesar de la importancia de los aditivos alimentarios para L. vannamei, se sabe poco sobre la aplicación de polisacáridos preparados a partir de algas pardas en la industria de aditivos alimentarios de L. vannamei. En el trabajo actual, la tasa de inclusión de 2 g kg–1 de polisacáridos, una molécula activa de alto valor preparada a partir del alga parda Sargassum dentiforme, como aditivo dietético, mejora la ganancia de peso final y la tasa de supervivencia del camarón pata blanca del Pacífico, L. vannamei, mientras que el nivel de incorporación de 3 g kg–1 reduce la abundancia de microbios patógenos y, además, mejora la inmunidad y las expresiones génicas relacionadas con el estrés de L. vannamei. Sin embargo, se deben realizar más estudios para maximizar los beneficios de los polisacáridos preparados a partir de especies de algas como administraciones aditivas al camarón patiblanco del Pacífico L. vannamei.
Contribuciones de autor:
Conceptualización, EMA, ZZS y MA; metodología, EMA, ZZS y MA; software, EMA, ZZS y MA; validación, EMA, ZZS, MA y EE-H.; análisis formal, EMA, ZZS y MA; investigación, EMA, ZZS, MA y EE-H.; recursos, EMA, ZZS y MA; curación de datos, EMA, ZZS y MA; redacción—preparación del borrador original, EMA, ZZS y MA; redacción—revisión y edición, EMA, ZZS, MA, ASA-S. y EE-H.; visualización, EMA, ZZS, MA y EE-H.; supervisión, ZZS, MA y EE-H.; administración de proyectos, EMA; adquisición de fondos, EMA, ZZS, MA y ASA-S. Todos los autores han leído y aceptado la versión publicada del manuscrito.
Fondos:
Esta investigación no recibió financiación externa.
Declaración de la Junta de Revisión Institucional:
El Comité de Investigación de NIOF, Egipto, aprobó el cumplimiento de los estándares éticos en la configuración experimental y el manejo de camarones, número de aprobación: NIOF/AQ3/1/22/R/012 el 22 de enero de 2021.
Declaración de consentimiento informado: No aplicable.
Declaración de disponibilidad de datos: No aplicable.
Agradecimientos: El acceso abierto de este trabajo fue apoyado parcialmente por la Unidad de Acuicultura AL Hail, Departamento de Ciencias Marinas y Pesca, Facultad de Agricultura y Ciencias Marinas, Universidad Sultan Qaboos, Omán.
Conflictos de interés: Los autores declaran no tener ningún conflicto de interés.
Referencias
1. Abbas, EM; Ali, FS; Desouky, MG; Ashur, M.; El-Shafei, A.; Maaty, MM; Sharawy, ZZ Nuevo estudio molecular y ecológico integral que presenta el camarón de lodo costero (Solenocera crassicornis) registrado en el golfo de Suez, Egipto. J. Mar. Sci. Ing. 2020, 9, 9. [Referencia cruzada]
2. Abdelrhman, AM; Ashur, M.; Al-Zahaby, MA; Sharawy, ZZ; Nazmi, H.; Zaki, MA; Ahmed, Nueva Hampshire; Ahmed, SR; El-Haroun, E.; Van Doan, H. Efecto de los polisacáridos derivados de la macroalga marrón Sargassum dentalium sobre el rendimiento del crecimiento, la bioquímica sérica, la histología digestiva y la actividad enzimática de la tilapia roja híbrida. Aquac. Rep. 2022, 25, 101212. [Referencia cruzada]
3. Goda, A.; Sad, A.; Hanafy, M.; Sharawy, Z.; El-Haroun, E. Efectos dietéticos de Azolla pinnata combinados con enzimas digestivas exógenas (Digestin™) sobre el crecimiento y la utilización de nutrientes del camarón de agua dulce, Macrobrachium rosenbergii (de Man 1879). J. Oceanol. Limnol. 2018, 36, 1434–1441. [Referencia cruzada]
4. Sharawy, ZZ; Abbas, EM; Abdelkhalek, NK; Ashry, OA; Abd El-Fattah, LS; El Sawy, MA; Helal, MF; El-Haroun, E. Efecto de la fuente de carbono orgánico y las densidades de población sobre los índices de crecimiento, la microflora del agua y la expresión de genes relacionados con el sistema inmunológico de las larvas de Litopenaeus vannamei en cultivo intensivo. Acuicultura 2022, 546, 737397. [Referencia cruzada]
5. Gillett, R. Estudio global de la pesca del camarón. Tecnología pesquera de la FAO. Papilla. 2008, 475, 25–29.
6. Ahmed, N.; Thompson, S.; Glaser, M. Productividad acuícola mundial, sostenibilidad ambiental y adaptabilidad al cambio climático. Reinar. Administrar 2019, 63, 159–172. [Referencia cruzada] [PubMed]
7. Lukwambe, B.; Nicolás, R.; Zhang, D.; Yang, W.; Zhu, J.; Zheng, Z. Cambios sucesivos de la comunidad de microalgas en respuesta a los probióticos comerciales en los sistemas de cultivo intensivo de camarones (Litopenaeus vannamei Boone). Acuicultura 2019, 511, 734257. [Referencia cruzada]
8. Li, E.; Xu, C.; Wang, X.; Wang, S.; Zhao, Q.; Zhang, M.; Qin, JG; Chen, L. La microbiota intestinal y su modulación para el cultivo saludable del camarón blanco del Pacífico Litopenaeus vannamei. Rev. Pescado. ciencia Aquac. 2018, 26, 381–399. [Referencia cruzada]
9. Stevens, C.; Croft, D.; Paull, G.; Tyler, C. Estrés y bienestar en peces ornamentales: ¿Qué se puede aprender de la acuicultura? J. Pescado Biol. 2017, 91, 409–428. [Referencia cruzada]
10. El-Sayed, AFM Uso de la tecnología biofloc en la acuicultura del camarón: una revisión exhaustiva, con énfasis en la última década. Rev. Aquac. 2021, 13, 676–705. [Referencia cruzada]
11. Anh, NTN; Shayo, FA; Nevejan, N.; Van Hoa, N. Efectos de las densidades de población y las tasas de alimentación sobre la calidad del agua, la eficiencia de la alimentación y el rendimiento del camarón pata blanca Litopenaeus vannamei en un sistema integrado con uva marina Caulerpa lentillifera. Aplicación J. Phycol. 2021, 33, 3331–3345. [Referencia cruzada]
12. Emerenciano, MG; Rombenso, AN; Vieira, FdN; Martín, MA; Coman, GJ; Truong, HH; Noble, TH; Simon, CJ Intensificación del cultivo de camarones Penaeid: una revisión aplicada de los avances en los sistemas de producción, nutrición y reproducción. Animales 2022, 12, 236. [CrossRef] [PubMed]
13. Mansur, AT; Ashry, OA; Ashur, M.; Alsaquífi, AS; Ramadán, KM; Sharawy, ZZ La optimización del nivel de proteína en la dieta y las fuentes de carbono en los valores nutritivos del biofloc, la abundancia bacteriana y el crecimiento de los juveniles de camarón pata blanca (Litopenaeus vannamei). Life 2022, 12, 888. [CrossRef] [PubMed]
14. Mansur, AT; Ashry, OA; El-Neweshy, MS; Alsaquífi, AS; Dighiesh, SA; Ashur, M.; Kelany, MS; El Sawy, MA; Mabrouk, MM; Abbas, Efecto EM de los subproductos agrícolas como fuente de carbono en un sistema basado en biofloc sobre el rendimiento del crecimiento, las actividades de las enzimas digestivas, la histología del hepatopáncreas y la carga bacteriana intestinal de las postlarvas de Litopenaeus vannamei. J. Mar. Sci. Ing. 2022, 10, 1333. [Referencia cruzada]
15. Iber, BT; Kasan, NA Avances recientes en la gestión de aguas residuales de la acuicultura del camarón. Heliyon 2021, 7, e08283. [Referencia cruzada] [PubMed]
16. Zaki, MA; Ashur, M.; Heneash, AMM; Mabrouk, MM; Alprol, AE; Khairy, HM; Nour, AM; Mansur, AT; Hassanien, HA; Gaber, A.; et al. Aplicaciones potenciales del aislado nativo de cianobacterias (Arthrospira platensis NIOF17/003) para la producción de biodiesel y la utilización de su subproducto en la producción de rotíferos marinos (Brachionus plicatilis). Sostenibilidad 2021, 13, 1769. [CrossRef]
17. Abisha, R.; Krishnani, KK; Sukhdhane, K.; Verma, A.; Brahmane, M.; Chadha, N. Desarrollo sostenible de la acuicultura resistente al clima y la pesca basada en el cultivo a través de la adaptación de las tensiones abióticas: una revisión. J. Agua Clim. Cambio 2022, 13, 2671–2689. [Referencia cruzada]
18. Alprol, AE; Ashur, M.; Mansur, AT; Alzahrani, OM; Mahmoud, SF; Gharib, SM Evaluación de la calidad del agua y la estructura del fitoplancton de ocho playas de Alejandría, sureste del mar Mediterráneo, Egipto. J. Mar. Sci. Ing. 2021, 9, 1328. [Referencia cruzada]
19. Metwally, AS; El-Naggar, HA; El-Damhougy, KA; Bashar, MAE; Ashur, M.; Abo-Taleb, análisis HAH GC-MS de componentes bioactivos en seis extractos crudos diferentes del coral blando (Sinularia maxim) recolectado de Ras Mohamed, Golfo de Aqaba, Mar Rojo, Egipto. Egipto. J. Aquat. Biol. Pez. 2020, 24, 425–434. [Referencia cruzada]
20. Maguz, FI; Essa, MA; Materia, M.; Tageldein Mansour, A.; Alkafafy, M.; Ashour, M. Dinámica de población, fecundidad y composición de ácidos grasos de Oithona nana (Cyclopoida, Copepoda), alimentados con diferentes dietas. Animales 2021, 11, 1188. [Referencia cruzada]
21. Kesselring, J.; Gruber, C.; Standen, B.; Wein, S. Efecto de un aditivo alimentario fitogénico sobre el rendimiento del crecimiento y la inmunidad del camarón pata blanca del Pacífico, Litopenaeus vannamei, alimentado con una dieta baja en harina de pescado. J. Mundo Aquac. Soc. 2021, 52, 303–315. [Referencia cruzada]
22. Sharawy, ZZ; Ashur, M.; Labena, A.; Alsaquífi, AS; Mensour, AT; Abbas, E. Efectos de las nanopartículas dietéticas de Arthrospira platensis sobre el rendimiento del crecimiento, la utilización del alimento y la expresión génica relacionada con el crecimiento del camarón blanco del Pacífico, Litopenaeus vannamei. Acuicultura 2022, 551, 737905. [Referencia cruzada]
23. Ceseña, CE; Jacinto, CE; González, AL; Villasante, FV; Castro, RMM; Ochoa, N.; Montes, RE; Ramírez, DT; Ortíz, ACS; Campa-Córdova, AI La suplementación dietética de Debaryomyces hansenii mejoró la supervivencia, la respuesta antioxidante y la inmunológica en juveniles de camarón Penaeus vannamei desafiados con Vibrio parahaemolyticus. trop. Subtropo. Agroecosistema. 2021, 24, 2. [Referencia cruzada]
24. Mansur, AT; Ashur, M.; Alprol, AE; Alsaqufi, AS Plantas y animales acuáticos en el contexto de la sostenibilidad: técnicas de cultivo, integración y revolución azul. Sostenibilidad 2022, 14, 3257. [CrossRef]
25. Hassan, SM; Ashur, M.; Solimán, AAF; Hassanien, HA; Alsanie, WF; Gaber, A.; Elshobary, ME El potencial de un nuevo extracto comercial de algas para estimular las propiedades morfoagronómicas y bioactivas de Eruca vesicaria (L.) Cav. Sustentabilidad 2021, 13, 4485. [CrossRef]
26. Essa, D.; Abo-Shady, A.; Khairy, H.; Abomohra, AE-F.; Elshobary, M. Cultivo potencial de microalgas oleaginosas halófilas en aguas residuales industriales. Egipto. J.Bot. 2018, 58, 205–216. [Referencia cruzada]
27. Mansur, AT; Alprol, AE; Abualnaja, KM; El-Beltagi, HS; Ramadán, KMA; Ashour, M. Potencial de fitorremediación de algas pardas secas para la eliminación del tinte azul de metileno de ambientes acuáticos. Polímeros 2022, 14, 1375. [Referencia cruzada]
For more information:1950477648nn@gmail.com


