Diafonía entre la microbiota intestinal y la inmunidad del huésped: impacto en la inflamación y la inmunoterapia(2)
Oct 24, 2023
7.2. Infecciones gastrointestinales
Dependiendo del contexto, la microbiota intestinal puede proteger al huésped o aumentar el riesgo de infección por patógenos exógenos. El papel del microbioma como fuerza protectora está respaldado por investigaciones que indican que los microbiomas inmaduros de los recién nacidos son más susceptibles a la invasión de patobiontes [222]. Existen varios mecanismos diferentes mediante los cuales los comensales pueden prevenir la colonización por patógenos y proteger contra infecciones, incluida la competencia por recursos, la liberación de bacteriófagos y la producción de metabolitos antimicrobianos [237-241]. Por el contrario, se ha demostrado que los metabolitos del microbioma, como el ácido 4-metil benzoico, el ácido 3,4-dimetilbenzoico, el ácido hexanoico y el ácido heptanoico, aumentan el daño epitelial del colon, como se observa en la E. coli enterohemorrágica. en un modelo de órgano en un chip [223]. Además, el sobrenadante tomado del comensal Escherichia albertii también puede aumentar la virulencia de especies de E. coli diarreógenas, lo que da como resultado un aumento de IL-8 mediado por TLR-8 y un aumento general de la respuesta proinflamatoria de las células intestinales del huésped. [242]. La presencia de ciertos comensales y los cambios en la composición del microbioma están relacionados con la susceptibilidad a la infección por organismos como Clostridium difficile, Salmonella typhimurium, Escherichia coli, Enterococcus spp. resistente a la vancomicina y Citrobacter rodentium [238,239,241,243–245]. Uno de los mejores ejemplos involucra la CDI, donde las células inmunes innatas son estimuladas por toxinas de C. difficile a través del inflamasoma y las vías de señalización TLR4, TLR5 y la proteína 1 que contiene el dominio de oligomerización de unión a nucleótidos (NOD1) [246,247]. Numerosas citocinas proinflamatorias (como interleucina (IL)-12, IL-1, IL-18, interferón gamma (IFN-) y factor de necrosis tumoral (TNF)) y quimiocinas (MIP-1a, MIP-2 e IL-8) se producen posteriormente, lo que produce un aumento de la permeabilidad de la mucosa, desgranulación de los mastocitos, muerte de las células epiteliales e infiltración neutrofílica [248]. . Es importante destacar que la CDI suele ser el resultado de una alteración de la microbiota intestinal mediada por antibióticos [249]. La erradicación de bacterias beneficiosas en el intestino mediante ciertos antibióticos, particularmente clindamicina, permite que C. difficile florezca [250], lo que resulta en colitis y diarrea posterior [251,252]. Además de la disbiosis de la microbiota intestinal, las poblaciones de células inmunitarias, como las células que expresan Th17- e IL-17-, pueden promover la CDI recurrente [253]. Comparativamente, las ILC activadas con IL-33-pueden prevenir la CDI [254]. Dado que el agotamiento de la microbiota intestinal es una de las principales causas de ICD, las intervenciones que restablezcan los microbios podrían tener valor terapéutico. Los prebióticos, como la fibra dietética y sus subproductos fermentados, es decir, SCFA, son posibles tratamientos para la CDI. Por ejemplo, las fibras dietéticas, como la pectina, pudieron restaurar la eubiosis de la microbiota intestinal (indicada por un aumento de Lachnospiraceae y una disminución de Enterobacteriaceae) y aliviar la inflamación después de la colitis inducida por C. difficile [255]. De manera similar, se descubrió que la bacteria productora de butirato Clostridium butyricum protege contra la CDI al aumentar los neutrófilos y las células Th1 y Th17 en la fase inicial de la infección; esto fue independiente de la señalización de GPR43 y GPR109a [256]. Como se menciona en la Sección 6.2, la CDI puede tratarse eficazmente mediante FMT [152]. El FMT está respaldado además por un estudio anterior que demostró que una terapia de ecosistema microbiano, que consta de 33 cepas bacterianas aisladas de heces humanas, podría tratar la colitis por C. difficile resistente a los antibióticos [257]. Es de destacar que se observaron observaciones similares cuando se aplicó la Terapéutica del Ecosistema Microbiano a la infección por Salmonella typhimurium [258]. Estos hallazgos enfatizan que la modulación adecuada de la microbiota intestinal y las respuestas inmunes es imperativa para prevenir y combatir las infecciones.

efectos de la cistance-tratar el estreñimiento
7.3. Enfermedades inflamatorias del intestino
Las enfermedades inflamatorias intestinales (EII) se desarrollan debido a defectos en diversos factores, como el medio ambiente, los microbios intestinales, el sistema inmunológico y factores genéticos. La EII implica una inflamación crónica del tracto gastrointestinal. La enfermedad de Crohn (EC) y la colitis ulcerosa (CU) son dos afecciones clínicas distintas de la EII según las características histopatológicas, la ubicación de la enfermedad en el TGI y los síntomas [259]. En la EII, las bacterias mucolíticas y las bacterias patógenas degradan la barrera mucosa y aumentan la invasión de patógenos en los tejidos intestinales profundos [224,260-262]. Las alteraciones en la composición de la microbiota intestinal se han relacionado en gran medida con el desarrollo y la progresión de la EII. Los pacientes con EII muestran poblaciones reducidas de Firmicutes y una expansión de Proteobacteria, Bacteroidetes, Enterobacteriaceae y Bilophila [263-265]. Además, muchas especies de bacterias proinflamatorias están recubiertas de IgA, como se observa en pacientes con EII y modelos de ratón con colitis [266,267]. Los microbios intestinales parecen desempeñar un papel directo en el desarrollo de la EII, según la evidencia de que los ratones libres de gérmenes están protegidos contra la colitis [268]. Esto se ve reforzado por el descubrimiento de que la implantación de microbios intestinales de ratones con EII en ratones libres de gérmenes provocó EII en el último grupo [268]. Del mismo modo, las madres con EII pueden esencialmente transferir una 'microbiota de EII' a la descendencia, por lo que las crías tienen una diversidad microbiana reducida y menos células B de memoria con cambio de clase y células Treg en el colon [269]. El fuerte vínculo entre la microbiota y la EII ha impulsado enfoques metagenómicos para ayudar a identificar mejor objetivos diagnósticos y terapéuticos [270]. Se propone FMT como un tratamiento potencial, donde se encontró que los pacientes con CU tratados tenían una mayor abundancia de Faecalibaterium que se correspondía con menos células ROR t + Th17 y más células Foxp3+ CD4+ Treg [166]. También se cree que la administración de SCFA es un tratamiento potencial para pacientes con EII [271]. La evidencia de respaldo incluye la inhibición mediada por butirato de las respuestas proinflamatorias de los neutrófilos, es decir, NET en ratones con colitis [272]. Existen informes contradictorios sobre si la fibra dietética, el precursor de los SCFA, podría ser una intervención beneficiosa para los pacientes con EII. Por un lado, se descubrió que una mezcla específica de múltiples fibras contrarresta la inflamación intestinal mediante el aumento de IL-10 y células Treg [273]. Por el contrario, los hallazgos de nuestra investigación indican una dicotomía en las reacciones de las fibras prebióticas en ratones con cólicos, donde la pectina podría aliviar la inflamación en comparación con la inulina, lo que agravó la patología de la enfermedad [274]. Además, nuestro estudio sugirió que el butirato podría ser un metabolito microbiano perjudicial al aumentar la señalización inflamatoria de NLRP3 [274]. Comparativamente, un cóctel de probióticos alivió la inflamación al cambiar la microbiota intestinal a un perfil antiinflamatorio que incluía Akkermansia y Bifidobacterium [275]. Estos hallazgos en conjunto indican que se requiere más investigación para comprender las fibras prebióticas y los SCFA en la EII antes de implementarlos en las clínicas. Además de los SCFA, los ácidos biliares secundarios están implicados en la EII. Se ha demostrado que el DCA induce inflamación intestinal [276,277]. Esto podría deberse, en parte, a la inhibición de la función de las células de Paneth mediada por ácidos biliares [278]. Sin embargo, los ácidos biliares secundarios asociados a la colecistectomía, incluido el DCA, mejoraron la colitis en ratones al inhibir el reclutamiento de monocitos/macrófagos [279]. Además, el AUDC también puede reducir la gravedad de la colitis al prevenir la pérdida del grupo XIVa de Clostridium y aumentar la abundancia de A. muciniphila [280]. Los diferentes efectos de los ácidos biliares podrían estar relacionados con su estructura química y posibles restos conjugados. Por ejemplo, los ácidos biliares secundarios sulfatados pueden ejercer más efectos proinflamatorios en comparación con sus homólogos no conjugados, como se observa en pacientes con EII [281]. Ciertamente, es necesario realizar más perfiles metabolómicos para comprender el perfil de ácidos biliares en pacientes con EII y determinar los efectos pro o antiinflamatorios de cada tipo de ácido biliar. En general, parece que tanto los SCFA como los ácidos biliares secundarios tienen efectos antiinflamatorios en el intestino (Figura 1A, B). En los últimos años se han identificado varios genes de susceptibilidad que aumentan el riesgo de EII. La investigación actual se centra en la idea de que la predisposición genética, la disbiosis y los factores ambientales, como los antibióticos, actúan en conjunto hacia la EII. La proteína 2 que contiene el dominio de oligomerización de unión a nucleótidos (NOD2, una proteína de reconocimiento intracelular inmunológico) identifica el dipéptido muramil intracelular (MDP), un componente integral de las paredes celulares bacterianas [282]. La pérdida de la función NOD2 afecta la inhibición de la activación de NF-κB mediada por TLR2-, lo que resulta en una respuesta Th1 hiperactiva y una tolerancia inmunológica debilitada a los microbios [282]. Además, varios otros genes que aumentan la susceptibilidad a la EII, incluido el 16-like 1 relacionado con la autofagia (ATG16L1), la proteína 9 que contiene el dominio de reclutamiento de caspasa (Card9) y el miembro A de la familia 7 del dominio de lectina tipo C (CLEC7A) , desregulan las respuestas de las células T y crean disbiosis de la microbiota intestinal, lo que también contribuye a la EII [283-285]. Los estudios futuros deberían explorar si existen polimorfismos de un solo nucleótido en genes relacionados con la producción de metabolitos microbianos en pacientes con EII.

Beneficios de la cistanche tubulosa-fortalecer el sistema inmunológico
7.4. Carcinoma colorrectal (CCR)
Un creciente cuerpo de literatura sugiere un papel de la microbiota en el desarrollo y progresión del cáncer. En escenarios en los que el sistema inmunológico tiene un desarrollo desadaptativo, la disbiosis de la microbiota intestinal se convierte en un alto riesgo y la expansión de ciertos microbios puede resultar en la producción de toxinas mutagénicas [286]. Estas genotoxinas incluyen la toxina Bacteroides fragilis (Bft), la toxina distendiente citoletal (CDT) y la colibactina [225]. Sin embargo, estos resaltan solo una pequeña cantidad de toxinas relacionadas con bacterias donde se necesita más investigación para identificar y comprender el potencial carcinogénico de toda la gama de microbios intestinales [225]. Los pólipos adenomatosos y serrados son dos lesiones precancerosas que a menudo progresan hasta convertirse en cáncer colorrectal (CCR). En pacientes con adenomas, varias especies, incluidas Bilophila, Desulfovibrio, Mogibacterium y el filo Bacteroidetes, aumentan en las heces, mientras que los pacientes con pólipos serrados mostraron aumentos en los taxones Fusobacteria y la clase Erysipelotrichia [226]. Fusobacterium nucleatum (F. nucleatum) se caracteriza por ser un microbio importante en la progresión del CCR [287,288]. F. nucleatum promueve la señalización de TLR4 y la señalización de E-cadherina/-catenina, lo que en última instancia conduce a la activación de NF-κB y reduce la expresión de miR-1322 [289]. Los microARN reguladores, como miR-1322, pueden regular directamente la expresión de CCL20, una citocina que promueve la metástasis del CCR [287]. Otra literatura señala a la adhesina A de F. nucleatum (FadA) como un factor de virulencia clave que permite que F. nucleatum se adhiera, invada y erosione los epitelios del colon [227]. Más recientemente, un estudio encontró que F. nucleatum puede promover el CCR al suprimir la inmunidad antitumoral mediante la activación de los receptores inhibidores CEACAM1 y TIGIT1, que regulan negativamente las células NK y las células T [290]. También se demostró que la cepa Fn7-1 de F. nucleatum agrava el desarrollo del CCR al elevar las respuestas Th17 [74]. Estos hallazgos sobre F. nucleatum son alarmantes porque se trata de una bacteria productora de SCFA [291] y, en general, los SCFA se han destacado como una vía terapéutica potencial para muchas enfermedades inflamatorias. F. nucleatum produce predominantemente acetato y butirato, donde recientemente se sugirió que F. nucleatum induce Th17 a través del receptor 2 de ácidos grasos libres (FFAR2), un receptor SCFA [74]. Sin embargo, la pérdida de FFAR2 en ratones agravó la carga bacteriana del tumor y sobreactivó las CD, lo que eventualmente promovió el agotamiento de las células T [292]. Además, se descubrió que el butirato de la fibra dietética se metaboliza menos en las células CCR debido al efecto Warburg, lo que le permite actuar como inhibidor de HDAC y promover la acetilación de genes relacionados con la apoptosis [293]. Estos hallazgos enfatizan que los efectos patológicos de F. nucleatum podrían ser independientes de los SCFA, pero se necesitan más estudios para determinar esta posibilidad. Otro mecanismo propuesto en el desarrollo del CCR sugiere que la ingesta dietética excesiva de azúcares, proteínas y lípidos podría promover el crecimiento de microbios tolerantes a la bilis, que aumentan la producción de ácidos biliares secundarios, como DCA y LCA, y sus subproductos. como el sulfuro de hidrógeno. El exceso de ácidos biliares secundarios es genotóxico y puede producir un ambiente proinflamatorio que podría promover el desarrollo del CCR [226]. En particular, el DCA puede estimular la carcinogénesis intestinal activando la liberación dependiente del receptor del factor de crecimiento epidérmico de la metaloproteasa ADAM-17 [294].

efectos de la cistance-tratar el estreñimiento
El DCA también activa la señalización de -catenina [295] e impulsa transformaciones malignas en células madre cancerosas que expresan Lgr5- (Lgr5+) [296] para el crecimiento y la invasividad del CCR. Sin embargo, las bacterias asociadas con la producción de ácidos biliares secundarios, es decir, Clostridium cluster XlVa, disminuyeron significativamente en pacientes con EII, lo que estuvo acompañado por una transformación reducida de ácidos biliares primarios a secundarios [297]. Además de los ácidos biliares, el metabolito microbiano intestinal folato puede empeorar la patogénesis del CCR al activar la señalización del AhR y expandir los niveles de Th17 [298]. Al igual que con los SCFA, se necesita más investigación para discernir los posibles efectos protumorales de los ácidos biliares derivados de la microbiota intestinal. Existen distintas respuestas inmunológicas dependientes de la microbiota en el CCR. En términos de respuestas inmunes innatas, el enriquecimiento de A. muciniphila facilitó la polarización de los macrófagos M1 de una manera dependiente de NLRP3-que suprimió la tumorigénesis de colon [299]. Asimismo, E. coli adherente intestinal puede aumentar los macrófagos productores de IL-10-, lo que limita la inflamación intestinal y restringe la formación de tumores [300]. En términos de inmunidad adaptativa, la disbiosis microbiana hiperestimula las células T CD8+ para promover la inflamación crónica y el agotamiento temprano de las células T, lo que contribuye a la susceptibilidad a los tumores de colon [301]. Las células cancerosas intestinales también pueden responder a la microbiota induciendo la secreción de IL-6 dependiente de calcineurina, que promueve la expresión tumoral de las moléculas coinhibidoras B7H3/B7H4 que disminuyen las células T CD8+ antitumorales [302]. Comparativamente, la introducción de Helicobacter hepaticus indujo células T auxiliares foliculares que restauraron la inmunidad antitumoral en un modelo de CCR de ratón [303]. En comparación con los macrófagos y las células Th17, las células T δ y las células T de memoria residentes se encontraron en frecuencias más bajas en el tejido colónico de pacientes con CCR [60]. Sería interesante investigar si se podría desarrollar un panel de células inmunitarias para el diagnóstico precoz del CCR.

cistanche tubulosa-mejora el sistema inmunológico
7.5. Carcinoma hepatocelular (CHC)
El carcinoma hepatocelular (CHC), el cáncer primario de hígado más común, es la cuarta causa principal de mortalidad relacionada con el cáncer en todo el mundo [304]. La principal etiología de la patogénesis del CHC proviene de enfermedades hepáticas preexistentes, como la enfermedad del hígado graso no alcohólico (NAFLD) y la esteatohepatitis, que conducen a cirrosis [305]. Esto se complica aún más por otros concomitantes en pacientes con NAFLD, incluida la resistencia a la insulina, la obesidad y los trastornos metabólicos que promueven aún más la inflamación hepática y la tumorigénesis a través de IL-6 y TNF- [306]. El hígado es la "primera parada" para la sangre venosa proveniente de los intestinos, lo que lo hace vulnerable a la microbiota intestinal mediante la translocación microbiana a través de la barrera intestinal-epitelial o el contacto con metabolitos microbianos absorbidos [307]. Los efectos bien conocidos de la disbiosis de la microbiota intestinal antes mencionados, incluida la alteración de la barrera intestinal, la translocación de microbios al torrente sanguíneo y las respuestas inmunitarias inflamatorias posteriores mediante la inducción de PRR por parte de PAMP, como el LPS, están fuertemente correlacionados con la patogénesis de la NAFLD. cirrosis hepática y CHC [228,307]. Si bien durante mucho tiempo se pensó que la disbiosis de la microbiota intestinal precede al desarrollo de CHC, esta relación causal no se ha explorado en profundidad hasta hace poco. Behary, Raposo, et al. descubrieron recientemente, antes de la progresión del CHC, que la disbiosis de la microbiota intestinal va acompañada de una lesión hepática de aparición temprana seguida de una respuesta de citocinas mediada por Th1- y Th17- dependiente de LPS [308]. Una investigación adicional debería determinar si la disbiosis de la microbiota intestinal es una causa o una consecuencia de la lesión hepática que precede al CHC. Se ha observado un aumento de enterobacterias y estreptococos y una reducción de Akkermansia, junto con niveles elevados de mediadores inflamatorios, como CCL3, CCL4, CCL5, IL-8 e IL-13, en pacientes con CHC asociado a NAFLD. 309]. Un estudio más reciente encontró una disminución en la abundancia de bacterias productoras de SCFA y un aumento de bacterias productoras de LPS en pacientes con CHC inducido por cirrosis, pero no hubo evidencia significativa de disbiosis de la microbiota intestinal en otras enfermedades hepáticas, como la hepatitis C, la hepatitis B o el hígado alcohólico. enfermedad [310]. Sin embargo, en términos generales, cabe señalar que las poblaciones microbianas alteradas observadas en múltiples estudios no son consistentes entre sí [309,311–313]. Además, si bien en general se piensa que los SCFA producidos por microbios intestinales tienen varios beneficios para los humanos, recientemente se descubrió que la inulina, un precursor del butirato de SCFA, puede promover la progresión a CHC en ratones disbióticos genéticamente alterados [229]. Otros estudios se han centrado en el impacto de los metabolitos microbianos en el CHC. Por ejemplo, una dieta rica en grasas provocó un crecimiento excesivo en el intestino de organismos grampositivos que generan ácidos biliares secundarios, es decir, DCA [230]. El DCA puede funcionar en conjunto con el ácido lipoteicoico para activar TLR2 y posteriormente regular negativamente la inmunidad antitumoral, creando un microambiente favorable para el desarrollo de CHC [314,315]. En general, parece que los metabolitos de la microbiota intestinal son potencialmente protumorales para el hígado.
7.6. Enfermedad cardiovascular
La enfermedad cardiovascular (ECV) está fuertemente relacionada con el síndrome metabólico, una afección que involucra un conjunto de enfermedades interrelacionadas, principalmente aterosclerosis, NAFLD, hipertensión y diabetes mellitus tipo II (TIIDM), que surgen de una inflamación crónica de bajo grado [316] . Muchas células con alta actividad metabólica, como las células parenquimatosas del hígado y el páncreas, los adipocitos y los miocitos esqueléticos, participan en una extensa comunicación cruzada con las células inmunitarias. Cualquier perturbación del microbioma tiene el potencial de alterar la función inmune del huésped y, por extensión, puede tener la capacidad de causar o alterar procesos patológicos en tejidos metabólicamente activos. Se cree que el reconocimiento de LPS y otros PAMP microbianos por parte de los PRR es un factor clave en este estado inflamatorio de bajo grado [231]. También se observa que el N-óxido de trimetilamina (TMAO), un cometabolito microbiano, causa inflamación de bajo grado a través de la señalización de NF-κB, la activación del inflamasoma y una mayor producción de radicales libres [317,318]. Además, la OTMA provoca aterosclerosis y, por tanto, enfermedades cardíacas al alterar el metabolismo del colesterol en los macrófagos y contribuir a la formación de células espumosas [319]. De hecho, un nivel elevado de OTMA en suero se correlaciona con un mayor riesgo de aterosclerosis, enfermedad de las arterias coronarias, accidente cerebrovascular e inflamación vascular [232,233], y actualmente la OTMA se considera un biomarcador de eventos cardiovasculares adversos [320]. Investigaciones más recientes han descubierto la fenilacetilglutamina (PAGln) como un metabolito microbiano relacionado con la ECV mediante la activación del receptor adrenérgico y efectos protrombóticos [321,322]. Existen múltiples funciones emergentes potenciales para PAGln en medicina cardiovascular, como su uso como marcador de diagnóstico o incluso como predictor de la respuesta al tratamiento con bloqueadores beta en pacientes con ECV [322].
7.7. Diabetes
La diabetes mellitus es una enfermedad separada en dos clases: la diabetes mellitus tipo I (TIDM) implica la destrucción autoinmune de las células de los islotes pancreáticos, mientras que la diabetes mellitus tipo II (TIIDM) implica una insensibilidad adquirida a la insulina. Aunque gran parte de la investigación sobre la microbiota y la diabetes gira en torno a la TIIDM y la obesidad, se ha demostrado que el aumento del consumo dietético de AGCC puede provocar una microbiota alterada y perfiles inmunológicos distintos en pacientes con TIDM [323]. También se demostró que el aumento de SCFA en la dieta, como butirato y acetato, funciona sinérgicamente para conferir protección contra poblaciones de células T autorreactivas y TIDM en ratones [100]. Comparativamente, la administración de Parabacteroides distasonis aceleró el desarrollo de DM1 en un modelo de ratón, y esto se debió a respuestas inmunes aberrantes, incluidas células T CD8+ elevadas y Foxp3+ CD4+ Treg disminuidas. células [324]. Es de destacar que se descubrió que el metabolismo desregulado de los ácidos biliares es un factor predisponente potencial para la autoinmunidad de los islotes y la diabetes tipo 1 [325]. El microbioma y el sistema inmunológico están muy involucrados en la patogénesis de TIIDM. Los aminoácidos de cadena ramificada son producidos por Prevotella copri (P. copri) y Bacteroides vulgatus spp., y P. copri induce directamente resistencia a la insulina en modelos de ratón [326,327]. El agotamiento del comensal A. muciniphila compromete la barrera intestinal, lo que resulta en la translocación de endotoxina al torrente sanguíneo y la posterior activación de los monocitos CCR2+. Esto da como resultado la conversión de células B1a pancreáticas en células 4BL, que liberan mediadores inflamatorios y causan resistencia a la insulina reversible o irreversible [328]. Por otro lado, los metabolitos microbianos, como el ácido linoleico y el ácido docosahexaenoico, tienen efectos protectores contra la resistencia a la insulina y TIIDM a través de efectos antiinflamatorios y prevención de la lipotoxicidad [329]. También se ha demostrado que el FMT reduce los niveles de glucosa en sangre en ayunas y disminuye la resistencia a la insulina en ratones con TIIDM [330]. Además, algunos de los efectos terapéuticos de varios fármacos antidiabéticos pueden deberse, en parte, a su capacidad para alterar la microbiota [331-333].
7.8. Hipertensión
Varios estudios han observado composiciones de microbiomas significativamente alteradas entre ratones normotensos e hipertensos, aunque los perfiles microbianos específicos en ratones hipertensos dependen del modelo de hipertensión utilizado [334-337]. En el modelo de hipertensión con angiotensina II, la falta de microbiota en ratones libres de gérmenes protegió contra la hipertensión en parte al disminuir las poblaciones de células inflamatorias en la sangre [338]. Sin embargo, los ratones libres de gérmenes eran más propensos a sufrir lesiones renales después de un régimen combinado de angiotensina II y una dieta rica en sal [339]. Además, la reintroducción de la microbiota en ratones hipotensos y libres de gérmenes restableció la contractilidad vascular [340]. En general, la composición de la microbiota difiere entre animales hipertensos y normotensos y, curiosamente, la crianza cruzada de cachorros hipertensos con madres normotensas puede reducir la presión arterial en el primer grupo [341]. Al igual que en las enfermedades cardiovasculares, el metabolito intestinal OTMA también tiene relevancia para la hipertensión. Un estudio reciente descubrió que la OTMA exacerbó la vasoconstricción a través de ROS en ratones hipertensos inducidos por angiotensina II [342]. De manera similar, la activación de DC inducida por un alto contenido de sal se asocia con hipertensión mediada por disbiosis microbiana [343]. Comparativamente, el cuerpo cetónico -hidroxibutirato disminuye en ratas hipertensas alimentadas con un alto contenido de sal; rescatar con el precursor -hidroxibutirato 1,3 butanodiol disminuyó la presión arterial y la inflamación renal mediante la prevención del inflamasoma mediado por NLRP3-[344]. Si bien se ha demostrado que HSD en otros lugares disminuye Lactobacillus spp. e inducir poblaciones de células Th17, esto parece ocurrir a través de un mecanismo claramente diferente [176].
7.9. Artritis reumatoide
Cada vez se comprende mejor la patogénesis de la artritis reumatoide (AR), una enfermedad autoinmune sistémica caracterizada principalmente por la inflamación de las articulaciones. La AR es una enfermedad multifactorial con múltiples alelos identificados y factores ambientales que confieren una mayor susceptibilidad a la enfermedad. Un género microbiano potencialmente importante en el desarrollo de la AR es Prevotella. Esto fue identificado por primera vez en 2013 por Scher et al., quienes encontraron que los pacientes con AR de nueva aparición tenían una abundancia significativamente mayor de Prevotella spp., particularmente Prevotella copri, en comparación con los controles sanos [234]. Sin embargo, la población de Prevotella no aumentó en pacientes con AR crónica [234]. Desde entonces, múltiples estudios han encontrado correlaciones adicionales entre varias especies de Prevotella y la AR [345-347]. Sin embargo, no está claro si Prevotella spp. En sí mismo contribuye a la patogénesis de la AR, o el entorno inmunológico creado por la AR aumenta la abundancia de Prevotella en el intestino. Otros cambios bacterianos notables en la microbiota intestinal de los pacientes con AR incluyen una proliferación de Proteobacteria, Clostridium cluster XlVa y Ruminococcus, que se correlacionaron con menos células T CD4+ y células Treg [348]. Utilizando el modelo de artritis autoinmune K/BxN, se descubrió que la reducción del antígeno de linfocitos T citotóxicos -4 (CTLA-4) mediada por SFB causaba células T auxiliares foliculares autorreactivas [349,350]. La acumulación de células T foliculares auxiliares y células Th17 en la artritis parece depender de la edad [351], lo que ayuda a explicar por qué la AR se encuentra principalmente en la población de mayor edad. Sin embargo, es interesante que la microbiota intestinal parece afectar predominantemente a las células T foliculares auxiliares, no a las células Th17, como lo confirma el tratamiento con antibióticos del modelo de artritis autoinmune K/BxN [352]. Es de destacar que recientemente se informó que la AR inducida por colágeno en ratones causa una aberración en los patrones rítmicos circadianos en el microbioma intestinal, lo que resulta en una reducción de la integridad de la barrera debido a una alteración en los factores circulantes derivados de microbios, como los metabolitos del triptófano [353]. Los SCFA, específicamente el butirato, se han propuesto como una opción terapéutica para la AR. Se descubrió que la suplementación con butirato promueve las células Treg al inhibir la expresión de HDAC y regula a la baja los genes de citoquinas proinflamatorias en la AR [354]. Además, el butirato alivió la artritis al inducir directamente la diferenciación de células Treg foliculares funcionales in vitro al mejorar la acetilación de histonas mediante la inhibición de HDAC [355]. Además, el butirato redujo la gravedad de la artritis al aumentar los niveles de ligandos AhR, es decir, el metabolito derivado de la serotonina ácido 5-hidroxiindol-3-acético, donde la activación de AhR apoyó la función reguladora de las células B [356]. Además de los SCFA, también se descubrió muy recientemente que los metabolitos derivados de la microbiota intestinal LCA, DCA, isoLCA y 3-oxoLCA exhiben efectos antiartritis. Específicamente, isoLCA y 3-oxoLCA inhibieron la diferenciación de Th17 y promovieron la polarización de los macrófagos M2 [357]. Estos efectos de los ácidos biliares secundarios podrían tener sinergia con la suplementación con probióticos de Parabacteroides distasonis [357]. Los nuevos hallazgos sobre los ácidos biliares secundarios son monumentales y necesitan investigación adicional.

cistanche tubulosa-mejora el sistema inmunológico
Haga clic aquí para ver los productos Cistanche Enhance Immunity
【Pregunte por más】 Correo electrónico:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
7.10. Enfermedades alérgicas
Las alergias ocurren cuando el sistema inmunológico se hipersensibiliza a antígenos extraños no patógenos. Las hipersensibilidades comunes incluyen rinitis alérgica, alergia alimentaria, eczema, dermatitis atópica y asma. Varios factores responsables del desarrollo de alergias, como la reducción de la exposición microbiana, el parto por cesárea, la dieta y el uso de antibióticos, están fuertemente relacionados con cambios en la composición del microbioma intestinal [358–361]. La disbiosis de la microbiota intestinal, a su vez, aumenta el riesgo de alergias, en particular alergias alimentarias [235,236]. La disbiosis inducida por el uso de antibióticos es suficiente para aumentar los síntomas alérgicos, elevar la inflamación intestinal y alterar la unión estrecha de la mucosa intestinal en ratones sensibilizados [362]. Una dieta rica en grasas generalmente tiene efectos similares a los antibióticos, provocando disbiosis de la microbiota intestinal y, posteriormente, aumentando el riesgo de alergias alimentarias [363]. Los cambios en la composición de la microbiota intestinal inmediatamente después del nacimiento, cuando el microbioma aún está establecido, parecen tener un impacto particularmente grande en el desarrollo de enfermedades alérgicas en etapas posteriores de la vida [364]. Es de destacar que la microbiota vaginal también puede reflejar el riesgo de alergia, donde los grupos de microbiota vaginal dominados por Lactobacillus se relacionaron con el estado de IgE sérica infantil al año de edad [365]. Varios estudios refuerzan el concepto de que la disbiosis está fuertemente relacionada con enfermedades alérgicas, especialmente el asma. Las personas con asma atópica tienen niveles fecales significativamente más altos de Lactobacillus y E. coli en comparación con las personas sanas [366]. En términos de metabolitos de la microbiota, 12,13-diHOME (un ácido linoleico relativamente poco caracterizado) se encuentra comúnmente en recién nacidos con alto riesgo de asma [367]. Recientemente se descubrió que la epóxido hidrolasa bacteriana, que produce 12,13-diHOME, también tiene una concentración mayor durante la inflamación pulmonar, y 12,13-diHOME reduce las células Treg en el pulmón [368,369]. Comparativamente, el ligando AhR tetraclorodibenzo-p-dioxina fue capaz de atenuar la hipersensibilidad de tipo retardado al inducir células Treg, suprimir las células Th17 y revertir la disbiosis de la microbiota intestinal [370]. Del mismo modo, las personas con niveles más altos de SCFA fecales, como butirato y propionato, en una etapa temprana de su vida tenían un riesgo notablemente menor de desarrollar asma y atopia [371]. De potencial valor terapéutico, la suplementación con SCFA podría modular las células T y las CD para aliviar el asma [372]. De manera similar, se demostró que la suplementación materna con fibra dietética o acetato protege a los recién nacidos del asma al promover la acetilación del gen Foxp3 [373]. La alimentación con fibra dietética también brindó protección contra los alérgenos alimentarios a través de la actividad de la retina deshidrogenasa en CD103+ CD [374]. Es de destacar que recientemente se descubrió que la fibra dietética inulina promueve la inflamación tipo 2 inducida por alérgenos y helmintos, y esto depende de los ácidos biliares [375]. En general, parece que la influencia de la microbiota intestinal sobre las alergias está altamente regulada por los metabolitos, pero cada producto microbiano tiene efectos independientes que pueden promover o disminuir la hipersensibilidad.
7.11. Trastornos psiquiátricos: el eje intestino-cerebro
La información antes mencionada describe la microbiota intestinal para influir en las enfermedades tanto intra como extraintestinales. Otro órgano al que la microbiota intestinal puede afectar es el cerebro, donde un "intestino estresado" se reconoce cada vez más como una entidad patológica en varios trastornos neurológicos. Para los bebés prematuros con microbiota intestinal inmadura, el crecimiento excesivo de Klebsiella es altamente predictivo de daño cerebral y se asocia con un tono inmunológico proinflamatorio [376]. La enfermedad de Parkinson se caracteriza por una acumulación de alfa-sinucleína en el intestino, y los pacientes a menudo sufren de intestino permeable debido a la disbiosis de la microbiota con poblaciones más altas de Prevotellaceae [13]. Estos síntomas pueden revertirse mediante la administración de probióticos [377,378]. Recientemente, la idea de que la microbiota da forma a la salud mental ha comenzado a ganar fuerza. Se han propuesto firmas taxonómicas y metabólicas como biomarcadores para estratificar el trastorno depresivo mayor en categorías de síntomas leves, moderados y graves [379]. Varios estudios que estudian las diferencias en la microbiota entre personas mentalmente sanas y personas con trastornos de salud mental, como ansiedad y/o depresión, han sugerido que la colonización microbiana antes y después del nacimiento juega un papel importante en el futuro. Por ejemplo, el estrés materno puede inducir un desarrollo neurológico anormal en la descendencia, que se ha caracterizado por una reducción significativa de Bifidobacterium spp. [380]. Además, los recién nacidos nacidos por cesárea, a diferencia del parto vaginal, tienen un mayor riesgo de desarrollar psicosis en el futuro [377,381]. Sorprendentemente, el tratamiento con oxitocina en los primeros años de vida puede minimizar los déficits de conducta observados en los cachorros nacidos por cesárea [382]. Un cóctel de antibióticos de amplio espectro que agotan la microbiota intestinal, específicamente en las etapas posnatal y de destete, puede causar efectos duraderos en los resultados conductuales relacionados con la ansiedad en la adolescencia y la edad adulta [383]. Un elegante estudio reciente realizado por Li et al. delineó que la exposición infantil a antibióticos provocaba comportamientos similares a la ansiedad y la depresión y alteraciones de la memoria que coincidían con un aumento del entorno inflamatorio; Se observaron hallazgos similares después del tratamiento con antibióticos a largo plazo en las etapas adolescente y adulta en ratones [384]. La alteración de la microbiota intestinal en los primeros años de vida también podría causar un comportamiento similar a la ansiedad específico del sexo, donde el tratamiento con LPS en ratas Wistar resultó en una menor interacción social en los machos en comparación con las hembras, que tuvieron un aumento en el comportamiento social [385]. Es de destacar que el TMF de un "microbioma envejecido" a ratones libres de gérmenes disminuyó los AGCC, y esto se asoció con un deterioro cognitivo [386]. El eje microbiota intestinal-inmunidad-cerebro aún está en su etapa incipiente y requiere investigación para establecer los mecanismos involucrados en la regulación inmune responsable de las anomalías del comportamiento y los trastornos neurológicos. Sin embargo, se debe enfatizar en observar otros microorganismos además de las bacterias porque se descubrió que los hongos de las mucosas promueven el comportamiento social a través de mecanismos inmunes Th17 complementarios [387].
8. Relación entre la microbiota intestinal y sus metabolitos en inmunoterapia
Actualmente, los tratamientos de inmunoterapia de primera línea incluyen células T (inhibidores de puntos de control, agonistas de receptores coestimuladores), modificación de células T, transferencia adoptiva de células T, células asesinas autólogas inducidas por citocinas, terapia con receptores de antígenos quiméricos, citocinas, virus oncolíticos y vacunas [388,389]. En los últimos años, la inmunoterapia basada en la aplicación de inhibidores de puntos de control inmunológico (ICI), incluidos anticuerpos contra CTLA-4, la proteína de muerte celular programada 1 (PD-1) y el ligando de muerte programada 1 (PD-L1) ), ha sido aprobado como tratamiento de primera o segunda línea en una variedad de tumores [390]. En particular, los ICI que se dirigen a PD-1 y su ligando PD-L1 han sido aprobados por la Administración de Medicamentos y Alimentos de EE. UU. (FDA) para el tratamiento de 10 tipos diferentes de cáncer [391]. Estudios recientes sugieren que la microbiota intestinal podría ser un determinante importante de la respuesta a la inmunoterapia contra el cáncer en algunos estudios preclínicos y clínicos [392–394]. Matson et al. demostraron que Bifidobacterium longum, Collinsella aerofaciens y Enterococcus faecium tienen mayor abundancia en pacientes que responden a inhibidores de la EP-1 [395]. Varios estudios han encontrado diferencias significativas en los microbiomas de los que responden frente a los que no responden a los inhibidores de la EP-1, incluidos aumentos de Faecalibacterium, Ruminococcus y Akkermansia en los que responden y aumentos de Bacteroides en los que no responden [392,396,397]. Además, el tratamiento anti-PD-1 para pacientes con cáncer de hígado dio como resultado una mayor abundancia de Faecalibacterium y una mejor supervivencia libre de progresión [398]. Estudios adicionales han demostrado además que la composición de las bacterias intestinales puede influir en el metabolismo de ciertos fármacos inmunoterapéuticos. La transferencia fecal de pacientes que respondieron tratados con EP-1-a ratones libres de gérmenes mejoró las respuestas de las células T y mejoró la eficacia de la terapia con inhibidores de la EP-1 [395]. La inosina, producida por Bifidobacterium pseudolongum y Akkermansia muciniphila, también promovió la terapia anti-CTLA-4 y anti-PD-L1 mediante la activación de las células T [213]. Comparativamente, un estudio reciente de Coutzac et al. demostraron que el butirato y el propionato limitaban la eficacia de los inhibidores de CTLA-4, lo que se asoció con una mayor población de Treg y una menor supervivencia [399]. Es de destacar que una cepa probiótica de Lactobacillus recientemente aislada (L. paracasei sh2020) promovió efectos anti-PD-1 en ratones con tumores CCR al regular positivamente la expresión de CXCL10 en los tumores y posteriormente mejorar la CD8+ T. reclutamiento celular [400]. Sorprendentemente, estos efectos antitumorales se produjeron incluso en presencia de disbiosis de la microbiota intestinal. Estas pruebas preclínicas y clínicas respaldan la investigación continua para determinar los requisitos de la microbiota intestinal para proporcionar la máxima eficacia de las inmunoterapias (Figura 3). Esto incluye la posibilidad de utilizar la microbiota intestinal para limitar los efectos secundarios negativos de las inmunoterapias, como la cardiotoxicidad relacionada con ICI. Chen et al. Se ha descrito elegantemente un inhibidor de PD-1/PD-L1 para agotar las poblaciones de microbiota de Prevotellaceae y Rikenellaceae, reducir los niveles de butirato y promover la polarización proinflamatoria de los macrófagos M1 mediante la regulación negativa del eje PPAR-CYP4 × 1 [401]. De relevancia terapéutica, la recolonización de Prevotella loescheii y la suplementación con butirato aliviaron la cardiotoxicidad relacionada con el inhibidor de PD-1/PD-L1 [401]. Como los puntos de control inmunitarios suelen ser heterogéneos y no persistentes, lo que puede dar lugar a una menor tasa de respuesta al tratamiento, resistencia a los medicamentos y reacciones adversas [402–404], las terapias dirigidas a la microbiota intestinal podrían ser adyuvantes esenciales (Figura 3). Las terapias para la EII actualmente aprobadas y disponibles son agentes anti-TNF, agentes anti-integrina, anticuerpos monoclonales anti- 7 e inhibidores de la Janus quinasa (JAK). Los inhibidores de JAK (p. ej., baricitinib) lograron restaurar la señalización de la insulina y mejorar la miosteatosis después de una alimentación rica en grasas y azúcares, pero no revirtieron las alteraciones de la microbiota intestinal inducidas por la dieta en ratones [405]. Los inhibidores anti-TNF han mejorado los resultados clínicos tanto en la EC como en la CU, pero aún requieren más ensayos clínicos aleatorios [402]. Sin embargo, es de destacar que recientemente se descubrió que el FMT es una terapia alternativa potencial para pacientes con EC con pérdida previa de respuesta o intolerancia a la terapia anti-TNF (es decir, infliximab) [406]. Sorprendentemente, el probiótico Bifidobacterium longum (B. longum) CECT 7894 promovió la eficacia de infliximab en un modelo de colitis en ratón al reducir la abundancia de patógenos oportunistas, es decir, Enterococcus y Pseudomonas, y aumentar los ácidos biliares secundarios [407]. Otro estudio reciente encontró de manera similar que tanto las terapias anti-TNF como anti-IL-12/23 alteraban la microbiota intestinal para favorecer las especies microbianas capaces de producir ácidos biliares secundarios [408]. La elevación de los ácidos biliares secundarios puede deberse al tratamiento anti-TNF que promueve la proliferación de Clostridia spp. como parte de la restauración de la microbiota intestinal [409]. Los ácidos biliares se consideran un biomarcador metabólico potencial para la respuesta a la terapia anti-TNF [410], pero se necesita más investigación para determinar si los ácidos biliares mejoran la eficacia de la inmunoterapia (Figura 3). Hay un indicio de que los ácidos biliares secundarios podrían ser beneficiosos al considerar la evidencia del tratamiento con AUDC para prevenir la recurrencia del CCR mediante la inhibición de la señalización de NF-κB [411,412]. Además, se descubrió que el AUDC tiene sinergia con los efectos anti-PD1 para inhibir la progresión del cáncer en ratones con tumores [413]. En general, parece que la microbiota intestinal podría explotarse como biomarcador y objetivo terapéutico para mejorar la respuesta a la inmunoterapia.
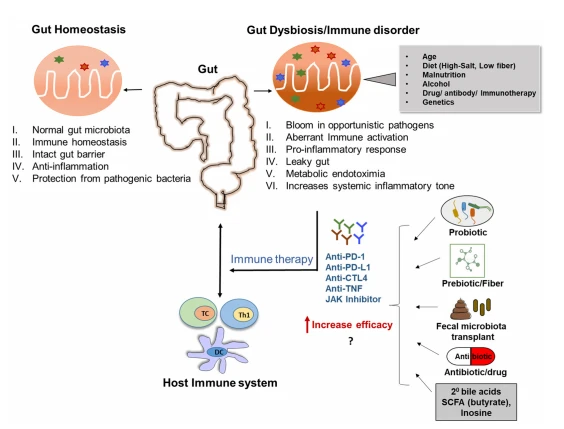
Figura 3. Modificar la abundancia de la población de microbiota intestinal puede influir en los resultados de la inmunoterapia. Un microbioma intestinal sano puede aumentar la biodisponibilidad y eficacia de los fármacos en el huésped. La disbiosis, causada por varios factores descritos, puede disminuir la eficacia de los fármacos terapéuticos, lo que conduce a malos resultados terapéuticos. La modificación de la microbiota intestinal podría aumentar la eficacia de ciertos fármacos inmunoterapéuticos, como los anticuerpos anti-PD-1, los anticuerpos anti-PD-L1 y los tratamientos con anticuerpos anti-CTL4. La microbiota intestinal se puede cambiar mediante la suplementación con antibióticos, probióticos, prebióticos, ácidos biliares secundarios, ácidos grasos de cadena corta (p. ej., butirato), inosina o trasplante de materia fecal.
9. Promesas, desafíos y riesgos en la investigación del microbioma inmunológico
La interacción entre la microbiota y los sistemas inmunológicos y su impacto en enfermedades como la EII, la artritis autoinmune y el cáncer es increíblemente compleja. Una capa de complejidad incluye el desafío de mostrar la implicación exacta de una determinada bacteria o grupo de bacterias en la aparición de enfermedades o la fisiología general del huésped. La colonización de microbios en modelos libres de gérmenes es una estrategia relevante para comprender mejor los efectos potenciales de los microorganismos intestinales en la salud y la enfermedad del huésped [414]. Sin embargo, la microbiota intestinal es mucho más que unas pocas especies seleccionadas. Existe una fuerte dinámica en el entorno del microbioma, donde las especies son mutuamente excluyentes o competitivas por los recursos, y muchos microbios dependen unos de otros para crecer [415]. Otra capa de complejidad incluye otros factores genéticos y ambientales que interactúan, como la dieta, el tabaquismo, las drogas y los medicamentos (Figura 2). Esto incluye diferencias en la microbiota (y potencialmente respuestas inmunes) entre áreas urbanas y rurales para los individuos [416]. Sin embargo, las observaciones observadas en modelos de roedores no siempre son traducibles a los humanos. En general, se puede afirmar que los humanos y otros mamíferos viven en un ambiente "más sucio" en comparación con los roedores de investigación que viven en ambientes libres de patógenos específicos. Por lo tanto, la limpieza del medio ambiente, que refleja la hipótesis de la higiene, podría afectar la composición de la microbiota y la susceptibilidad a las enfermedades. Esta idea está respaldada por el reciente hallazgo de que los ratones fertilizados (animales expuestos continuamente a un ambiente tipo corral de ganado) tenían una microbiota intestinal más estable y permanecían resistentes a la neoplasia inducida por mutágenos y colitis en comparación con los ratones nacidos higiénicamente [417].
Varios estudios centrados en la investigación de la inmunidad del microbioma han empleado la secuenciación del ARNr 16S para caracterizar el microbioma, pero este método tiene limitaciones porque puede identificar géneros con éxito pero no puede proporcionar distinciones a nivel de especie [418]. Por lo tanto, para lograr un estudio más inclusivo de los microbiomas, es aconsejable que la metagenómica se combine con otros enfoques -ómicos [419]. Más recientemente, la metatranscriptómica y la metabolómica están adquiriendo rápidamente importancia para los estudios del microbioma. La metagenómica genera el perfil taxonómico de la muestra, la metatranscriptómica obtiene un perfil funcional y la metabolómica finaliza la representación determinando qué subproductos libera la microbiota en el medio ambiente [419]. Aunque cada uno de estos enfoques de -ómica proporciona información valiosa por sí solo, se sugiere que una imagen más completa proviene de las -ómicas combinadas. Un beneficio importante de estos enfoques -ómicos es que los archivos sin procesar pueden depositarse en bases de datos y luego extraerse para su análisis por parte de otros grupos de investigación. Una limitación que puede surgir al aplicar el aprendizaje automático para comparar múltiples bases de datos es la desigualdad en el tamaño de la muestra [420]. Además, los resultados de la ómica podrían considerarse específicos del estudio, ya que puede resultar difícil encontrar patrones superpuestos de cambios en la microbiota intestinal entre la investigación y/o los estudios clínicos. Esto se debe a que la microbiota intestinal (más sus metabolitos) y la susceptibilidad a las enfermedades pueden variar en los seres humanos dependiendo de su origen geográfico [421], e incluso la composición bacteriana en roedores de laboratorio comunes puede ser diferente entre los centros de investigación y los proveedores [422]. En general, las -ómicas seguramente están haciendo avanzar el campo biomédico para identificar posibles objetivos diagnósticos y terapéuticos, pero todavía quedan algunas limitaciones que superar.
10. Conclusiones
En resumen, el sistema inmunológico del huésped y el microbioma intestinal dependen en gran medida uno del otro para el funcionamiento normal y el bienestar del huésped (resumido en el resumen gráfico). Esta revisión cubrió hallazgos novedosos, incluido cómo la aptitud inmune fetal depende ambientalmente de la microbiota materna (sana versus disbiosis o estresada). Se han discutido nuevas vías mecanísticas, como los SCFA y los ácidos biliares secundarios que modulan la homeostasis intestinal mediante la inducción de células Treg y la secreción de IL-10 (Figura 1A, B). A lo largo de la revisión, se mencionó repetidamente que el butirato y su fibra dietética precursora influyen en las respuestas inmunes y actúan como terapias potenciales para muchas enfermedades, pero alguna evidencia sugiere que su práctica clínica puede necesitar ser contextualizada en función de la enfermedad. Comparativamente, los probióticos y el FMT parecen ser más prometedores para restaurar la microbiota intestinal y aliviar las enfermedades inflamatorias. Además, la microbiota intestinal parece ser un objetivo relevante para mejorar las inmunoterapias actuales y reducir sus efectos secundarios negativos (Figura 3). También discutimos los desafíos actuales en la investigación del microbioma, que se basa esencialmente en factores genéticos y ambientales (Figura 2), que hacen que cada microbiota sea única entre los humanos y al comparar modelos de especies. Postulamos que los desarrollos recientes en métodos multiómicos, incluida la epigenómica, la metagenómica, la metaproteómica, la metabolómica, la culturómica y la transcriptómica unicelular, dilucidarán las interacciones entre el microbioma intestinal y el sistema inmunológico en la salud y la enfermedad [423] . Como tal, será interesante predecir las respuestas inmunitarias "específicas" del huésped basadas en los perfiles del microbioma intestinal, lo que respaldará el desarrollo de una terapia "personalizada dirigida al microbioma" para enfermedades inmunológicas.
Referencias
1. Donne, J. Ningún hombre es una isla; Ilustrado por Paul Peter Piech; Prensa Taurus: Willow Dene, Reino Unido, 1975.
2. Haz, A.; Clinger, E.; Hao, L. Efecto de la dieta y los componentes dietéticos sobre la composición de la microbiota intestinal. Nutrientes 2021, 13, 2795. [CrossRef] [PubMed]
3. Shanahan, F.; Ghosh, TS; O0 Toole, PW El microbioma saludable: ¿cuál es la definición de un microbioma intestinal saludable? Gastroenterología 2021, 160, 483–494. [Referencia cruzada] [PubMed]
4. Valdés, AM; Walter, J.; Segal, E.; Spector, TD Papel de la microbiota intestinal en la nutrición y la salud. BMJ 2018, 361, k2179. [Referencia cruzada] [PubMed]
5. Toro, MJ; Plummer, NT Parte 1: El microbioma intestinal humano en la salud y la enfermedad. Integral Medicina. 2014, 13, 17-22.
6. Sacos, D.; Baxter, B.; Campbell, antes de Cristo; Carpintero, JS; Cognard, C.; Dippel, D.; Esa, M.; Fischer, U.; Hausegger, K.; Hirsch, JA Declaración de consenso revisada sobre la mejora de la calidad del consenso multisociedad para la terapia endovascular del accidente cerebrovascular isquémico agudo. En t. J. Accidente cerebrovascular 2018, 13, 612–632. [Referencia cruzada]
7. Matijasic, M.; Mestrovic, T.; Paljetak, HC; Peric, M.; Barésic, A.; Verbanac, D. Microbiota intestinal más allá de las bacterias: micobioma, viroma, arqueoma y parásitos eucarióticos en la EII. Int. J. Mol. Ciencia. 2020, 21, 2668. [Referencia cruzada]
8. Giuffré, M.; Campigotto, M.; Campisciano, G.; Comar, M.; Croce, LS Una historia de los microbios del hígado y el intestino: ¿Cómo afecta la flora intestinal a la enfermedad hepática? Una revisión de la literatura. Soy. J. Physiol. Gastrointestinal. Fisiol hepático. 2020, 318, G889–G906. [Referencia cruzada]
9. Gomaa, EZ Microbiota/microbioma intestinal humano en la salud y las enfermedades: una revisión. Antonie Van Leeuwenhoek 2020, 113, 2019-2040. [Referencia cruzada]
10. Molinos, S.; Stanton, C.; Lane, JA; Smith, GJ; Ross, RP Precision Nutrition y el microbioma, Parte I: Estado actual de la ciencia. Nutrientes 2019, 11, 923. [CrossRef]
11. Adak, A.; Khan, MR Una visión de la microbiota intestinal y sus funcionalidades. Celúla. Mol. Ciencias de la vida. 2019, 76, 473–493. [Referencia cruzada]
12. Gensollen, T.; Iyer, SS; Kasper, DL; Blumberg, RS Cómo la colonización por la microbiota en las primeras etapas de la vida da forma al sistema inmunológico. Ciencia 2016, 352, 539–544. [Referencia cruzada] [PubMed]
13. Giuffre, M.; Moretti, R.; Campisciano, G.; da Silveira, ABM; Monda, VM; Comar, M.; Di Bella, S.; Antonello, RM; Luzzati, R.; Croce, LS ¿Estás hablando conmigo? Le dice el Sistema Nervioso Entérico (ENS) al Microbio. Cómo interactúan los microbios intestinales con el ENS. J.Clin. Medicina. 2020, 9, 3705. [Referencia cruzada]
14. Cho, Y.; Shore, SA Obesidad, asma y microbioma. Fisiología 2016, 31, 108-116. [Referencia cruzada] [PubMed]
15. McComb, S.; Thiriot, A.; Akache, B.; Krishnan, L.; Stark, F. Introducción al sistema inmunológico. Métodos Mol. Biol. 2019, 2024, 1–24. [Referencia cruzada] [PubMed]
16. Chan, L.; Karimi, N.; Morovati, S.; Alizadeh, K.; Kakish, JE; Vanderkamp, S.; Fazel, F.; Napoleón, C.; Alizadeh, K.; Mehrani, Y.; et al. El papel de los neutrófilos en las tormentas de citocinas. Virus 2021, 13, 2318. [CrossRef]
17. Domínguez-Bello, MG; Costello, EK; Contreras, M.; Magris, M.; Hidalgo, G.; Fierer, N.; Knight, R. El modo de parto da forma a la adquisición y estructura de la microbiota inicial en múltiples hábitats corporales en los recién nacidos. Proc. Nacional. Acad. Ciencia. Estados Unidos 2010, 107, 11971–11975. [Referencia cruzada]
18. Mitchell, CM; Mazzoni, C.; Hogstrom, L.; Bryant, A.; Bergerat, A.; Cher, A.; Pochan, S.; Herman, P.; Carrigan, M.; Afilado, K.; et al. El modo de parto afecta la estabilidad de la microbiota intestinal infantil temprana. Representante celular Med. 2020, 1, 100156. [Referencia cruzada]
19. Selma-Royo, M.; Calatayud Arroyo, M.; García-Mantrana, I.; Parra-Llorca, A.; Escuriet, R.; Martínez-Costa, C.; Collado, MC El entorno perinatal da forma a la colonización de la microbiota y al crecimiento infantil: impacto en la respuesta del huésped y la función intestinal. Microbioma 2020, 8, 167. [CrossRef]
20. Subramanian, S.; Geng, H.; Du, C.; Chou, PM; Bu, HF; Wang, X.; Swaminathan, S.; Bronceado, Carolina del Sur; Ridlon, JM; De Plaen, IG; et al. El modo de alimentación influye en las firmas dinámicas de la microbiota intestinal y afecta la susceptibilidad a la lesión intestinal inducida por mAb anti-CD3 en ratones neonatales. Soy. J. Physiol. Gastrointestinal. Fisiol hepático. 2022, 323, G205–G218. [Referencia cruzada]
21. Wampach, L.; Heintz-Buschart, A.; Fritz, JV; Ramiro-García, J.; Habier, J.; Herold, M.; Narayanasamy, S.; Kaysen, A.; Hogan, AH; Bindl, L.; et al. El modo de nacimiento se asocia con las funciones más tempranas del microbioma intestinal y el potencial inmunoestimulador conferidos por la cepa. Nat. Comunitario. 2018, 9, 5091. [CrossRef] 22. Negi, S.; Hashimoto-Hill, S.; Alenghat, T. Interacciones epiteliales-microbiota neonatal que impactan la infección. Frente. Microbiol. 2022, 13, 955051. [CrossRef] [PubMed]
23. Senn, V.; Bassler, D.; Choudhury, R.; Scholkmann, F.; Righini-Grunder, F.; Vuille-Dit-Bile, RN; Restin, T. Colonización microbiana desde el feto hasta la primera infancia: una revisión integral. Frente. Celúla. Infectar. Microbiol. 2020, 10, 573735. [CrossRef] [PubMed]
24. Rackaityte, E.; Halkias, J.; Fukui, EM; Mendoza, VF; Hayzelden, C.; Crawford, ED; Fujimura, KE; Burt, TD; Lynch, SV La colonización bacteriana viable está muy limitada en el intestino humano en el útero. Nat. Medicina. 2020, 26, 599–607. [Referencia cruzada]
25. Li, Y.; Tomador de dientes, JM; Ben-Simon, S.; Ozeri, L.; Schweitzer, R.; McCourt, BT; McCourt, CC; Werner, L.; Pargo, SB; Shoval, DS; et al. En el útero, el intestino humano alberga un metaboloma único, que incluye metabolitos bacterianos. JCI Insight 2020, 5, e138751. [Referencia cruzada] [PubMed]
26. Jain, N. La educación temprana del sistema inmunológico: mamás, microbios y oportunidades (perdidas). Microbios intestinales 2020, 12, 1824564. [CrossRef]
27. Gierynska, M.; Szulc-Dabrowska, L.; Struzik, J.; Mielcarska, MB; Gregorczyk-Zboroch, KP Integridad de la barrera intestinal: la participación de las células epiteliales y la microbiota: una relación mutua. Animales 2022, 12, 145. [CrossRef]
28. Westrom, B.; Arévalo Sureda, E.; Pierzynowska, K.; Pierzynowski, SG; Perez-Cano, FJ La barrera intestinal inmadura y su importancia para establecer la inmunidad en mamíferos recién nacidos. Frente. Inmunol. 2020, 11, 1153. [Referencia cruzada]
29. Rabe, H.; Lundell, AC; Sjöberg, F.; Ljung, A.; Strombeck, A.; Gio-Batta, M.; Maglio, C.; Nordstrom, I.; Andersson, K.; Nookaew, yo; et al. La colonización intestinal neonatal por Bifidobacterium se asocia con mayores respuestas de citoquinas en la infancia. Microbios intestinales 2020, 12, 1847628. [CrossRef]
30. Henrick, BM; Rodríguez, L.; Lakshmikanth, T.; Pou, C.; Henckel, E.; Arzoomand, A.; Olín, A.; Wang, J.; Mikes, J.; Tan, Z.; et al. Impresión del sistema inmunológico mediada por bifidobacterias en una etapa temprana de la vida. Celda 2021, 184, 3884–3898. [Referencia cruzada]
31. Chin, N.; Méndez-Lagares, G.; Taft, DH; Laleau, V.; Kieu, H.; Narayan, NR; Roberts, SB; Mills, DA; Hartigan-O0 Connor, DJ; Flaherman, VJ Efecto transitorio de la suplementación con fórmulas infantiles sobre la microbiota intestinal. Nutrientes 2021, 13, 807. [CrossRef]
32. Al Nabhani, Z.; Dulauroy, S.; Marqués, R.; Cousú, C.; Al Bounny, S.; Dejardin, F.; Sparwasser, T.; Bérard, M.; Cerf-Bensussan, N.; Eberl, G. Se requiere una reacción de destete a la microbiota para lograr resistencia a las inmunopatologías en el adulto. Inmunidad 2019, 50, 1276–1288. [Referencia cruzada] [PubMed]
33. Roubaud-Baudron, C.; Ruiz, VE; Cisne, AM, Jr.; Vallance, Licenciatura en Letras; Özkul, C.; Pei, Z.; Li, J.; Battaglia, TW; Pérez-Pérez, GI; Blaser, MJ Efectos a largo plazo de la exposición a antibióticos en los primeros años de vida sobre la resistencia a infecciones bacterianas posteriores. mBio 2019, 10, e02820-19. [Referencia cruzada] [PubMed]
34. Cahenzli, J.; Koller, Y.; Wyss, M.; Geuking, MB; McCoy, KD La diversidad microbiana intestinal durante la colonización temprana da forma a los niveles de IgE a largo plazo. Microbio huésped celular 2013, 14, 559–570. [Referencia cruzada] [PubMed]
35. El Aidy, S.; Hooiveld, G.; Tremaroli, V.; Backhed, F.; Kleerebezem, M. La microbiota intestinal y la homeostasis de las mucosas: colonizados al nacer o en la edad adulta, ¿importa? Microbios intestinales 2013, 4, 118-124. [Referencia cruzada]
36. Wang, C.; Li, Q.; Ren, J. Interacción microbiota-inmune en la patogénesis de la infección derivada del intestino. Frente. Inmunol. 2019, 10, 1873. [Referencia cruzada]
37. McGuckin, MA; Linden, SK; Sutton, P.; Florin, TH Dinámica de mucinas y patógenos entéricos. Nat. Rev. Microbiol. 2011, 9, 265–278. [Referencia cruzada]
38. Mogensen, TH Reconocimiento de patógenos y señalización inflamatoria en las defensas inmunes innatas. Clínico. Microbiol. Rev. 2009, 22, 240–273. [Referencia cruzada]
9. Minarrieta, L.; Ghorbani, P.; Sparwasser, T.; Berod, L. Metabolitos: Descifrando el lenguaje molecular entre los países en desarrollo y su entorno. Semín. Inmunopatol. 2017, 39, 177–198. [Referencia cruzada]
40. Levy, M.; Kolodziejczyk, AA; Thaiss, California; Elinav, E. Disbiosis y el sistema inmunológico. Nat. Rev. Immunol. 2017, 17, 219–232. [Referencia cruzada]
41. Morikawa, M.; Tsujibe, S.; Kiyoshima-Shibata, J.; Watanabe, Y.; Kato-Nagaoka, N.; Shida, K.; Matsumoto, S. La microbiota del intestino delgado está engullida selectivamente por fagocitos de la lámina propia y las placas de Peyer0. MÁS UNO 2016, 11, e0163607. [Referencia cruzada]
42. Kohler, A.; Delbauve, S.; Smout, J.; Torres, D.; Flamand, V. La exposición en edades muy tempranas al TNF inducido por la microbiota impulsa la maduración del pre-cDC1 neonatal. Instinto 2021, 70, 511–521. [Referencia cruzada] [PubMed]
43. Johansson, ME; Hansson, GC Aspectos inmunológicos del moco intestinal y las mucinas. Nat. Rev. Immunol. 2016, 16, 639–649. [Referencia cruzada] [PubMed]
44. Humayun, M.; Ayuso, JM; Park, Kentucky; Martorelli Di Genova, B.; Skála, MC; Kerr, Carolina del Sur; Knoll, LJ; Beebe, DJ Respuesta de las células inmunes innatas a la interacción huésped-parásito en un sistema microfisiológico del tejido intestinal humano. Ciencia. Adv. 2022, 8, eabm8012. [Referencia cruzada] [PubMed]
45. Artis, D.; Spits, H. La biología de las células linfoides innatas. Naturaleza 2015, 517, 293–301. [Referencia cruzada] [PubMed]
46. Lankelma, JM; van Vught, Luisiana; Belzer, C.; Schultz, MJ; van der Poll, T.; de Vos, WM; Wiersinga, WJ Los pacientes críticamente enfermos demuestran una gran variación interpersonal en la desregulación de la microbiota intestinal: un estudio piloto. Medicina de Cuidados Intensivos. 2017, 43, 59–68. [Referencia cruzada]
47. Fournier, BM; Parkos, CA El papel de los neutrófilos durante la inflamación intestinal. Inmunol de las mucosas. 2012, 5, 354–366. [Referencia cruzada]
48. Loh, JT; Lee, KG; Lee, AP; Teo, JKH; Lim, HL; Kim, SS; Bronceado, AH; Lam, KP DOK3 mantiene la homeostasis intestinal al suprimir la señalización JAK2/STAT3 y la producción de S100a8/9 en los neutrófilos. Enfermedad por muerte celular. 2021, 12, 1054. [Referencia cruzada]
49. Seo, DH; Che, X.; Kim, S.; Kim, DH; Mamá, HW; Kim, JH; Kim, TI; Kim, WH; Kim, suroeste; Cheon, JH El agonista del receptor activador expresado en células mieloides -1 regula la inflamación intestinal a través de los neutrófilos Cd177(+). Frente. Inmunol. 2021, 12, 650864. [Referencia cruzada]
50. Vong, L.; Yeung, CW; Pinnell, LJ; Sherman, PM Escherichia coli adherente e invasiva exacerba la disbiosis intestinal asociada a antibióticos y la activación de la trampa extracelular de neutrófilos. Inflamación. Enfermedad intestinal. 2016, 22, 42–54. [Referencia cruzada]
51. Delano, MJ; Ward, PA El papel del sistema inmunológico en la progresión, resolución y resultado a largo plazo de la sepsis. Inmunol. Rev. 2016, 274, 330–353. [Referencia cruzada]
52. Apostolov, AK; Hamani, M.; Hernández-Vargas, H.; Igalouzeno, R.; Guyennon, A.; Fesneau, O.; María, JC; Soudja, SM Características comunes y exclusivas de las células T gammadelta intraepiteliales intestinales y otros subconjuntos de células T gammadelta. Inmunohorizontes 2022, 6, 515–527. [Referencia cruzada] [PubMed]
53. Ismail, AS; Severson, KM; Vaisnava, S.; Behrendt, CL; Yu, X.; Benjamín, JL; Ruhn, KA; Hou, B.; DeFranco, AL; Yarovinsky, F.; et al. Los linfocitos intraepiteliales gammadelta son mediadores esenciales de la homeostasis microbiana del huésped en la superficie de la mucosa intestinal. Proc. Nacional. Acad. Ciencia. EE.UU. 2011, 108, 8743–8748. [Referencia cruzada]
54. Holtmeier, W.; Kabelitz, D. Las células T gammadelta vinculan las respuestas inmunes innatas y adaptativas. Química. Inmunol. Alergia 2005, 86, 151–183. [Referencia cruzada]
55. Tyler, CJ; McCarthy, NE; Lindsay, JO; Stagg, AJ; Moser, B.; Eberl, M. Las células T gammadelta humanas presentadoras de antígeno promueven la expresión de IL-22 en las células T CD4(+) intestinales y la liberación de calprotectina en las mucosas. J. Inmunol. 2017, 198, 3417–3425. [Referencia cruzada] [PubMed]
56. Li, Y.; Wang, Y.; Shi, F.; Zhang, X.; Zhang, Y.; Bi, K.; Chen, X.; Pequeño.; Diao, H. Los metabolitos de fosfolípidos de la microbiota intestinal promueven la lesión intestinal inducida por hipoxia a través de células T gamma delta dependientes de CD1d. Microbios intestinales 2022, 14, 2096994. [CrossRef] [PubMed]
57. Tomasello, E.; Bedoui, S. Células inmunes innatas intestinales en la homeostasis intestinal y la inmunovigilancia. Inmunol. Biol celular. 2013, 91, 201–203. [Referencia cruzada] [PubMed]
58. Grimaldi, D.; Le Bourhis, L.; Sauneuf, B.; Dechartres, A.; Rousseau, C.; Ouaaz, F.; Más suave, M.; Luis, D.; Chiche, JD; Mira, JP; et al. Comportamiento específico de las células MAIT entre los linfocitos T de tipo innato en pacientes críticos con infecciones graves. Medicina de Cuidados Intensivos. 2014, 40, 192–201. [Referencia cruzada]
59. Andreu-Ballester, JC; Tormo-Calandín, C.; García-Ballesteros, C.; Pérez-Griera, J.; Amigo, V.; Almela-Quilis, A.; Ruiz del Castillo, J.; Peñarroja-Otero, C.; Ballester, F. Asociación de células T gamma delta con la gravedad de la enfermedad y la mortalidad en pacientes sépticos. Clínico. Vacuna Inmunol. 2013, 20, 738–746. [Referencia cruzada]
60. Noble, A.; Pring, et al.; Durant, L.; Hombre, R.; Dilke, SM; Hoyles, L.; James, SA; Cardado, SR; Jenkins, JT; Knight, SC Inmunidad alterada a la microbiota, activación de células B y células T gamma-delta/memoria residentes agotadas en el cáncer colorrectal. Inmunol contra el cáncer. Inmunotro. 2022, 71, 2619–2629. [Referencia cruzada]
61. Suzuki, H.; Jeong, KI; Itoh, K.; Doi, K. Variaciones regionales en la distribución de linfocitos intraepiteliales del intestino delgado en ratones libres de gérmenes y patógenos específicos. Exp. Mol. Patol. 2002, 72, 230–235. [Referencia cruzada]
62. Bedoui, S.; Heath, WR; Mueller, SN La ayuda de las células T CD4(+) amplifica las señales innatas para la inmunidad primaria de las células T CD8(+). Inmunol. Rev. 2016, 272, 52–64. [Referencia cruzada] [PubMed]
63. Belz, GT; Shortman, K.; Bevan, MJ; Heath, las células dendríticas WR CD8alfa+ presentan selectivamente antígenos bacterianos intracelulares y virales no citolíticos restringidos al MHC de clase I in vivo. J. Inmunol. 2005, 175, 196–200. [Referencia cruzada] [PubMed]
64. Sztein, MB; Bafford, CA; Salerno-Goncalves, R. La exposición a Salmonella enterica serovar Typhi provoca cambios epigenéticos ex vivo específicos del tipo de célula en las células intestinales humanas. Ciencia. Rep. 2020, 10, 13581. [CrossRef]
65. Becattini, S.; Littmann, ER; Seok, R.; Amoretti, L.; Fontana, E.; Wright, R.; Gjonbalaj, M.; Leiner, IM; Plitas, G.; Hohl, TM; et al. Mejora de la inmunidad de las mucosas mediante el agotamiento transitorio de la microbiota. Nat. Comunitario. 2020, 11, 4475. [Referencia cruzada]
66. De Wit, J.; Souwer, Y.; Jorritsma, T.; Klaasse Bos, H.; diez Brinke, A.; Neefjes, J.; van Ham, SM Las células B específicas de antígeno reactivan una respuesta eficaz de células T citotóxicas contra Salmonella fagocitada mediante presentación cruzada. PLoS ONE 2010, 5, e13016. [Referencia cruzada] [PubMed]
67. Schnell, A.; Huang, L.; Cantante, M.; Singaraju, A.; Barilla, RM; Reagan, BML; Bollhagen, A.; Thakore, PI; Dionne, D.; Delorey, TM; et al. Las células Th17 intestinales similares a las madres dan lugar a células T efectoras patógenas durante la autoinmunidad. Celda 2021, 184, 6281–6298.e23. [Referencia cruzada]
68. Omenetti, S.; Bussi, C.; Metidji, A.; Iseppon, A.; Lee, S.; Tolaini, M.; Li, Y.; Kelly, G.; Chakravarty, P.; Shoaie, S.; et al. El intestino alberga células Th17 inflamatorias y residentes en tejidos homeostáticos funcionalmente distintas. Inmunidad 2019, 51, 77–89. [CrossRef] 69. Ivanov, II; Atarashi, K.; Manuel, N.; Brodie, EL; Shima, T.; Karaoz, U.; Wei, D.; Goldfarb, Kansas; Santee, California; Lynch, SV; et al. Inducción de células Th17 intestinales por bacterias filamentosas segmentadas. Celda 2009, 139, 485–498. [Referencia cruzada]
70. Tan, TG; Sefik, E.; Geva-Zatorsky, N.; Kua, L.; Naskar, D.; Teng, F.; Pasman, L.; Ortiz-López, A.; Jupp, R.; Wu, HJ; et al. Identificar especies de bacterias simbiontes del intestino humano que, por sí solas, pueden inducir células Th17 intestinales en ratones. Proc. Nacional. Acad. Ciencia. EE.UU. 2016, 113, E8141–E8150. [Referencia cruzada]
71. Sanó, T.; Kageyama, T.; Colmillo, V.; Kedmi, R.; Martínez, CS; Talbot, J.; Chen, A.; Cabrera, I.; Gorshko, O.; Kurakake, R.; et al. Requisito redundante de citoquinas para la diferenciación de células Th17 inducida por la microbiota intestinal en los ganglios linfáticos de drenaje. Rep. celular 2021, 36, 109608. [CrossRef]
72. Hierros, EE; Cortés Gómez, E.; Andersen, VL; Lau, JTY La colonización bacteriana y la inmunidad TH17 están determinadas por la sialilación intestinal en ratones neonatales. Glicobiología 2022, 32, 414–428. [Referencia cruzada] [PubMed]
73. Alejandro, M.; Ang, QY; Nayak, RR; Bustion, AE; Sandy, M.; Zhang, B.; Upadhyay, V.; Pollard, KS; Lynch, SV; Turnbaugh, PJ El metabolismo bacteriano del intestino humano impulsa la activación de Th17 y la colitis. Microbio huésped celular 2022, 30, 17–30. [Referencia cruzada] [PubMed]
74. Brennan, California; Arcilla, SL; Lavoie, SL; Bae, S.; Lang, JK; Fonseca-Pereira, D.; Rosinski, KG; Ou, N.; Glickman, JN; Garrett, WS Fusobacterium nucleatum impulsa un microambiente intestinal proinflamatorio a través de la modulación de la expresión de IL-17 dependiente del receptor de metabolitos. Microbios intestinales 2021, 13, 1987780. [CrossRef] [PubMed]
75. Malchow, S.; Leventhal, DS; Lee, V.; Nishi, S.; Socci, ND; Savage, PA Aire refuerza la tolerancia inmunitaria dirigiendo las células T autorreactivas al linaje de células T reguladoras. Inmunidad 2016, 44, 1102–1113. [Referencia cruzada]
76. Yang, S.; Fujikado, N.; Kolodin, D.; Benoist, C.; Mathis, D. Tolerancia inmune. Las células T reguladoras generadas en una etapa temprana de la vida desempeñan un papel distinto en el mantenimiento de la autotolerancia. Ciencia 2015, 348, 589–594. [Referencia cruzada]