

Memoria inmunológica en el envejecimiento: una perspectiva amplia que abarca la microbiota, el cerebro, el metabolismo y la epigenética, parte 2
Jun 30, 2022
Por favor contactaroscar.xiao@wecistanche.compara más información
La interacción del metabolismo y la memoria inmunológica
El metabolismo y la inflamación metabólica son procesos clave que influyen y se ven influenciados por el envejecimiento. Las enfermedades metabólicas como la diabetes mellitus tipo 2, las enfermedades cardiovasculares y la obesidad también se consideran enfermedades relacionadas con la edad. Estas condiciones van acompañadas de inflamación crónica, denominada metaflamación, que es impulsada por el exceso de nutrientes. Aunque los factores desencadenantes pueden variar, los mecanismos subyacentes a la metaflamación y la inflamación son bastante similares.
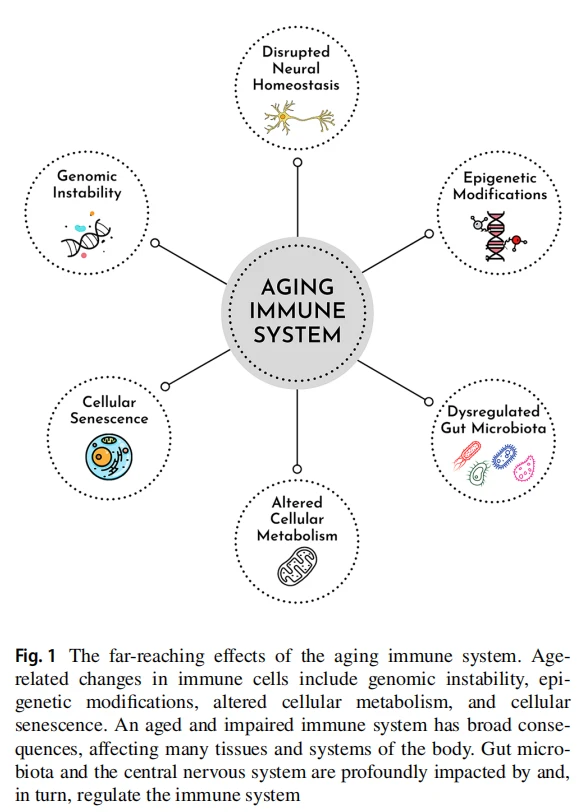
La disfunción mitocondrial, la acumulación de células senescentes y desechos celulares y la hiperactivación de las respuestas inmunitarias innatas, como el inflamasoma, contribuyen a ambos procesos [120]. Por lo tanto, es crucial comprender la interacción entre el envejecimiento celular, el metabolismo y la inflamación en el envejecimiento cronológico y las enfermedades metabólicas relacionadas con la edad para revertirlas.
Metabolismo de células T
Las células T inactivas utilizan principalmente procesos catabólicos, mientras que las células activadas dependen de procesos anabólicos para apoyar la producción y proliferación de proteínas. Las células necesitan activar una serina/treonina quinasa crítica, el objetivo de la rapamicina en los mamíferos (mTOR), para inducir las vías anabólicas [121]. Mientras impulsa el crecimiento y la proliferación, mTOR también aumenta el transporte de glucosa y la glucólisis.dosis de cistanche tubulosa redditLa glucólisis es una de las principales vías para generar energía. Aunque no es energéticamente eficiente, solo se pueden generar 2 moléculas de trifosfato de adenosina (ATP) a partir de una molécula de glucosa, genera energía muy rápidamente, lo cual es útil para las células T activas y en proliferación[122]. El procesamiento de la glucosa produce ATP, NADH y piruvato. Luego, el piruvato se convierte en lactato y se exporta como ácido láctico en el caso de la glucólisis o, de lo contrario, se transporta a las mitocondrias para la fosforilación oxidativa (OXPHOS).
Por favor haga clic aquí para saber más
OXPHOS es una vía bioenergética mucho más eficiente, que produce 36 moléculas de ATP a partir de cada molécula de glucosa [123]. En este caso, el piruvato se convierte en acetil-CoA y entra en el ciclo del ácido tricarboxílico (ciclo TCA), que se acopla a la cadena de transporte de electrones (TCA) a través de los donantes de electrones NADH y FADH2. El ciclo TCA se puede reponer con aminoácidos y oxidación de ácidos grasos. La oxidación de ácidos grasos (FAO) es utilizada principalmente por células con baja demanda de energía y juega un papel fundamental en la memoria CD8 y el desarrollo de CD4 más Treg [124]. Las células T activadas regulan al alza su captación de glutamina y realizan glutaminólisis para producir -cetoglutarato, que entra en el ciclo TCA.
Además, los metabolitos del ciclo TCA pueden regular las funciones inmunitarias de formas distintas a la producción de energía. Por ejemplo, la acetil-CoA actúa como cofactor clave para la acetilación de histonas [125]. En las células T activadas, se requiere acetil-CoA para la producción de IFNy a través de la acetilación de histonas [126]. Acetil-CoA también contribuye a la acetilación de las proteínas mitocondriales [127], lo que tiene amplias consecuencias funcionales para las células inmunitarias tanto innatas como adaptativas [128].
Las células T ingenuas en reposo satisfacen sus necesidades energéticas con OXPHOS [129].cistanche แอ ม เว ย์La señalización de IL-7 y TCR es esencial para su regulación metabólica y supervivencia [130, 131]. Cuando las células T se activan, se produce una necesidad inmediata de energía para las funciones efectoras y la generación de biomasa. Las células regulan al alza los transportadores como el transportador de glucosa 1 (GLUT1) y participan en la glucólisis aeróbica, promoviendo la producción de citoquinas a través de vías, como el eje de la fosfoinositida 3-quinasa (PI3K)-AKT-mTOR y la proteína quinasa activada por mitógeno (MAPK) señalización[132]. El interruptor glucolítico es necesario para las funciones efectoras, por ejemplo, la producción de IFNy, pero no es esencial para la proliferación[133]. El OXPHOS también se puede utilizar con fines de proliferación y supervivencia. Aunque las células T activadas dependen funcionalmente de la glucólisis, OXPHOS ciertamente no es prescindible: cuando OXPHOS se inhibe con oligomicina, la activación y proliferación de células T se bloquean [133].
Aunque dependen de OXPHOS y FAO en estado de reposo, las células T de memoria necesitan responder rápida y eficientemente al encuentro con el antígeno. Por lo tanto, pueden cambiar a la glucólisis más rápido que las células T ingenuas [134]. Una mayor masa mitocondrial y una fuerte capacidad respiratoria adicional mitocondrial se han relacionado con esta ventaja bioenergética [135, 136]. Además, la fusión mitocondrial es esencial para el desarrollo y la función de las células T de memoria [137].
Impacto del envejecimiento en el metabolismo de las células T
El aumento de la actividad de p38 MAPK es una de las características de las células T senescentes. La inhibición de p38 mejora la actividad de la telomerasa, la proliferación, la autofagia y la aptitud mitocondrial, de forma independiente de mTOR[17]. La inhibición de MAPK también mejora las respuestas de células T y anticuerpos en ratones viejos vacunados contra la influenza [138].
Los pacientes con mutaciones de ganancia de función en PI3K tienen células T vírgenes agotadas pero una acumulación de células efectoras senescentes, al igual que en los ancianos [139]. La inhibición de la actividad de mTOR con el tratamiento con rapamicina restaura parcialmente el fenotipo senescente en estos pacientes. Por lo tanto, la señalización hiperactiva de PI3K/AKT/mTOR se sugiere como uno de los impulsores de la senescencia de las células T.
Las células T ingenuas envejecidas tienen una masa mitocondrial más alta, pero curiosamente, menos capacidad respiratoria mitocondrial, posiblemente debido a la regulación negativa transcripcional de los genes de la cadena respiratoria [140]. Además, las enzimas del metabolismo de un carbono son deficientes en las células T vírgenes envejecidas, y la suplementación con formiato y glicina, metabolitos del metabolismo de un carbono, mejora la supervivencia y activación celular [14].
La autofagia es importante para la generación de memoria de las células T, y la inducción de la autofagia por la espermidina mejora las respuestas de las células T CD8 plus contra la vacunación contra la influenza en ratones de edad avanzada [142]. Las células T de memoria CD4 plus de los ancianos muestran una fosforilación oxidativa regulada al alza, producción de especies reactivas de oxígeno (ROS) y oxidación de ácidos grasos [143].bioflavonoidesTambién tienen una mayor expresión de Sirtuin 1 (SIRT1), una desacetilasa dependiente de NAD, en comparación con las células más jóvenes. SIRT1 y AMPK, dos importantes moléculas sensibles a los nutrientes y reguladores negativos de mTOR, se influyen positivamente [144]. A diferencia de las células CD4 más memoria, las células T CD8 más CD28-de memoria diferenciadas terminalmente asociadas con el envejecimiento tienen una alta capacidad glucolítica, que está relacionada con su expresión de SIRTI regulada a la baja [145].
Las células CD8 más TEMRA tienen una mayor expresión de genes relacionados con la glucólisis y la glutaminólisis y un grupo de ATP más grande en comparación con las células vírgenes y EM [146]. A pesar de la transcripción glucolítica regulada al alza en las células TEMRA, los niveles de glucólisis basal son similares a los de las células vírgenes y EM. Al igual que las células EM, las células TEMRA pueden aumentar rápidamente la glucólisis y OXPHOS tras la activación [146]. En términos de función, las células TEMRA son capaces de citotoxicidad y producción de citoquinas, a pesar de su estado senescente y función mitocondrial alterada [17, 36].
La infección por CMV a largo plazo, conocida por promover la inmunosenescencia, también altera el metabolismo celular de las células T, aumentando la captación de glucosa, promoviendo la glucólisis, reestructurando las balsas lipídicas y alterando el metabolismo del colesterol [147, 148]. Además, la inflamación crónica debida al CMV de por vida la infección altera las células pancreáticas y aumenta el riesgo de diabetes tipo 2 en los ancianos [149].
Metabolismo de células B
Las vías metabólicas que regulan las células T también son esenciales para la función de las células B, aunque no ha habido mucha investigación sobre el metabolismo de las células B. Cuando una célula B se activa tras el reconocimiento del antígeno por parte del BCR y la ayuda de la célula T, activa la señalización de PI3K/AKT/mTOR [150]. Al igual que las células T activadas, las células B activadas necesitan una producción de energía rápida para aumentar la biomasa y proliferar. Como resultado, aumenta la captación de glucosa y glutamina, junto con el consumo de oxígeno, OXPHOS y remodelación mitocondrial [151]. Se ha sugerido que OXPHOS y el suministro de glutamina del ciclo TCA son las vías bioenergéticas críticas para el crecimiento y la función de las células B, mientras que la glucosa era prescindible [152].
Un estudio mostró que las células B activadas tienen más mitocondrias pero cantidades similares de ADN mitocondrial, lo que indica que la fisión de las mitocondrias de células B ingenuas con múltiples nucleoides, en lugar de la replicación mitocondrial, se produce tras la activación [152]. Otro estudio sugirió que la remodelación mitocondrial y los niveles de ROS determinan el destino de las células B activadas. Las células con masa mitocondrial aumentada y niveles más altos de ROS tras la activación están destinadas a la recombinación de cambio de clase, mientras que las células con masa mitocondrial disminuida experimentan diferenciación de células plasmáticas [153].
Las necesidades energéticas de las células B activadas en los GC cambian con frecuencia [154].cuanta cistanche tomarEn la zona de luz hipóxica, las células consumen menos oxígeno y son más glucolíticas. Aquí mTORC1 no es necesario para la regulación de la glucólisis, pero es fundamental, junto con c-Myc, para la selección positiva de las células y la migración a la zona oscura. para la proliferación y la hipermutación somática [155,156].

Cistanche puede antienvejecimiento
Tras la maduración de GC, cuando una célula se diferencia en células B de memoria, el estado metabólico se vuelve más inactivo con OXPHOS dominante. Sin embargo, la reactivación rápida de mTORC1 y la glucólisis es posible para su posterior diferenciación en plasmablastos productores de anticuerpos [157]. Además, las células B de memoria tienen una autofagia basal alta, que es esencial para su supervivencia hasta que se encuentran con el antígeno [158,159].
Los GC también producen células plasmáticas de larga duración, que pueden producir miles de anticuerpos por segundo. Esto, naturalmente, requiere mucha energía. mTORC1 es esencial para la generación de células plasmáticas y la síntesis de anticuerpos [160]. Las células plasmáticas tienen altos niveles de captación de glucosa, pero la mayor parte de la glucosa se utiliza para la glicosilación de proteínas [161]. Aún así, la supervivencia y la producción de anticuerpos de las células plasmáticas se vieron afectadas cuando se eliminó el transportador de glucosa Glute [162]. Además, la importación mitocondrial de piruvato, proporcionada por la glucólisis, es fundamental para el mantenimiento a largo plazo de las células plasmáticas [161].
Finalmente, las células B B1 residentes en tejidos son más activas en la glucólisis y OXPHOS que otras células B, las clásicas células B productoras de anticuerpos y de memoria. Además, la autofagia es fundamental para la función mitocondrial y la autorrenovación de las células B1 [163].
Impacto del envejecimiento en el metabolismo de las células B
Hay menos literatura sobre cómo se regula el metabolismo de las células B y cómo afecta la función a medida que los organismos envejecen. Un estudio mostró que las células B secretoras de anticuerpos de personas de edad tenían una expresión más baja de SIRTI, y los niveles más altos de SIRT1 se asociaron con una mejor respuesta de anticuerpos a múltiples cepas del virus de la influenza [164]. Además, las células B vírgenes y activadas de los ancianos tenían una capacidad glucolítica ligeramente menor y una reducción más sorprendente de OXPHOS. En ratones, las células B envejecidas tenían tasas de glucólisis y OXPHOS similares a las de sus contrapartes jóvenes, pero no podían mejorar aún más la OXPHOS tras la estimulación[165]. ]. Sin embargo, las células pudieron regular al alza la glucólisis para satisfacer sus necesidades energéticas.
La leptina, una hormona proinflamatoria secretada por los adipocitos, es más alta en la circulación de las personas obesas [166]. Entre las personas no obesas, las concentraciones de leptina son notablemente más elevadas en los ancianos [167]. La abundancia de leptina en el suero también se asocia positivamente con la fragilidad[168]. Después de la exposición a la leptina, las células B de individuos delgados jóvenes exhiben un perfil similar al de las células B de individuos delgados mayores y obesos jóvenes con respecto al perfil transcripcional y la secreción de anticuerpos [167]. La leptina también disminuye la producción de anticuerpos específicos contra la influenza a partir de células B in vitro. Se sabe que la obesidad afecta la respuesta de las células B a la vacunación, y los estudios sugieren que la leptina podría ser parcialmente responsable de esto [169].
Además, la glicosilación postranscripcional de anticuerpos modula su función, y los patrones de glicosilación alterados se han relacionado con el envejecimiento [170,171]. 4-La actividad de la galactosiltransferasa aumenta con la edad [172], lo que tendría consecuencias funcionales, aunque aún no exploradas.
Metabolismo en inmunidad entrenada
La reprogramación metabólica es uno de los mecanismos clave subyacentes a la inmunidad entrenada (también conocida como memoria inmune innata), junto con la remodelación de la cromatina. De hecho, los cambios metabólicos pueden impulsar cambios epigenéticos ya que ciertos metabolitos, por ejemplo, acetil-CoA, pueden regular las enzimas epigenéticas [173]. Fumarato es un ejemplo de metabolitos de TCA que impulsan cambios epigenéticos. Puede inducir inmunidad entrenada por sí solo, y su acumulación durante este proceso induce la trimetilación de la histona 3 lisina 4 en los promotores de IL-6 y TNF [104]. Esto se debe a que el fumarato inhibe la actividad de la histona desmetilasa KDM5 específica de lisina.
La vía AKT/mTOR/HIFl es la vía más crítica para inducir la glucólisis aeróbica en monocitos entrenados con -glucano[174]. Contrariamente a la inmunidad entrenada inducida por -glucano, BCG regula al alza no solo la glucólisis sino también OXPHOS [175]. La glutaminólisis y la síntesis de colesterol son otras vías metabólicas cruciales para la inmunidad entrenada inducida por β-glucano[104]. La interrupción de estas vías bloquea estos procesos in vitro e in vivo. La BCG también induce la glutaminólisis, y la disponibilidad de glutamina es importante para la respuesta entrenada [175].

La síntesis de colesterol en sí no es esencial para la inmunidad entrenada, sino más bien la acumulación del mevalonato intermedio. El bloqueo de la generación de mevalonato inhibe la inmunidad entrenada, mientras que el mevalonato solo puede inducir inmunidad entrenada en los monocitos a través de la activación del receptor del factor de crecimiento similar a la insulina 1 (IGF1) y mTOR [176].que es una cistancheAdemás, los cambios en las vías de la glucólisis y del mevalonato se observan no solo en los monocitos sino también en las HSPC[108].
oxLDL, un inductor no microbiano de la memoria inmunitaria innata, regula al alza tanto la glucólisis como el consumo de oxígeno, y la alta disponibilidad de glucosa mejora aún más la respuesta inmunitaria entrenada [103]. De manera similar, la inmunidad entrenada inducida por catecolaminas se acompaña de un aumento de la glucólisis y del consumo de oxígeno. Es de destacar que el cableado metabólico particular podría diferir para diferentes inductores de la memoria inmune innata. Por ejemplo, la estimulación con aldosterona no se asocia con glucólisis elevada u OXPHOS, sino que depende de la síntesis de ácidos grasos [177].
Hasta el momento, las respuestas inmunitarias entrenadas y los estados metabólicos asociados no se han caracterizado en el contexto del envejecimiento. Sin embargo, varios estudios a gran escala en curso sobre la vacunación con BCG en ancianos pronto arrojarán luz sobre los efectos de la inmunidad entrenada inducida por BCG en el metabolismo de las células inmunitarias envejecidas (NCT04537663, NCT04417335).
Papel de las alteraciones epigenéticas en la memoria inmunológica
Los cambios epigenéticos incluyen modificaciones de histonas y metilación del ADN que regulan la forma en que funciona un gen. Estas modificaciones son dinámicas y afectan a todas las células y tejidos a lo largo de la vida. El entorno y el estilo de vida, así como el envejecimiento, pueden provocar alteraciones epigenéticas dramáticas. A los efectos de esta revisión, nos centraremos en cómo las modificaciones epigenéticas dependientes de la edad alteran la memoria inmunitaria innata y adaptativa.
Metilación del ADN en inmunidad adaptativa
La metilación del ADN es la modificación epigenética más abundante que se produce al transferir un grupo metilo al quinto carbono de la citosina [178]. La metilación del ADN no siempre indica una menor expresión génica; sin embargo, la metilación en los promotores de genes generalmente se asocia con una unión deficiente de TF y una transcripción reducida [179]. El sexo biológico, los antecedentes genéticos, los factores ambientales y la edad afectan el perfil de metilación del ADN [180]. Entre estos factores, la metilación dependiente de la edad está muy bien caracterizada. Sorprendentemente, se desarrollan diferentes modelos matemáticos para predecir la edad biológica en función de los niveles de metilación de ciertos sitios CpG de varios tejidos o células [180-182].
La edad avanzada se asocia con una pérdida progresiva de las marcas de metilación en el ADN [183], aunque también se observan patrones anormales de hipermetilación en algunos promotores de genes [184]. Los cambios en el panorama de la metilación son La pérdida de la proteína coestimuladora CD28 en las células T CD4 plus es una de las marcas de envejecimiento bien caracterizadas, lo que conduce a una activación y diferenciación deficientes de las células T. Una comparación de los perfiles de metilación de las células T CD28 plus y CD28 "l reveló 296 genes metilados diferencialmente asociados con una señalización de TCR deficiente y una respuesta citotóxica [194]. Además, la expresión de los genes involucrados en la activación del inflamasoma fue mayor en las células T CD28nul, lo que sugiere que estas células tienen un estado de preactivación más alto.Otro estudio informó que el aumento de la metilación en el locus BACH2 de las células T CD4 más en los grupos de edad media y avanzada da como resultado una expresión más baja de BACH2 [195].BACH2 tiene un papel regulador en el sistema inmunológico respuestas, modulando la diferenciación de células T CD4 más y controlando la inflamación.196 En general, las alteraciones en los patrones de metilación del ADN contribuyen a que las células T CD4 más se vuelvan más inflamatorias en los ancianos.
Algunos estudios arrojan luz sobre el perfil de metilación del ADN de las células B durante la activación y las enfermedades [197-200]; sin embargo, aún no se sabe si las células B se ven afectadas por los cambios de metilación dependientes de la edad.
Modificaciones de histonas en la inmunidad adaptativa
Las colas de histonas N-terminales son objetivos para modificaciones enzimáticas postraduccionales que incluyen acetilación, metilación, fosforilación, ubiquitilación y sumoilación [201]; sin embargo, esta revisión se centrará en la metilación y la acetilación, que son las alteraciones mejor caracterizadas que regulan la estructura de las histonas. Los grupos metilo se agregan a la histona por histona metiltransferasas y se eliminan por histona desmetilasas [202]. La trimetilación de la histona 3 lisina 4 (H3K4me3), la histona 3 lisina 36 (H3K36) y la histona 3 lisina 79 (H3K79) están vinculadas a regiones abiertas y transcritas activamente [203]. Por otro lado, la monometilación de la histona 3 lisina 9 (H3K9me), la histona 3 lisina 27 (H3K27me) y la histona 4 lisina 20 (H4K20me) se asocia con regiones de cromatina cerradas e inactivas. Además, la acetilación de histonas se asocia con una estructura de cromatina suelta y un aumento de la transcripción de genes [204]. Las histonas acetiltransferasas catalizan la acetilación de lisina, mientras que las histonas desacetilasas (HDAC) invierten la modificación [205]. Las modificaciones postraduccionales de las histonas no solo influyen en la accesibilidad y la transcripción de los genes, sino que también modulan el empalme alternativo, la replicación del ADN y la reparación [206]. Las histonas y las marcas epigenéticas en las histonas experimentan transiciones con el envejecimiento. Las HSC de ratones viejos tienen más picos H3K4me3 y H3K27me3 en comparación con las HSC jóvenes [186]. Además, la expresión de FLT3, uno de los reguladores de CLP, disminuyó debido a H3K27me3 en las HSC viejas, lo que sugiere un vínculo entre el potencial de diferenciación linfoide deficiente de HSC en ancianos. Un extenso estudio realizado en gemelos monocigóticos jóvenes y viejos mostró que las modificaciones de la cromatina durante el envejecimiento no son hereditarias [207]. Además, los perfiles de modificación de histonas son, hasta cierto punto, homogéneos en individuos jóvenes y heterogéneos en sujetos ancianos. Se observó heterogeneidad en las modificaciones de histonas entre individuos y también tipos de células en los ancianos.

Los cambios epigenéticos son una de las causas subyacentes de los principales defectos observados en las células T CD8 plus de los ancianos. Se observan regiones de cromatina más cerradas en las regiones potenciadoras y promotoras de los genes relacionados con la señalización de células T en los ancianos en comparación con los jóvenes [208]. Además, -7R, en la memoria CD8 más células T, es uno de los principales genes relacionados con múltiples picos de cromatina cerrados en los ancianos. Dado que la IL-7 garantiza la homeostasis y el mantenimiento de las células T y B, la señalización deficiente de la IL-7 en los ancianos podría ser una razón subyacente de una respuesta inmunitaria adaptativa alterada [209]. Además, las células ingenuas CD8 plus en los ancianos tienen una menor accesibilidad a la cromatina en los promotores de genes asociados con una unión deficiente del factor respiratorio nuclear 1 (NRF1) [140]. Teniendo en cuenta el papel de NRF1 en la fosforilación oxidativa, la disminución de la actividad de la cromatina podría explicar parcialmente el deterioro del metabolismo de las células T CD8 en los ancianos [210]. Otros hallazgos significativos del estudio son que las regiones de cromatina abierta están asociadas con un perfil de células de memoria, y la accesibilidad de los promotores disminuye en personas de edad avanzada.
Como se mencionó en la sección de metilación del ADN, se observa una disminución en la expresión de BACH2 asociada con la edad en las células T CD4 plus. Otro mecanismo que conduce a una menor transcripción del gen BACH2 se debe a la deficiencia de Menina observada en la senescencia inmunitaria [211]. Menin induce la expresión de BACH2 uniéndose a su locus y manteniendo la acetilación de histonas. La disminución de la unión de Menin al locus BACH2 y, posteriormente, la reducción de la expresión de BACH2 contribuye a la inmunosenescencia en las células T CD4 plus. Un estudio que investigó los cambios epigenéticos en precursores de células B en ratones viejos y jóvenes asoció estas alteraciones con expresiones génicas [212]. Reveló que las células pre-B envejecidas exhiben una pérdida de H3K4me3 en el sitio promotor del sustrato del receptor de insulina 1 (IRSI), que se asocia con una transcripción más baja. Dado que la señalización de la insulina es necesaria para el desarrollo de las células B en la médula ósea[213], la disminución de la señalización del factor de crecimiento de la insulina (IGF) podría provocar defectos en el desarrollo de las células B.
La reprogramación epigenética como sello distintivo de la inmunidad entrenada
Un perfil epigenético distinto regula las respuestas inmunitarias entrenadas después del primer ataque. Como resultado de ciertas infecciones o estimulaciones, las células cebadas sufren una reprogramación epigenética que les permite responder con más fuerza ante una infección heteróloga al facilitar la transcripción de genes relacionados con la inflamación y el metabolismo [106].
H3K4me3 es la primera marca epigenética caracterizada en monocitos después del tratamiento con -glucano [91]. Un análisis posterior reveló que los picos de H3K4me3 están enriquecidos en los sitios promotores de los genes TNF, IL6, IL18, DESTINY y MYD88, lo que indica que las transcripciones de genes son más activas en estas regiones. Además, el aumento de H3K27ac es una marca de histona bien caracterizada en células entrenadas, que promueve la glucólisis y la activación de la vía PI3K/AKT[174, 214]. Además del enriquecimiento en H3K4me3 y H3K27ac, se encontró una disminución de H3K9me3 en los promotores de genes relacionados con la producción de citocinas y la glucólisis[175]. Dado que H3K9me3 es una marca represiva, la trimetilación reducida sugiere la presencia de regiones de cromatina abierta. Estos estudios muestran que las respuestas inmunitarias entrenadas están moduladas por modificaciones epigenéticas que facilitan respuestas mejoradas de citoquinas y cambios metabólicos específicos. Las células entrenadas comparten un perfil epigenético común; sin embargo, diferentes estímulos podrían conducir a alteraciones epigenéticas únicas menores.
Las infecciones y ciertas estimulaciones dejan marcas en el perfil de metilación del ADN, así como en las histonas, de las células inmunitarias innatas [215]. Los estudios demuestran el papel de la metilación del ADN en la respuesta anti-micobacterias después de la vacunación con BCG, discriminando a los respondedores de los no respondedores [216,217]. Los que respondieron a la vacuna BCG se caracterizaron por una reducción de la metilación del ADN en los promotores de los genes inflamatorios [216]. Sin embargo, todavía se está investigando si la (des)metilación del ADN juega un papel directo en el desarrollo de respuestas protectoras no específicas.
Como en los adultos, la inmunidad entrenada es modulada por modificaciones de histonas en los ancianos. Giamarellos-Bourboulis y sus colegas demostraron recientemente que el aumento de la producción de citoquinas tras la vacunación con BCG en los ancianos estuvo acompañado por la acetilación de H3K27 en las regiones promotoras de los genes TNF e IL6 [113]. Sin embargo, se justifican más estudios para comparar las diferencias epigenéticas después del desarrollo de la memoria inmune innata entre adultos y personas mayores y explorar cómo el envejecimiento influye en las marcas epigenéticas en el contexto de la inmunidad entrenada.
Memoria inmunitaria moduladora de la microbiota intestinal
El envejecimiento provoca cambios en todo el cuerpo de los seres humanos, y los billones de microbios que viven allí no tienen excepciones. La composición y diversidad de la microbiota intestinal cambia dinámicamente en la infancia, permanece relativamente estable durante la edad adulta y comienza a disminuir con la vejez [218].
Interacciones de la microbiota y el sistema inmunitario adaptativo
La microbiota intestinal tiene funciones esenciales en la educación del sistema inmunitario adaptativo al inducir un cierto nivel de respuesta inmunitaria y ajustar la inflamación. Por ejemplo, Bacteroides fragilis, un comensal en el intestino, mejora y regula la diferenciación de las células T CD4 plus en T helper 1 (Th1) y Th2[219]. En presencia de bacterias intestinales y TGF, las células T CD4 plus vírgenes se convierten en Tregs, produciendo IL-10 para mantener la homeostasis inmune. Por otro lado, las células Tregs y Th17 en los folículos linfoides del intestino inducen el cambio de clase de células B, lo que resulta en la secreción de IgA [220,221]. La secreción de IgA, IgM e IgG asociada a la microbiota de las células B también se produce a través de la activación de la señalización de TLR sin la ayuda de las células T [22].
El sistema inmunitario adaptativo puede limitar la respuesta inflamatoria contra los microbios intestinales comensales mediada por el sistema inmunitario innato. La IgA producida por las células B se explica como parte de una interacción sostenible entre el huésped y el microbio, que controla la respuesta inflamatoria contra los microorganismos beneficiosos [223]. Además, las células Treg intestinales expresan TCR para antígenos intestinales, como productos metabólicos y comensales, mientras que otras Treg en el cuerpo expresan TCR para antígenos propios [224]. De esta manera, las Treg intestinales suprimen las respuestas inmunitarias contra los antígenos intestinales y juegan un papel inmunorregulador. papel en las entrañas.
La forma sorprendente en que la microbiota da forma al desarrollo del sistema inmunitario adaptativo también se demostró en ratones libres de gérmenes: la falta de especies microbianas en el intestino se caracteriza por defectos en el desarrollo del tejido linfoide secundario [225], baja producción de IgA [226] y Th17 reducido. células y Tregs [227]. Cabe señalar que los ácidos grasos de cadena corta (AGCC) producidos por especies microbianas en el intestino contribuyen en gran medida al desarrollo y las respuestas del sistema inmunitario [228].
Una composición de microbiota intestinal saludable es importante para proteger a las personas de enfermedades. Por ejemplo, la IL-10 que secreta IgA más las células plasmáticas y los plasmablastos que se originan en el intestino confieren resistencia a la encefalomielitis autoinmune experimental inducida en ratones [229]. Otro estudio informó que la microbiota intestinal protege contra las infecciones respiratorias inducidas por S.pneumoniae y K. pneumoniae al inducir la secreción de GM-CSF e IL-17A [230].
El papel de la disbiosis en el envejecimiento
La incidencia de disbiosis intestinal, el desequilibrio de las especies microbianas, aumenta con la edad y se asocia con numerosos problemas de salud [231]. Sin embargo, no está claro si las alteraciones celulares y moleculares de las células inmunitarias durante el envejecimiento afectan la composición y el funcionamiento de la microbiota intestinal, o si la disbiosis relacionada con la edad desencadena respuestas inmunitarias defectuosas. Es probable que ambos sean ciertos al mismo tiempo, pero se necesita una mejor comprensión de las interacciones entre la microbiota intestinal y el sistema inmunitario para resolver esta cuestión.
A medida que los individuos envejecen, la disminución de ciertas especies bacterianas beneficiosas, como Bifidobacterium, es reemplazada por el crecimiento de especies patógenas, es decir, Enterobacteriaceae [232]. También se informa una disminución de Firmicutes y un aumento de Proteobacteria en personas mayores [233]. Además, la disbiosis intestinal se asocia con varias enfermedades relacionadas con la edad, como la obesidad [234], la diabetes tipo 2 [235], la enfermedad de Alzheimer [236] y una mayor incidencia de infecciones [237-239]. El riesgo de desarrollar cáncer también es mayor en los ancianos debido a la inflamación crónica asociada con la disbiosis, la fagocitosis debilitada de las células tumorales senescentes y latentes y la activación alterada de las células T CD8 plus específicas del tumor [240].
También se propuso que la disbiosis es una de las principales razones de diversas patologías asociadas con la edad y muerte prematura en personas mayores al desencadenar un exceso de inflamación y varias complicaciones, incluido el intestino permeable y la disminución de las funciones del tracto gastrointestinal [228]. De acuerdo con esto, una composición particular y diversidad de especies microbianas se correlaciona con la salud, el estado físico y una mayor supervivencia en los ancianos [241,242]. Un estudio reciente reveló que los ancianos sanos experimentan una variación particular en la composición de su microbiota, mientras que esta variación no se observa en los ancianos frágiles [242]. Además, tener una gran abundancia de Bacteroides durante el envejecimiento se correlaciona con una menor tasa de supervivencia durante el seguimiento de 4-años. Otro trabajo reciente con 15 años de seguimiento informó que la abundancia de Enterobacteriaceae estaba significativamente relacionada con las muertes relacionadas con causas gastrointestinales y respiratorias en los ancianos [243].
La disbiosis puede provocar defectos en la integridad de la barrera intestinal, lo que da como resultado la translocación de especies bacterianas a los tejidos del huésped. Esas bacterias crean inflamación a través del reclutamiento de neutrófilos y células Th17 diferenciadas [244]. Por ejemplo, la translocación de un patobionte grampositivo E. gallinarum que resulta de defectos en la barrera intestinal induce la respuesta Th17 y la producción de autoanticuerpos [245].
Akkermansia es un comensal beneficioso que se ha demostrado que protege la integridad de la barrera intestinal [228] y mejora las respuestas de anticuerpos y células T [246]. La pérdida de Akkermansia se asocia con la resistencia a la insulina en primates no humanos y ratones de edad avanzada [247. La disminución de la abundancia de butirato y Akkermansia aumenta la fuga intestinal, lo que a su vez aumenta las respuestas proinflamatorias.
Un estudio en humanos, por otro lado, informó que la manía de Akker es más abundante en los ancianos [248]. Además, Akkermansia se correlacionó significativamente con la IgA sérica y las células T CD8 más y se correlacionó negativamente con las células T CD4 más en las personas mayores. Los bacteroidetes, que son menos abundantes en los ancianos, se correlacionaron positivamente con los niveles séricos de IgG y la abundancia de células T CD4 más en el grupo de mediana edad. En conclusión, este estudio destaca la relación entre el sistema inmunitario adaptativo y la composición de la microbiota intestinal, aunque falta el vínculo directo entre ellos.
La microbiota también afecta el curso de la enfermedad y las respuestas a las vacunas en los ancianos. Si bien la terapia antiviral para el virus de la inmunodeficiencia humana (VIH) es exitosa y aumenta la esperanza de vida de los pacientes, las personas mayores con VIH sufren más de comorbilidades en comparación con las personas mayores con VH. Las personas mayores con VIH tienen menos células T CD4 más y más células T CD8 más que las personas con VIH mayores de 55 años[249]. Además, la abundancia de Prevotella en el intestino es significativamente mayor en personas con recuentos bajos de células T CD4 más. Prevotella se asoció anteriormente con enfermedades cardiovasculares [250], pero aún no está claro cómo interactúa con el sistema inmunitario. Es probable que las alteraciones de la microbiota intestinal que dependen de la edad contribuyan a una respuesta inmunitaria deficiente después de las vacunas [251]. Algunos estudios informaron que los suplementos de probióticos aumentan los títulos de anticuerpos después de la vacuna contra la influenza en los ancianos [252-255], mientras que algunos estudios mostraron un efecto limitado o nulo [87,256,257]. Las variaciones en los resultados podrían deberse a múltiples factores, incluido el tamaño de la muestra, el tipo de probiótico y la vía de administración. Sin embargo, los estudios sugieren fuertemente que los desequilibrios en la microbiota provocan respuestas inmunitarias deterioradas, y restaurar la composición saludable podría ser beneficioso para una mejor respuesta a la vacuna en los ancianos.
Inducción de la memoria inmune innata por la microbiota intestinal
Como células inmunitarias adaptativas, los miembros del sistema inmunitario innato interactúan estrechamente con la microbiota intestinal. Algunos estudios sugieren que la microbiota podría regular el desarrollo de la memoria inmunológica al preparar o tolerar las células con antígenos microbianos y SCFA. Por ejemplo, el -glucano, un componente de la pared celular fúngica, y el BCG actúan a través de las vías de señalización Dectin-1 y NOD2, respectivamente [91,100]. Dado que Dectin-1 y los receptores tipo Nod (NLR) se encuentran en varios tipos de células en los intestinos, incluidas las células no inmunitarias, es plausible proponer que estas células desarrollan una memoria inmunitaria debido a su exposición al microbioma intestinal. . Apoyando este argumento, se demostró que los fragmentos de peptidoglicano derivados de la microbiota intestinal estimulan el sistema inmunológico innato, promoviendo la capacidad de destrucción de los neutrófilos [258].
Además, se demostró que la microbiota intestinal induce mielopoyesis para proteger a los ratones contra la infección [259], de manera similar al aumento en el número de progenitores mieloides en la médula ósea de ratones después de la inducción de inmunidad entrenada mediante la administración de -glucano [108]. Otros componentes derivados de la microbiota, como el lipopolisacárido (LPS), la flagelina y el -glucano, también podrían inducir inmunidad entrenada en los intestinos, aunque la dosis de los estímulos es crítica para la memoria inmunológica o la respuesta de tolerancia [260]. Como se mencionó antes, la inmunidad entrenada está mediada por una extensa programación metabólica y epigenética. Las moléculas y los metabolitos producidos por los microbios intestinales comensales y los propios microbios pueden inducir tales cambios en las células inmunitarias tanto innatas como adaptativas [261]. Por ejemplo, a pesar de causar un aumento en la actividad antimicrobiana, el butirato producido por los microbios intestinales tiene efectos opuestos a la inmunidad entrenada en los macrófagos, posiblemente debido a la disminución de la actividad de mTOR y la inhibición de HDAC3 [262].
Es importante tener en cuenta que las células no inmunes, por ejemplo, los fibroblastos [263], las células epiteliales [264] y las células del estroma intestinal (ISC) [265] también son capaces de formar memoria inmune, mostrando una mayor capacidad de respuesta después de una infección secundaria. Se demostró que las ISC podían eliminar la infección más rápidamente durante una infección secundaria relacionada o no relacionada, lo que indica la presencia de memoria inmunitaria [266]. Por lo tanto, las células no inmunitarias también contribuyen a la homeostasis entre los microbios intestinales y el sistema inmunitario.
Teniendo en cuenta los fuertes vínculos entre la microbiota intestinal y la inducción de la memoria inmunitaria innata, sería concebible plantear la hipótesis de que la respuesta inmunitaria entrenada podría estar desregulada por la disbiosis en los ancianos. Una respuesta inmunitaria mal entrenada podría hacer que los ancianos sean más susceptibles a las infecciones, mientras que una respuesta exuberante podría contribuir a la patogenia de la enfermedad. Sin embargo, se necesita más investigación para comprender cómo los cambios en la microbiota relacionados con la edad afectan la memoria inmune innata.
Interferencia entre el sistema inmunológico y el cerebro
El envejecimiento provoca un gran deterioro en el sistema nervioso central (SNC) a través del daño en el ADN, la acumulación de productos de desecho, el estrés oxidativo, la alteración de la homeostasis energética y el deterioro de la función [267]. El cerebro y el resto del SNC no están inmunológicamente aislados, como se pensaba: existe una extensa interacción entre el sistema inmunitario y el SNC. La homeostasis y la regeneración del cerebro dependen de un sistema inmunitario robusto [268]. Por lo tanto, el deterioro del sistema inmunológico con la vejez contribuye y aumenta el envejecimiento cerebral y las enfermedades neurodegenerativas.
En el parénquima del SNC, el tipo de célula inmunitaria residente es la microglía, que se origina a partir de progenitores de macrófagos primitivos en el saco vitelino al principio del desarrollo [269]. La microglía es extremadamente importante para el mantenimiento de un cerebro sano. Realizan inmunovigilancia, responden a infecciones, orquestan la comunicación con el sistema inmunitario circulante, regulan las neuronas y otros tipos de células en el cerebro, fagocitan desechos celulares, proteínas mal plegadas, productos tóxicos e incluso sinapsis [270]. La microglía se altera con el envejecimiento y contribuye a las enfermedades neurodegenerativas relacionadas con la edad [271]. Su capacidad fagocítica se reduce con la edad y contribuyen a un estado de inflamación crónica de bajo grado. Debido al enfoque de esta revisión en la memoria inmunológica, no entraremos en detalles sobre la microglía y, en cambio, nos centraremos en el papel de la inmunidad adaptativa y la inmunidad entrenada en el contexto del envejecimiento cerebral.
La barrera hematoencefálica (BBB) evita en gran medida la infiltración de células inmunitarias en el cerebro. Sin embargo, ciertos tipos de células inmunitarias están presentes en el líquido cefalorraquídeo (LCR) y en la barrera sangre-LCR en el plexo coroideo (PC)[272]. CP, ubicado en los ventrículos del cerebro, es una red de células epiteliales productoras de LCR con capilares incrustados. Las células T están presentes en la PC y regulan el tráfico de células inmunitarias hacia el LCR mediante la activación del epitelio de la PC dependiente de IFNy [273].
Las células inmunitarias contribuyen a la supervivencia neuronal y la neurogénesis durante la homeostasis, tras una lesión o en condiciones neurodegenerativas [272]. El daño al SNC induce una respuesta protectora de células T que previene la pérdida neuronal [274]. Los linfocitos CD4 plus desempeñan el papel más destacado en esta "inmunidad neuroprotectora".
Inmunidad de células T neuroprotectoras
CP alberga células T CD4 plus con un fenotipo de memoria efectora que reconoce autoantígenos específicos del SNC[275]. Estas células pueden recibir señales de la circulación a través del epitelio y el SNC a través del LCR y orquestar una respuesta integrada para mantener la homeostasis cerebral [276]. Los astrocitos, un tipo de célula que ayuda a mantener las sinapsis y la BBB, entre otras funciones, asumen un fenotipo neuroprotector y reducen la apoptosis neuronal cuando se cultivan conjuntamente con células T [277]. Durante la lesión de la médula espinal, las células T autorreactivas específicas del SNC migran al sitio de la lesión, inhiben la formación de quistes y contribuyen a la preservación de los axones [278].
En ratones con deficiencia de células T, la proliferación de células progenitoras se reduce, lo que conduce a un menor número de nuevas neuronas, mientras que la neurogénesis se potencia en ratones transgénicos con un exceso de células T autorreactivas específicas del SNC [268]. La suplementación con la citoquina IFNy derivada de células T puede mejorar la neurogénesis en ratones viejos con enfermedad de Alzheimer [279]. Las células T específicas del SNC también son fundamentales para el aprendizaje espacial y la memoria. En ratones inmunodeficientes, la memoria espacial se ve afectada, pero se puede restaurar con la reconstitución de células inmunitarias incluso en ratones de edad avanzada [280]. En modelos de la enfermedad de las neuronas motoras, esclerosis lateral amiotrófica (ELA), la deficiencia de células T acelera la enfermedad, mientras que la reconstitución promueve la neuroprotección y retrasa la progresión de la enfermedad [281-283]. Sin embargo, cabe destacar que las células T contribuyen a la muerte de las neuronas dopaminérgicas en modelos de ratón con enfermedad de Parkinson [284].
Un mecanismo a través del cual las células T mejoran el mantenimiento del cerebro es la regulación del factor neurotrófico derivado del cerebro (BDNF). La señalización de BDNF a través del receptor de tropomiosina quinasa B (TrkB) desempeña funciones muy diversas, por ejemplo, en la neurogénesis adulta [285], la formación de memoria , y recuperación [286,287], y está regulado por tratamientos antidepresivos [288]. Los niveles de BDNF son más bajos en ratones con deficiencia de células T [268]. El BDNF se asocia con el comportamiento depresivo y la inmunización de ratones con un péptido derivado de la mielina, lo que genera inmunidad específica del SNC, restaura los niveles de BDNF, mejora la neurogénesis y reduce el comportamiento depresivo [289]. Además, la respuesta saludable al estrés en ratones está asociada con el tráfico de células T en el cerebro y los niveles de BDNF. El comportamiento ansioso causado por el estrés también se reduce mediante la inmunización con un péptido derivado de la mielina [290]. Además de las neuronas y la microglía, se ha demostrado que las propias células T secretan BDNF [291].
También se ha demostrado que las Treg son protectoras y retrasan la progresión de la enfermedad en la ELA al reducir la activación microglial [292]. En modelos de la enfermedad de Alzheimer, el trasplante de Treg mejora las capacidades cognitivas y reduce las placas amiloides [293]. Además, una relación Treg/Th17 más baja se correlaciona con una enfermedad más grave en pacientes con esclerosis múltiple, una enfermedad autoinmune debilitante que afecta a las neuronas [294].
Aunque una respuesta inmunitaria demasiado exuberante podría afectar la función cerebral, una inmunidad de células T afinada es claramente vital para la homeostasis cerebral saludable y la recuperación de una lesión. Cualquier intervención dirigida a este fenómeno debe controlarse cuidadosamente para evitar daños inflamatorios; sin embargo, los conocimientos sobre el papel de la inmunidad adaptativa en la salud del cerebro abren nuevas vías para contrarrestar las lesiones cerebrales o las enfermedades neurodegenerativas relacionadas con la edad.
Inmunidad Entrenada en Microglia
Estudios recientes sugieren que la memoria inmune innata se puede inducir en las células microgliales. Un estudio encontró reprogramación epigenética en la microglía presente durante al menos 6 meses después de la administración sistémica de LPS [295]. Curiosamente, mientras que una sola inyección de LPS indujo un fenotipo entrenado en microglía, la inyección repetida de LPS condujo a la inducción de tolerancia. De manera similar, también se encontró que la administración de dosis bajas de TNF inducía el entrenamiento de la microglía. En un modelo de ratón de la enfermedad de Alzheimer, la inmunidad entrenada exacerbó la enfermedad mientras que la tolerancia la alivió. Un estudio reciente confirmó el hallazgo del entrenamiento inducido por LPS y demostró que la administración sistémica de -glucano también podría inducir inmunidad entrenada en la microglía [296]. Sin embargo, el fenotipo entrenado de microglia solo se observó dos días después del cebado y ya no estaba presente el día 7, lo que posiblemente indica una falta de reprogramación epigenética sostenida. Por lo tanto, vale la pena investigar la fuerza y la persistencia del entrenamiento con diferentes dosis y diferentes regímenes de inyección.
El cerebro que envejece
Muchas funciones cerebrales se deterioran con el envejecimiento, y algunas incluso comienzan a declinar después de la tercera década de vida [297]. Las funciones deterioradas incluyen velocidad de procesamiento, resolución de problemas, razonamiento fluido, habilidades de percepción, fluidez verbal y memoria de trabajo. Sin embargo, las deficiencias no se correlacionan necesariamente con la edad cronológica. Es más bien el resultado de una mayor demanda de mantenimiento a través de la acumulación de daños y la incapacidad del sistema inmunitario para monitorear el cerebro para satisfacer estas demandas. Por supuesto, el envejecimiento contribuye tanto a la demanda como a la incapacidad del sistema inmunológico a través de los mecanismos discutidos anteriormente.
La microglía envejecida desarrolla un fenotipo proinflamatorio [298]. Después de una lesión o infección en la cabeza, producen una cantidad excesiva de citocinas proinflamatorias durante más tiempo en comparación con un cerebro joven y sano [299]. Este estado inflamatorio conduce a una inhibición de la neurogénesis [300, 301]. Un entorno proinflamatorio también inhibe los moduladores de la memoria a largo plazo, como el BDNF y la proteína asociada al citoesqueleto dependiente de la actividad, y provoca una disfunción de la memoria [299]. Los niveles circulantes de BDNF disminuyen con la edad en humanos, y se muestra que los niveles cerebrales disminuyen en modelos de roedores [302], lo que podría reflejar la disminución asociada con la edad en el número y la función de las células T.
El envejecimiento también se asocia con un mayor reclutamiento de células T CD8 plus de memoria efectoras en el PC y las meninges, las membranas que recubren el cerebro [303]. Se demostró que estas células alteran la función microglial durante la homeostasis, pero aumentan la producción de citocinas proinflamatorias tras la lesión. Además, los números de Treg están elevados en personas de edad avanzada; sin embargo, es probable que su capacidad y función migratoria estén deterioradas ya que no pueden controlar la neurodegeneración. Por ejemplo, las células Treg de pacientes con esclerosis múltiple tienen una capacidad inmunosupresora menor y no pueden sobrevivir en lesiones escleróticas en el cerebro [304].
En el caso de la inflamación crónica, mientras que las células inmunitarias innatas suelen mostrar una tolerancia que conduce a una menor producción de citocinas, la microglía se prepara para exhibir un fenotipo más inflamatorio, lo que acelera el deterioro cognitivo [305]. Además, los altos niveles de TNFa circulante observados en organismos de edad avanzada también podría causar daño al inducir inmunidad entrenada en microglia, como se discutió anteriormente. Por lo tanto, una inmunidad innata bien equilibrada es tan esencial para el mantenimiento saludable del cerebro como la inmunidad adaptativa.
Abordar el envejecimiento inmunológico desde todos los ángulos
Los esfuerzos para retrasar o revertir el envejecimiento están lejos de ser escasos. Sin embargo, las medidas de resultado evaluadas por la mayoría de los estudios están restringidas en el sentido de que no ofrecen información mecanicista ni se centran en procesos específicos. Sin embargo, algunas intervenciones interesantes, como la restricción calórica, la metformina y el ejercicio físico, interfieren con el envejecimiento en múltiples niveles que abarcan la inmunidad, el metabolismo, la epigenética, la microbiota y el sistema nervioso (Fig. 2). Los siguientes capítulos tratan
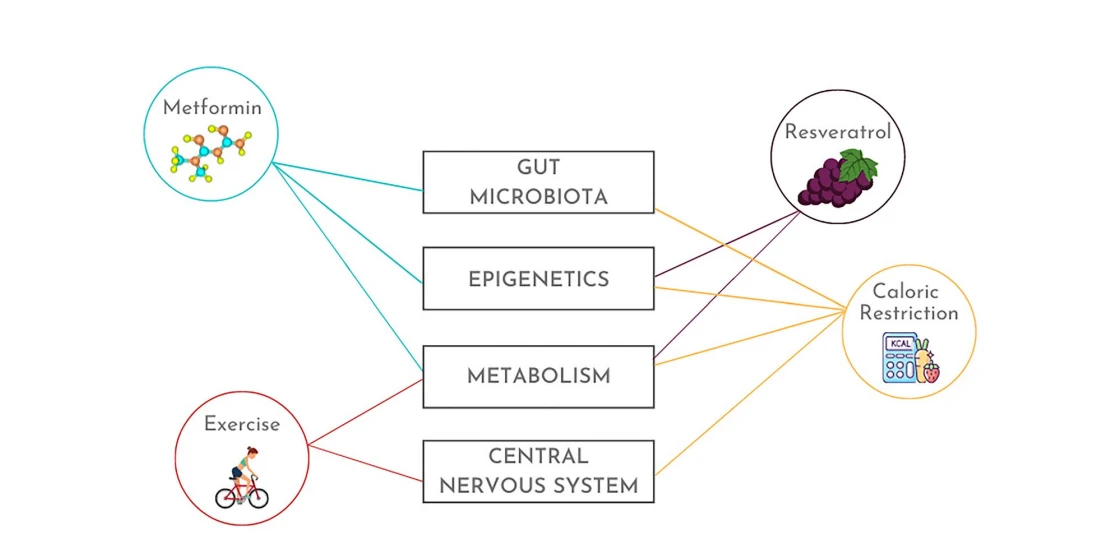
Fig. 2 Intervenciones antienvejecimiento prometedoras que se enfocan en múltiples facetas del proceso de envejecimiento. La metformina retrasa el envejecimiento de las células madre, mejora la función mitocondrial, previene el acortamiento de los telómeros, revierte las modificaciones epigenéticas relacionadas con la edad y reduce la fuga intestinal y la disbiosis. El ejercicio físico, incluso si se inicia tarde en la vida, mejora el número y las funciones de las células inmunitarias, restaura el metabolismo mitocondrial, previene la senescencia celular, contrarresta el deterioro cognitivo y reduce los riesgos de enfermedades neurodegenerativas. El resveratrol, disponible en las uvas y el vino tinto, actúa como antioxidante, prolonga la vida útil en varios organismos modelo, atenúa la inflamación sistémica y retarda el envejecimiento epigenético. La restricción calórica en 20-40 por ciento mejora la esperanza de vida y reduce la mortalidad por todas las causas en primates no humanos, retrasa el envejecimiento epigenético, restaura la microbiota intestinal y retrasa el deterioro cognitivo. Los mecanismos celulares compartidos por estos tratamientos incluyen la limitación del eje mTOR/AKT y la activación de AMPK y SIRT1 de diferentes maneras para abordar el problema del envejecimiento y detallar los mecanismos de los tratamientos antienvejecimiento más prometedores.
Intervenciones metabólicas
Durante la mayor parte de la evolución humana, los nutrientes eran escasos y se requería mucha actividad física para obtenerlos. Por lo tanto, los humanos evolucionaron para adaptarse a esas condiciones. Se propone que nuestro estilo de vida sedentario actual con una sobreabundancia de nutrientes causa la alta prevalencia de enfermedades metabólicas, como la obesidad, la diabetes y las enfermedades cardiovasculares [306]. Además, la edad es un factor de riesgo para estas condiciones, como se mencionó anteriormente, y la inmunosenescencia tiene mucho en común con los perfiles de enfermedades metabólicas. Por lo tanto, centrarse en las intervenciones metabólicas es un enfoque sensato para abordar el envejecimiento y los trastornos metabólicos simultáneamente. La restricción calórica (RC) y el ejercicio, acercándonos a las condiciones ancestrales, toman la delantera en esta línea de investigación.
CR se refiere a una reducción de la ingesta total de calorías en 20-40 por ciento. Desde levaduras hasta no primates, se ha demostrado repetidamente que la CR mejora la esperanza de vida [307]. En los monos rhesus, la CR a partir de la edad adulta joven redujo el riesgo de mortalidad relacionada con la edad en tres veces y la mortalidad por todas las causas en 1.{ {6}}veces [308]. En otro estudio, la CR disminuyó la incidencia de diabetes, cáncer y enfermedades cardiovasculares, al mismo tiempo que retrasó la aparición de la enfermedad [309]. Un estudio contrastante no informó ninguna mejora en la supervivencia, aunque se redujo la incidencia de cáncer y diabetes [310].
En un ensayo controlado aleatorizado de 218 personas no obesas, una dieta CR de 2-años redujo los niveles de TNF circulante y disminuyó notablemente los marcadores de riesgo cardiometabólico, como el colesterol y los triglicéridos, sin ningún efecto adverso relacionado con la intervención [311]. Hasta el momento, no hay ningún estudio en humanos que informe un efecto significativo de CR en la longevidad. Se necesitan estudios grandes y extensos con poblaciones genéticamente diversas para solidificar la promesa de RC en humanos.
Varios impactos metabólicos de la RC incluyen la regulación a la baja de mTOR y la señalización de insulina y la activación de SIRT1, que tienen amplias implicaciones en la función de las células inmunitarias [312]. Se ha demostrado que CR retrasa la senescencia de las células T en monos rhesus [313]. Además, las reservas de células T vírgenes CD4t y CD8 plus se expandieron, y la producción tímica y la proliferación de células T aumentaron, pero la producción de IFNy por las células CD8 plus se redujo después de la RC. Si bien reducir la cantidad de calorías consumidas parece revertir los cambios metabólicos inducidos por la edad y mejorar la salud y la longevidad, es importante señalar que algunos estudios en roedores informaron una respuesta adaptativa deficiente y una mayor mortalidad contra la influenza A y los virus del Nilo Occidental en animales de edad avanzada. después de RC [314,315]. Sin embargo, un estudio reciente con ratones reveló efectos protectores de CR contra la infección por M.tuberculosis. Este efecto se relacionó con el cambio metabólico caracterizado por la inhibición de mTOR, pero aumentó la glucólisis y redujo la FAO, junto con
aumento de la autofagia [316]. El inhibidor de mTOR, la rapamicina, actuó sinérgicamente con CR y mejoró aún más la autofagia, lo que llevó a una inhibición más eficiente de M. tuberculosis.
Similar a CR, el ejercicio promete interferir con la inmunosenescencia. Las mujeres mayores que hacían ejercicio regularmente tenían mejores funciones de las células NK y T en comparación con las mujeres sedentarias de la misma edad [317]. El número de células T vírgenes y la producción tímica fueron mayores en los ancianos físicamente activos, de forma similar a los adultos jóvenes, en comparación con los sedentarios [318]. También tenían una IL-6 circulante más baja y una IL{4}} más alta, que es esencial para el desarrollo de las células T. Sin embargo, el número de células T CD8 plus senescentes no difirió entre los grupos. Después de un programa de entrenamiento de 8-semanas, las células inmunitarias de adultos mayores mostraron una autofagia mejorada y un inflamasoma NLRP3 regulado a la baja [319]. El ejercicio también mejoró la mitofagia y la biogénesis mitocondrial tanto en las células del músculo esquelético como en las células inmunitarias, restaurando el estado metabólico celular deteriorado por el envejecimiento[320].
Además de las intervenciones en el estilo de vida, los reguladores metabólicos químicos también se investigan por su potencial antienvejecimiento. La metformina, utilizada de forma segura en humanos durante más de 60 años por su efecto reductor de glucosa, atenúa las características asociadas con la edad a través de una plétora de mecanismos. Estos incluyen la activación de AMPK, la inhibición de mTORCl, la mejora de la biogénesis mitocondrial, la regulación a la baja de la señalización de insulina/IGF1 y la activación de SIRT1 [321]. Además, la metformina retrasa el envejecimiento de las células madre y reduce el acortamiento de los telómeros. En general, parece actuar sobre todas las características del envejecimiento. Actualmente se está planificando un gran ensayo clínico de más de 3000 personas de 65-79 años para evaluar el potencial antienvejecimiento de la metformina (https://www.afar.org/tame-trial).
Everolimus, otro inhibidor de mTOR, atenuó la inmunosenescencia y mejoró las respuestas de anticuerpos a la vacunación contra la influenza en los ancianos [322]. Aunque la mayoría de los subconjuntos de células inmunitarias no se alteraron en este estudio, las células T positivas para la proteína de muerte celular programada 1 (PD-1), un marcador de agotamiento, se redujeron notablemente. Un estudio de seguimiento con 264 sujetos de edad avanzada informó una expresión antiviral regulada al alza, una mejor respuesta a la vacunación contra la influenza y, en general, menos infecciones [323]. La activación de SIRT1 es otro enfoque para abordar la inmunosenescencia. Se sabe que mejora la proliferación y función de las células B y, por lo tanto, podría ayudar a mejorar las respuestas de anticuerpos que disminuyen con la edad [324]. SIRT1 puede modular las vías metabólicas a través de la desacetilación de proteínas e histonas [325]. Los objetivos de SIRT1 incluyen NF-KB, factor inducible por hipoxia 1-alfa (HIFla) y factores de transcripción FOXO. Además, la activación de SIRT1 potencia la respuesta inmunitaria entrenada inducida por BCG [326]. A pesar de los estudios en ratones con activadores de SIRT1-que muestran fenotipos retrasados relacionados con la edad y una mayor esperanza de vida [327, 328], no hay evidencia que sugiera que SIRT1 se asocie con la longevidad en humanos [329].
El resveratrol, un polifenol que se encuentra en el vino tinto, es un potente activador de SIRT1[330]. También se muestra que activa AMPK y, por lo tanto, reprime la señalización de mTOR[331]. Aparte de los estudios in vitro y los modelos de enfermedades inflamatorias que muestran la actividad antioxidante y antiinflamatoria del resveratrol[332], varios estudios en ratones revelan su capacidad antiviral[333,334]. ratones sanos [327,335]. Sin embargo, en ratones alimentados con una dieta alta en calorías, el resveratrol desplazó el perfil transcripcional hacia el de los ratones alimentados de forma estándar [336]. También mejoró la sensibilidad a la insulina y aumentó la supervivencia. Se observaron resultados similares en monos rhesus con una dieta rica en grasas y azúcar [337]. La suplementación de treinta días de hombres obesos con resveratrol indujo cambios metabólicos a través del eje AMPK-SIRT1 y redujo la inflamación sistémica, la glucosa y los niveles de triglicéridos [338]. Sin embargo, un estudio similar no informó ningún efecto beneficioso del resveratrol [339].
En general, existen enfoques terapéuticos muy prometedores dirigidos a las vías metabólicas subyacentes a la inmunosenescencia y las enfermedades metabólicas asociadas con la edad. Sin embargo, se necesitan ensayos controlados aleatorios a gran escala en humanos para ver si estas emocionantes observaciones en primates no humanos y organismos modelo más pequeños son traducibles para uso humano.
Estrategias de modulación de la epigenética
Se han empleado intervenciones epigenéticas para varias enfermedades relacionadas con la edad, por ejemplo, cáncer, diabetes y enfermedad de Alzheimer; sin embargo, solo unos pocos estudios se enfocan específicamente en cambios dependientes de la edad en la estructura epigenética[340]. En cambio, las intervenciones metabólicas empleadas para detener el inmunógeno también funcionan al alterar el panorama epigenético asociado con la edad. El resveratrol, CR y metformina son tres opciones terapéuticas prometedoras para reconfigurar la metilación del ADN relacionada con la edad y las modificaciones de histonas en los ancianos.
Un interesante estudio reveló que la regeneración del timo resultó en una edad epigenética 2.5-años más joven [341]. Los participantes entre 51 y 65 años de edad recibieron un tratamiento de 1-años con hormona de crecimiento humano recombinante, dehidroepiandrosterona (DHEA), que es un precursor de la hormona esteroide, y metformina. El tratamiento condujo a la restauración de la masa tímica funcional, cambios en los subconjuntos de células inmunitarias y la producción de citoquinas, así como un perfil epigenético alterado, que se asoció con una edad más joven.
Los monos Rhesus, que fueron expuestos a una restricción calórica del 40 por ciento, tardaron en mostrar los cambios de metilación que se encuentran en los monos mayores [342]. Aunque este estudio no proporciona evidencia directa de una vida más larga asociada con la deriva de metilación retrasada, sugiere que CR podría usarse para ralentizar el proceso de envejecimiento. De acuerdo con esto, mejorar la vida útil de los ratones con resveratrol o CR resultó en un envejecimiento epigenético más lento [343]. También se ha demostrado que la RC de por vida previene los cambios de metilación del ADN relacionados con la edad en el cerebro, proporcionando neuroprotección [344].
Algunos estudios explican cómo CR podría afectar la epigenética. Estos mecanismos incluyen la disminución de la acetilación de histonas mediada por una mayor expresión de SIRTI, una mayor actividad de la ADN metiltransferasa (DNMT) y la hipermetilación de genes reguladores específicos, como Ras [340]. Del mismo modo, la metformina actúa sobre las marcas epigenéticas mediante la activación de SIRT1 y la inhibición de las HDAC[345]. Hasta donde sabemos, no hay investigaciones que investiguen los efectos de la CR en las alteraciones epigenéticas relacionadas con el envejecimiento, posiblemente debido a las limitaciones de implementar tales intervenciones a largo plazo en humanos.
Tratamientos potenciales dirigidos a la microbiota
Dado que la microbiota intestinal regula el metabolismo del huésped, las intervenciones antienvejecimiento dirigidas al metabolismo afectan inevitablemente a la microbiota intestinal. Por ejemplo, además de actuar sobre las vías metabólicas, la metformina modula la microbiota intestinal. Un estudio que investigó los efectos de la metformina en ratones obesos y de edad avanzada encontró una disminución de IL-1 e IL-6 en la grasa del epidídimo, que se asoció con cambios en los microbios intestinales [346]. Además, los pacientes con diabetes tipo 2 que toman metformina tenían una mayor abundancia de Akkermansia en sus intestinos [347], lo que se correlacionó con una menor translocación bacteriana y un menor riesgo de disbiosis [348]. De acuerdo con esto, la metformina redujo el intestino permeable relacionado con la edad y inflamación en ratones [349].
Otra estrategia de tratamiento para detener el inmunógeno dirigiéndose a la microbiota es el uso de probióticos y prebióticos. Los probióticos son suplementos que contienen microorganismos vivos, mientras que los prebióticos son sustratos que los microorganismos pueden utilizar para ganarse la vida [350]. Aunque hay evidencia contradictoria, los estudios sugieren que el uso regular de probióticos puede modular la diversidad y abundancia de los microbios intestinales, disminuyendo la incidencia de disbiosis [351,352]. Los probióticos se asocian con respuestas inmunitarias mejoradas evidentes a partir del aumento de los recuentos de células B y T, una mayor actividad de las células NK [353] y una mayor producción de IgA contra el virus de la influenza en personas mayores [354]. Además, la suplementación con probióticos ayudó a reducir el crecimiento de la bacteria oportunista Clostridium dif-file entre los ancianos[355]. Contrariamente a estos hallazgos, un metanálisis de 10 estudios controlados aleatorios no mostró ningún efecto beneficioso de los probióticos en la disminución de la producción de citoquinas inflamatorias [356].
La combinación de probióticos con prebióticos, es decir, simbióticos, también tiene efectos beneficiosos, como la suplementación con probióticos. Dos meses de tratamiento en ancianos con una fórmula simbiótica mejoraron significativamente los parámetros del síndrome metabólico en circulación y disminuyeron las proteínas inflamatorias, como el TNF y la proteína C reactiva [357]. Un estudio de tratamiento simbiótico doble ciego de 4-semanas informó un aumento de bifidobacterias, actinobacterias, firmicutes y el metabolito butirato en el grupo de tratamiento en comparación con el placebo, mientras que las proteobacterias y las citoquinas proinflamatorias fueron más bajas [358].
La restricción calórica podría ser otra estrategia de tratamiento para mejorar las funciones cognitivas, los parámetros metabólicos y la microbiota intestinal en los ancianos. CR ralentizó el deterioro cognitivo en un modelo de ratón de la enfermedad de Alzheimer, asociado con un aumento de Bacteroides en los intestinos. Los ratones de edad avanzada que recibieron un 30 % menos de calorías durante 2 meses mostraron cambios significativos en su microbiota hacia una composición más equilibrada similar a la de los ratones jóvenes [359]. La RC de por vida indujo cambios más extensos en la microbiota, redujo la concentración de péptidos inflamatorios y aumentó la vida útil de los ratones [360]. Sin embargo, un estudio reciente reveló que la RC grave, más del 50 por ciento, interrumpe la diversidad de la microbiota y conduce al crecimiento de la bacteria patógena C. difficile [361]. Por lo tanto, es fundamental determinar cuidadosamente el alcance y la duración de la RC.
Intervenciones para el envejecimiento cerebral
El ejercicio físico es una excelente manera de promover la salud del cerebro. El ejercicio contrarresta el deterioro cognitivo, reduce el riesgo de demencia, mejora la memoria espacial y aumenta la neuroplasticidad [362]. La actividad física puede atenuar los efectos de los alelos de riesgo para el deterioro de la memoria [363] y proteger contra el desarrollo de la enfermedad de Alzheimer [364,365]. Una revisión sistemática de 16 estudios con un total de 163 797 participantes informó que el ejercicio regular condujo a una reducción del riesgo de demencia y Alzheimer del 28 % y del 45 %, respectivamente [366]. Cabe destacar que la reducción del riesgo asociado con el ejercicio se observó en la mayoría de los estudios individuales, independientemente de la frecuencia y la intensidad del ejercicio.
Los estudios sugieren efectos antioxidantes y antiinflamatorios del ejercicio como mecanismos potenciales detrás de la neuroprotección [367,368]. Las consecuencias antiinflamatorias del ejercicio incluyen una reducción de la IL-6 circulante pero un aumento de la IL-10 y la IL-1RA, un menor número de Treg, un mayor número de monocitos inflamatorios en circulación y una función inhibida de los monocitos [ 369]. Además de esto, el ejercicio físico se asocia con células T senescentes reducidas, mayor citotoxicidad de células NK y fagocitosis de neutrófilos, y telómeros más largos en los leucocitos [370]. Además, el ejercicio cardiovascular moderado mejoró la seroprotección después de la vacunación contra la influenza en los ancianos [371]. La ralentización de la inmunosenescencia limitaría el envejecimiento cerebral y el deterioro cognitivo a través de una mejor inmunovigilancia y reparación del SNC.
Además, incluso una sola sesión de ejercicio aumenta los niveles de BDNF, lo que aumenta aún más con el ejercicio regular [372]. Curiosamente, el aumento de BDNF relacionado con el ejercicio es más pronunciado en los hombres que en las mujeres. También se ha demostrado que los cuerpos cetónicos inducen la expresión de BDNF [373,374], lo que posiblemente contribuya al efecto neuroprotector de las dietas cetogénicas en enfermedades neurológicas [375].
CR es otra intervención que ha demostrado prevenir el daño neuronal. Conduce a una mayor expresión de BDNF y una mejor neurogénesis [376], provoca un cambio energético de la glucólisis al uso de cuerpos cetónicos, protege la integridad de la materia blanca y mejora la memoria a largo plazo en ratones [377]. En ratas, un régimen CR de días alternos promueve la resistencia neuronal al daño inducido químicamente [378]. Es probable que un mecanismo de neuroprotección inducida por CR se deba a la supresión del estrés oxidativo en el cerebro [379,380]. Sin embargo, se informó que la CR severa con una reducción del 50 por ciento en la ingesta de calorías causaba un comportamiento depresivo en ratas [381]. En modelos de ratón con la enfermedad de Alzheimer, la RC es capaz de limitar la deposición de placa amiloide [382,383], posiblemente a través de un mecanismo que implica la activación de SIRT1 [384].
A pesar de todos los resultados positivos en roedores, los efectos neuroprotectores de la CR no son muy claros en primates no humanos, mientras que faltan grandes estudios en humanos [385]. Sin embargo, un pequeño ensayo controlado aleatorizado con seres humanos no produjo mejoras significativas en la función cognitiva [386]. Otro estudio clínico en adultos mayores mostró mejores puntajes de memoria después de 3 meses de CR [387]. Se informó una memoria mejorada, junto con una mayor conectividad funcional en el hipocampo, en mujeres obesas que se sometieron a una dieta CR de 3-meses [388]. Se necesitan estudios humanos más extensos con CR para comprender el alcance de los efectos neuroprotectores.
Curiosamente, recientemente se demostró que la vacuna BCG reduce el riesgo de enfermedades de Alzheimer y Parkinson en pacientes con cáncer de vejiga tratados con inmunoterapia con BCG, en comparación con pacientes no tratados [389, 390]. En el tratamiento del cáncer de vejiga, la BCG se aplica directamente en la vejiga, en lugar de la vía de administración intradérmica habitual. Futuros proyectos de investigación emocionantes serían evaluar los efectos del BCG intradérmico en las enfermedades neurodegenerativas e investigar los mecanismos subyacentes para averiguar si la inmunidad entrenada desempeña un papel en los efectos neuroprotectores. Actualmente, se está realizando un ensayo clínico con inyecciones intradérmicas de BCG en pacientes con Alzheimer de inicio tardío (NCT04449926).
Observaciones finales
El envejecimiento biológico es un proceso complejo que involucra a todos los sistemas del organismo. El sistema inmunitario está en el mismo centro, interactuando con todos los demás. El sistema inmunitario que envejece es el culpable de la alta susceptibilidad de los ancianos a infecciones y enfermedades metabólicas y neurodegenerativas relacionadas con la edad, entre otras. Por lo tanto, mejorar las respuestas inmunológicas innatas y adaptativas es sumamente importante para reducir la morbilidad y la mortalidad relacionadas con la infección y mejorar la respuesta a la vacuna en las personas mayores. Aquí, también presentamos una gran cantidad de investigaciones que insinúan nuevas funciones de la memoria inmunológica en la regulación metabólica y el mantenimiento de un sistema nervioso central saludable. Abordar el envejecimiento desde todos los ángulos, con la inmunidad como nodo central, y diseñar intervenciones antienvejecimiento dirigidas a los mecanismos comunes que se ven afectados por el envejecimiento en todas partes es una forma sensata de seguir investigando. Las intervenciones conductuales, como la restricción calórica y el ejercicio físico, así como los agentes farmacológicos, como la metformina y el resveratrol, pueden regular muchas facetas del envejecimiento y han arrojado resultados prometedores en modelos animales y humanos. Una estrategia integral es esencial para los seres humanos que se esfuerzan por vivir una vida larga con intestinos sanos, cerebros funcionales y libres de infecciones graves.
Declaraciones
Conflicto de intereses Los autores declaran no tener intereses en conflicto.
Acceso abierto Este artículo tiene una licencia Creative Commons Attribution 4.0 International License, que permite el uso, el intercambio, la adaptación, la distribución y la reproducción en cualquier medio o formato, siempre que se otorgue el crédito correspondiente al autor original. (s) y la fuente, proporcione un enlace a la licencia Creative Commons e indique si se realizaron cambios. Las imágenes u otro material de terceros en este artículo están incluidos en la licencia Creative Commons del artículo a menos que se indique lo contrario en una línea de crédito al material. Si el material no está incluido en la licencia Creative Commons del artículo y su uso previsto no está permitido por la regulación legal o excede el uso permitido, deberá obtener el permiso directamente del titular de los derechos de autor. Para ver una copia de esta licencia, visite http://creativecommons.org/licenses/by/4.0/.
Este artículo se extrajo de Clinical Reviews in Allergy & Immunology https://doi.org/10.1007/s12016-021-08905-x


