
Investigación sobre algunos métodos para tratar la lesión renal
Mar 17, 2022
joanna.jia@wecistanche.com/ WhatsApp: 008618081934791
Reprogramación metabólica renal mediada por IL-22-a través de PFKFB3 para tratar la lesión renal
Wei Chen y otros
Gráficamente abstracto
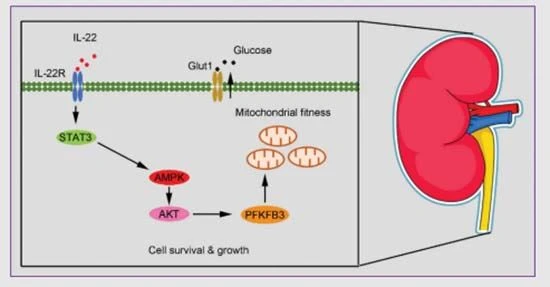
IL-22 atenúariñónlesióna través de la reprogramación metabólica de los TEC renales, regula la función mitocondrial y la glucólisis en los TEC dañados y alivia la acumulación de ROS mitocondriales y mitocondrias disfuncionales a través de la inducción de actividades AMPK/AKT y PFBFK3. mejorarriñónlesiónofIL-22 a través de la regulación de la señalización relevante del metabolismo está certificado en modelos animales de daño renal inducido por cisplatino y nefropatía diabética.
Resumen
El daño renal inicia el deterioro de los estados metabólicos en las células de los túbulos que conducen al desarrollo de la enfermedad renal en etapa terminal (ESTD). La interleucina-22 (IL- 22) es un antídoto terapéutico eficaz parariñónlesióna través de la promoción de la recuperación renal, pero se sabe poco sobre los mecanismos moleculares subyacentes. Aquí, primero proporcionamos evidencia de que IL-22 atenúariñónlesióna través de la reprogramación metabólica de las células epiteliales tubulares renales (TEC). Específicamente, nuestros datos sugieren que IL-22 regula la función mitocondrial y la glucólisis en TEC dañados. Otras observaciones indican que IL-22 alivia la acumulación de especies reactivas de oxígeno (ROS) mitocondriales y mitocondrias disfuncionales mediante la inducción de la señalización de AMPK/AKT y las actividades de PFBFK3. En ratones, la mejora deriñónlesióny la necrosis y la mejora de las funciones renales a través de la regulación de estas señales metabólicas relevantes y la aptitud mitocondrial de la IL-22 recombinante están certificadas en modelos animales de daño renal inducido por cisplatino y nefropatía diabética (DN). En conjunto, nuestros hallazgos revelan nuevos conocimientos mecánicos sobre los efectos protectores de la IL-22 en los riñones y destacan las oportunidades terapéuticas de la IL-22 y los reguladores metabólicos involucrados en diversas enfermedades renales.
PALABRAS CLAVEinterleucina-22,riñónlesión, reprogramación metabólica, disfunción mitocondrial

Cistanchetubulosapreviene la enfermedad renal, haga clic aquí para obtener la muestra
1. INTRODUCCIÓN
Agudoriñónlesión(IRA), un problema común de salud pública asociado con una alta mortalidad y morbilidad, afecta a millones de pacientes hospitalizados en todo el mundo y muestra una incidencia en rápido aumento. células epiteliales tubulares (TEC), especialmente en el túbulo proximal. 4–7 Múltiples tipos de literatura respaldan que su daño severo y sostenido a menudo causa una reparación tisular incompleta y desadaptativa, lo que lleva a una respuesta inflamatoria, degeneración tubular, fibrosis renal y eventual progresión a enfermedad renal en etapa terminal (ESTD).8-10 Desafortunadamente, además de la atención de apoyo basada en diálisis, no hay terapias bien establecidas parariñónlesiónestán disponibles. Por lo tanto, es muy necesario un tratamiento proactivo para reducir el sufrimiento que causa a los pacientes y las importantes cargas financieras deriñónlesióna los individuos y la sociedad.
La interleucina-22 (IL-22), un miembro importante de las citocinas de la familia IL-10, recientemente ha atraído una gran atención como agente de supervivencia en numerosos trastornos provocados por daño epitelial.11–13 IL -22 provoca la protección tisular y la homeostasis principalmente a través de la activación de la vía de señalización STAT3 y la promoción de la proliferación epitelial.14,15 Es importante destacar que los estudios han demostrado que la expresión de IL-22R1 se limita a las TEC proximales renales , y el tratamiento con IL-22 puede proteger contra la lesión epitelial renal y acelerar la regeneración tubular.16,17 Sin embargo, aunque la evidencia acumulada indica que la IL- 22 es un antídoto terapéutico eficaz parariñónlesión, se sabe poco sobre los mecanismos subyacentes de la recuperación de TEC inducida por IL- 22-. Comprender la base molecular de IL-22 es importante tanto para explorar cómo actúa IL-22 para inhibir AKI o ESTD como para descubrir modificadores moleculares, así como procesos cruciales involucrados en la prevención de daño renal.
La reparación renal después del daño es un proceso metabólicamente dependiente y complicado.18 La evidencia reciente indica que las firmas metabólicas de las células pueden regular la supervivencia y la plasticidad de las células renales y, por lo tanto, proporcionar información mecanicista útil sobre cómo los procesos metabólicos controlan la reparación de los tejidos.19,20 Específicamente, estos hallazgos muestran que la reprogramación metabólica por PGC1 o el sistema S-nitroso-CoA reductasa protege contrariñónlesión. Mecánicamente, el aumento de la glucólisis y la fosforilación oxidativa (OXPHOS) pueden promover el crecimiento y las vías de señalización defensivas o pueden satisfacer las demandas energéticas más altas de la mitosis y la biosíntesis anabólica durante la reparación de órganos.19,21 Recientemente, nuestros estudios han demostrado que la IL-22 alivia disfunción mitocondrial en el hígado, que involucra los procesos metabólicos celulares.22,24 Por lo tanto, nos preguntamos si la IL-22 protege contra el daño renal y la apoptosis mediante la regulación de sus estados metabólicos. Para determinar los mecanismos de reparación renal mediada por IL-22, tratamos células epiteliales tubulares proximales humanas (PTEC) con estimulación de estrés. Sugerimos que IL-22 impulsa la reprogramación metabólica para mejorar la glucólisis y OXPHOS, que previenen la disfunción de TEC. Además, demostramos que IL-22 indujo este programa a través de la activación de la señalización de AMPK/AKT y sus modificadores moleculares para aliviar la disfunción mitocondrial. Nuestras observaciones arrojan luz sobre la regulación de los estados metabólicos para el tratamiento y la prevención de enfermedades renales y brindan nuevos conocimientos para desarrollar intervenciones novedosas y eficientes para la lesión de órganos en general.

Cistanche puede tratarriñónlesión
2. MATERIALES Y MÉTODOS
2.1 Reactivos
La oligomicina, la rotenona y el cianuro de p-trifluorometoxifenilhidrazona (FCCP) se obtuvieron de Sea horse Biosciences; la IL-22 recombinante fue proporcionada por Novoprotein (China); Se obtuvieron cisplatino (Crisp.), MitoTrackerGreen, LY294002, 5,5′,6,6′-tetracloro-1,1′,3,3′-tetraetilbencimidazolilcarbocianina yoduro (JC-1) y compuesto C de Beyotime Biotechnology (China); los anticuerpos dirigidos a Glut1, -Actina, p-AMPK, AMPK y GAPDH se adquirieron de Abcam; los anticuerpos para STAT3, p-STAT3 (Y705), AKT, p-AKT (S473), PFKFB3 y Caspase-3 se adquirieron de Cell Signaling Technology; rapamicina, ácido palmítico (Palm.), Z-VAD-FMK y glucosa se obtuvieron de Sigma-Aldrich; MitoSOX, Hoechst33342, MitoTracker Red y PKH26 se obtuvieron de Invitrogen.
2.2 Cultivo celular
La célula epitelial del túbulo proximal humano (HK{{0}}) se obtuvo del Banco de células del Instituto de Bioquímica y Biología Celular de Shanghái, Academia de Ciencias de China, y se mantuvo siguiendo los protocolos estándar. HK-2 se sembró en placas de seis pocillos (1 × 10⁶ células/pocillo) o 96-placas de pocillos (1 × 10⁵ células/pocillo) y cultivadas en medio RPMI1640 al 90 por ciento (Gibco) complementado con penicilina 100 U/ml, estreptomicina 100 µg/ml y suero bovino fetal al 10 por ciento (FBS) (Gibco). Primero incubamos HK-2 con IL-22 (0,5 µg/ml) durante 0,5 h, luego d-glucosa 50 mM o cisplatino 5 µg/ml o ácido palmítico 0,2 mM o doxorrubicina 4 µM (DOX ) durante 24 horas. En algunos casos, las células se cultivaron en presencia de Z-VAD-FMK (10 µM), compuesto C (5 µM), LY294002 (20 µM) o rapamicina (50 nM) durante los tiempos indicados.
2.3 Experimentos con caballitos de mar
Analizamos los TEC utilizando un analizador de flujo extracelular Seahorse XF96 para los cambios en la tasa de ácido extracelular (ECAR) y la tasa de consumo de oxígeno (OCR). Brevemente, HK-2 (1 × 10⁵) se cultivó en 96-placas Seahorse bien durante la noche. Luego, lavamos las células con un medio de ensayo de caballito de mar que contenía piruvato 1 mM, glucosa 10 mM y glutamina 2 mM (o sin glucosa para probar ECAR) en una atmósfera sin CO2 a 37 °C durante {{18 }}.5 h. Los datos experimentales se registraron después de inyectar los inhibidores mencionados a continuación a una concentración óptima de FCCP (1,0 µM), oligomicina (1,0 µM), rotenona/antimicina A (0,5 µM), 2-DG (50 mM), o glucosa (10 mM).
Cistanche puede tratarlesión renal
2.4 Modelos de ratones y animales
Se compraron ratones macho BALB/c (6–8 semanas) de Slaccas Experimental Animal Co. (Shanghai, China). Los ratones Db/db y Db/m fueron proporcionados por el Centro de Investigación de Animales Modelo de la Universidad de Nanjing (Nanjing, China). Todos los ratones se mantuvieron en instalaciones libres de patógenos específicos (SPF) y se cultivaron siguiendo los protocolos estándar. Para el modelo AKI, los ratones BALB/c recibieron cisplatino (20 mg/kg) o control de solución salina mediante inyección intraperitoneal. Los ratones Db/db fueron alimentados con una dieta rica en grasas (HFD) en los puntos de tiempo indicados para inducir la nefropatía diabética (DN). Los ratones Db/m fueron alimentados con dietas chow como grupo de control. En experimentos con animales de LRA, se inyectó IL-22 por vía intraperitoneal a una dosis de 0,5 mg/kg/día o 1,5 mg/kg/día durante 4 días consecutivos. En experimentos con animales de DN, se inyectó intraperitonealmente IL-22 a una dosis de 2,5 mg/kg dos veces por semana durante ocho semanas consecutivas. Los ratones de control recibieron la cantidad apropiada de PBS. Nuestros procedimientos experimentales con animales se llevaron a cabo siguiendo los protocolos evaluados y aprobados por el Comité de Ética de Uso y Cuidado de Animales de la Facultad de Farmacia de la Universidad de Fudan. La tinción inmunohistoquímica, la medición del potencial de membrana mitocondrial, la tinción histológica y de especies reactivas de oxígeno (ROS) de secciones de riñón se realizaron como se describió previamente.22–24
2.5 PCR en tiempo real
Obtuvimos el ARN total mediante reactivos TRNzol (Beyotime Biotechnology, China) a partir de muestras de células o tejidos y luego los transcribimos a ADNc utilizando un kit de prueba de transcriptasa inversa MMLV (Beyotime Biotechnology). El nivel de expresión del ARNm se analizó con los instrumentos de PCR en tiempo real (BioRad) utilizando el kit de ensayo SYBR green qPCR-mix (Beyotime Biotechnology) y se estandarizó para GAPDH.
2.6 Citometría de flujo
Las células de riñón se cultivaron y trataron como se describe anteriormente. La tinción de MitoSOX (ROS mitocondrial), MitoTracker Green (masa mitocondrial total) y MitoTracker Red (potencial de membrana mitocondrial) se llevó a cabo de acuerdo con las instrucciones del fabricante y la investigación previa.22–24 Obtuvimos los resultados mediante el citómetro de flujo Beckman Coulter y el Software CytExpert (BD Biosciences).
2.7 Captación de glucosa
Medimos las concentraciones de glucosa en el sobrenadante del cultivo celular mediante una prueba de ensayo de captación de glucosa según el protocolo del fabricante y la investigación previa (GAHK20; Sigma). La normalización de los resultados se llevó a cabo según el número de células.
2.8 Eliminación de genes
Utilizamos el pequeño ARN de interferencia (siRNA; RiboBio, China) para derribar los genes específicos. Primero, Lipofectamine RNAiMAX y siRNA (100 pmol) se mezclaron suavemente mediante pipeteo y se incubaron a 37 ◦C durante 0,5 h. Luego cambiamos el medio de cultivo celular estándar a un cóctel de transfección e incubamos las células durante 6 h para la transfección del gen siRNA. A continuación, cambiamos el cóctel de transfección a un medio de cultivo celular fresco. Después de 48 h, las células renales se incubaron con IL-22 para estudios adicionales.

Cistanche puede tratarlesión renal
2.9 Transferencia de Western
Extrajimos proteínas totales de células o tejidos mediante tampón de lisis RIPA (Beyotime Biotechnology, China). Luego, recolectamos los lisados por centrifugación a 4◦C a 12 000 rpm durante 10 min. Posteriormente, los lisados se calentaron con los tampones de muestra a 100 °C durante 15 min, se sometieron a electroforesis en gel de poliacrilamida con dodecilsulfato de sodio (SDS-PAGE) y se electrotransfirieron a una membrana de difluoruro de polivinilideno (PVDF) (Millipore, Alemania). A continuación, las membranas se bloquearon con albúmina de suero bovino (BSA) al 5 % durante 2 hy se coincubaron con anticuerpos primarios a 4 °C durante la noche. Después de lavar tres veces, las membranas se incubaron con anticuerpos secundarios conjugados con peroxidasa de rábano picante (CST, EE. UU.). Las transferencias de proteína se visualizaron mediante el sistema de formación de imágenes de quimioluminiscencia mejorado.
2.10 Inmunofluorescencia
Las células renales se fijaron con paraformaldehído del 3 al 4 por ciento y se permeabilizaron con 0,1 por ciento de Triton X-100. Luego, bloqueamos las células con BSA al 5 por ciento durante 2 h. Las células se incubaron durante la noche con el anticuerpo anti-GLUT1 a 4 °C, se lavaron cuatro veces y luego se tiñeron con PKH26. Posteriormente, las células renales se tiñeron con Hoechst 33342 y se montaron en portaobjetos. Los datos se obtuvieron mediante microscopía confocal.
2.11 RNA-seq y bioinformática
Las muestras de TEC (2 × 10⁷) se lisaron y el ARN total se extrajo utilizando el mini kit RNeasy, según los protocolos del fabricante (Beyotime, Shanghái, China). El RNA-seq eucariótico se realizó utilizando la tecnología de secuenciación de próxima generación (NGS) en el sistema de secuenciación Illumina HiSeq, lo que proporcionó una longitud de lectura base de 50-. La alineación de las lecturas de secuenciación se realizó utilizando TopHat v2.0.12 contra el ensamblaje UCSC mm10. El análisis de expresión diferencial se calculó utilizando el paquete DESeq2 (http://www.bioconductor.org/packages/release/bioc/html/DESeq2.html) y los análisis de significación estadística se realizaron en R (v3.1.1; http://www .r-project.org/). La sobrerrepresentación de la ruta se realizó utilizando el paquete R ReactomePA.
2.12 Estadísticas
Los datos se expresaron como media ± desviación estándar (SD) y se mostraron usando GraphPad Prism 5.0. Para los resultados que comparan dos o más grupos, las diferencias se calcularon mediante la prueba t de Student o el análisis de varianza de una vía (ANOVA): ***p < 0.00="" 1,="" **p="">< 0,01="" y="" *p=""><>
Cistanche puede tratarlesión renal
3 RESULTADOS
3.1 IL-22 preserva el metabolismo celular en TEC
Debido a que se había sugerido que las mitocondrias eran orgánulos importantes que integraban el metabolismo celular y los procesos apoptóticos, evaluamos la función mitocondrial en TEC que se estimularon conriñónlesióny tratados con IL-22.25 Como se muestra en la Figura 1A-D, la tasa de consumo de oxígeno basal mitocondrial (OCR), la capacidad respiratoria máxima (MRC) y la respiración se bloquearon sustancialmente en los TEC bajo situaciones de estrés. En particular, estas anomalías se evitaron en gran medida mediante el tratamiento con IL- 22. La glucólisis en los TEC dañados, evidenciada por la tasa de acidificación extracelular (ECAR), también se restringió notablemente, en comparación con IL-22 más TEC desafiados por estímulos (Figura 1B y E). Además, demostramos que la fosforilación oxidativa comprometida (OXPHOS) y la glucólisis en los TEC dañados no fueron los efectos secundarios de la apoptosis a través del tratamiento conjunto con un inhibidor de pan-caspasa (Figura S1). Y los efectos reparadores mediados por IL-22-sobre los defectos metabólicos fueron específicos para las TEC renales (Figura S2). Además, la IL-22 promovió la fosforilación oxidante y la glucólisis de las células HK2 en ausencia de estímulos, lo que indica que los efectos de la IL-22 en las vías metabólicas no eran específicos de las TEC dañadas (Figura S3). Además, nuestros resultados también indicaron que IL-22 promovió la expresión y translocación de IL-22R1. Mientras tanto, la fosforilación de STAT3 y los efectos de reprogramación metabólica de IL-22 fueron completamente desarmados por la caída de IL-22R1 (Figura S4). Estos hallazgos sugirieron que IL-22 restauró el estado metabólico de los TEC mediante la activación directa de IL-22R1. Debido a que múltiples pruebas habían sugerido que Glut1 desempeñaba un papel principal en la glucólisis y la homeostasis de la glucosa,26 por lo tanto, preguntamos si IL-22 afectaba la translocación o expresión de Glut1. Como se anticipó, demostramos que IL-22 no solo promovió el Glut1 translocado a la superficie de la membrana celular (PKH26) y la expresión de Glut1, sino que también mejoró la captación de glucosa (Figura 1F y G). En general, estas observaciones indicaron que IL-22 podría mejorar OXPHOS y la glucólisis en los TEC lesionados.
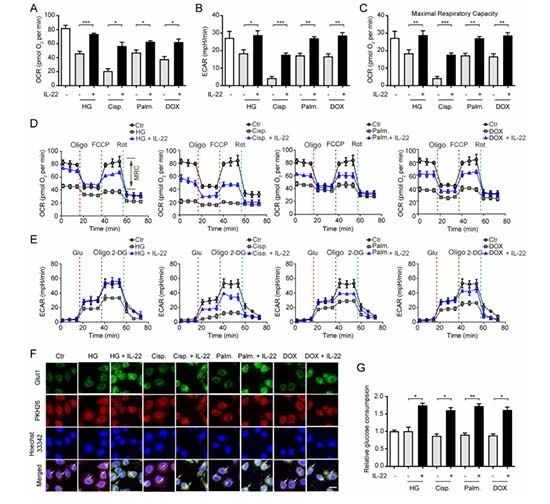
FIGURA 1 IL-22 conserva la aptitud mitocondrial y la glucólisis en las TEC. (A y B) Usamos el analizador de flujo extracelular Seahorse XF96 para probar los cambios en la tasa de ácido extracelular (ECAR) y la tasa de consumo de oxígeno (OCR) de los TEC. OCR y ECAR en TEC incubados con glucosa 50 mM, o cisplatino 5 µg/mL, o ácido palmítico 0.2 mM, o DOX 4 µM en presencia o ausencia de IL{{8} }. (C) Capacidad respiratoria máxima (MRC) de TEC evaluada por cambios en tiempo real en OCR. (D y E) Curvas en OCR y ECAR de TEC después de incubar con oligomicina, FCCP, glucosa, rotenona y {{10}}DG. (F) Localización y expresión de membrana nuclear (azul), Glut1 (verde) y plasmática (roja) en TEC. (G) Consumo de glucosa en TEC después del tratamiento con IL-22 durante 24 h. norte=3; barras de escala, 20 µm; prueba t de Student (no pareada); ***p < 0,001,="" **p="">< 0,01,="" *p=""><>
3.2 IL-22 mejora la acumulación de mitocondrias disfuncionales en TEC a través de la activación de la mitofagia
formación de LC3 puncta en TEC después de la exposición a estímulos (Figura 2F). Luego, agotamos la mitofagia para evaluar su función en el metabolismo de las células del túbulo a través de siRNA-ATG5 (Figura S6). Nuestros datos sugirieron que el agotamiento de la mitofagia en las TEC inhibió significativamente los efectos protectores de la IL-22 en la preservación de la aptitud mitocondrial (Figura 2E), lo que indica que la IL-22 previene la disfunción mitocondrial a través de la activación de la mitofagia.

FIGURA 2 IL-22 inhibe la disfunción mitocondrial y la acumulación de ROS mitocondrial a través de la inducción de mitofagia. (A) La masa mitocondrial se tiñó y evaluó mediante MitoTracker Green y citometría de flujo. Las ROS mitocondriales se evaluaron en TEC teñidas con MitoSOX (B). El potencial de la membrana mitocondrial se evaluó en TEC teñidos con MitoTracker Green y MitoTracker Red (C); La acumulación de ROS mitocondrial fue evaluada por MitoTracker Green y MitoSOX (D). (E) Los resultados de la imagen confocal sugirieron la producción de ROS mitocondrial marcada con MitoSOX. (F) Las imágenes microscópicas representativas indicaron la formación de puntos LC3-GFP en presencia o ausencia de IL-22 TEC estimulados como (A) durante 24 h. (E) OCR se evaluó en presencia o ausencia de IL-22 y siRNA-ATG5 durante 24 h. norte=3; prueba t de Student (no pareada); ***p < 0.001,="" **p="">< 0,01,="" *p=""><>
3.3 IL-22 mantiene la integridad mitocondrial de las TEC a través de la activación de la señalización de AMPK/AKT
La señalización de AMPK, como centro de señalización clave que vincula la supervivencia y el metabolismo celular, el metabolismo de la glucosa controlado, la síntesis de lípidos y la función mitocondrial.28 De acuerdo con el efecto protector renal de la interleucina-22 mediado por la reprogramación metabólica de las TEC, evaluamos si IL-22 regula la integridad mitocondrial a través de la activación de la transducción de señalización de AMPK. Encontramos que IL-22 aumentó la actividad de la transducción de señalización de STAT3/AMPK/AKT en los TEC lesionados, evidenciado por la fosforilación de STAT3, AMPK y AKT (Figura 3A). Además, estos procesos se bloquearon en células tubulares que carecían de STAT3, lo que demostró que la IL-22 regulaba la señalización de AMPK/AKT a través de STAT3 (Figura 3B y C; Figura S7). Además, incubamos TEC con el compuesto C y LY294002 para inhibir directamente las transducciones de señalización de AMPK/AKT y luego evaluamos sus funciones mitocondriales y estados metabólicos. Los resultados revelaron que el cotratamiento con estos inhibidores de la señalización impidió significativamente la mejora de OXPHOS y el flujo glucolítico inducido por el tratamiento con IL-22 (Figura 3D–I), lo que sugirió que IL-22 promovió el metabolismo de las TEC a través de la activación de AMPK Vía de señalización de /AKT.

FIGURA 3 La inducción de la señalización de AMPK/AKT por IL-22 mantiene la aptitud mitocondrial. Los TEC se estimularon con 50 mM de glucosa, o 5 µg/mL de cisplatino, o 0.2 mM de ácido palmítico, o 4 µM de DOX en presencia o ausencia de IL-22, Compuesto C , o LY294002 para los tiempos indicados. (A y B) La activación de la vía de señalización de AMPK/AKT en TEC o STAT3-WT y STAT3–KD TEC se evaluó mediante análisis de transferencia Western. (C y D) Se analizaron los cambios en el OCR y ECAR de los TEC. (E) La activación de la vía de señalización de AMPK/AKT en TEC se evaluó mediante análisis de transferencia Western. (F-I) Los cambios en el OCR y ECAR de los TEC se midieron en los TEC frente a los TEC tratados con el Compuesto C y LY294002. prueba t de Student (no pareada); norte=3; ***p < 0,001,="" **p="">< 0,01,="" *p=""><>
3.4 IL-22 preserva el metabolismo celular y la integridad mitocondrial de las TEC a través de la inducción de PFKFB3
Además, para explorar cómo se mejoró la aptitud y el metabolismo mitocondrial de los TEC, utilizamos el análisis de secuenciación de ARN (RNA-seq) para evaluar la expresión génica después de la lesión por estímulos y el tratamiento con IL-22. Demostramos que múltiples genes cambiaron significativamente en TEC después de la incubación con IL-22 (Figura 4A). Usando las bases de datos disponibles, se realizó el análisis de enriquecimiento del conjunto de genes de esos genes regulados al alza, lo que sugirió un notable enriquecimiento de genes en la vía de señalización de AMPK y la vía de señalización de objetivos MYC (Figura S8). En particular, PFKFB3 fue inducido significativamente por IL-22 de entre los genes duranteriñónlesiónfactores de estimulación (Figura 4A). Estas observaciones también fueron indicadas por imágenes confocales, Q-PCR y western blot. La alta expresión de PFKFB3 dependía de la señalización de AMPK/AKT (Figura 4B y C; Figura S9).
Estudios previos habían sugerido que PFKFB3 podría regularse mediante numerosas transducciones de señalización para acelerar la regeneración epitelial y la reparación después de una lesión.29,30 Por lo tanto, especulamos que IL-22 indujo a PFKFB3 para preservar el metabolismo celular de las TEC y mantener su aptitud mitocondrial. . Observamos que la inhibición de la señalización de AMPK/AKT redujo la expresión de PFKFB3 (Figura 4D). Entonces, silenciamos PFKFB3 para estudiar más a fondo sus funciones en TEC después de la incubación de IL-22. Nuestros hallazgos indicaron que el PFKFB3 silenciado alivió los efectos de reprogramación metabólica de IL-22 en la restauración de ECAR y OCR (Figura 4E y F) y evitó la captación de glucosa, así como las mitocondrias disfuncionales (Figura 4G y H). Además, demostramos que los efectos de reprogramación metabólica de IL-22 se desarmaron por completo con la eliminación de STAT3-, mientras que la sobreexpresión de PFKFB3 podría rescatar estos fenotipos, lo que sugiere que IL-22 restauró el estado metabólico de las células epiteliales renales dañadas a través de la señalización directa de STAT3-AMPK/AKT-PFKFB3 (Figura S10). En conjunto, estos hallazgos indicaron que la activación de PFKFB3 desempeñó un papel importante en la aptitud mitocondrial y la eliminación de mitocondrias disfuncionales despuésriñónlesión.

FIGURA 4 IL-22 mantiene la integridad mitocondrial y el metabolismo celular de las TEC a través de la inducción de PFKFB3. (A) Gráfico de volcán para la expresión de genes en TEC estimulados con glucosa, cisplatino, ácido palmítico o CCl4 en presencia o ausencia de IL-22 durante 24 h. (B) Los datos microscópicos confocales demostraron la sobreexpresión de PFKFB3 en TEC después del tratamiento con IL-22, que requirió la activación de la señalización de AMPK/AKT. (C) Los resultados de PCR en tiempo real indican que IL-22 indujo la sobreexpresión de PFKFB3 en TEC, que podría inhibirse mediante el bloqueo de señalización de AMPK/AKT. (D) Activación de la vía de señalización AMPK/AKT/PFKFB3 en TEC después del tratamiento con el Compuesto C y LY294002. (E y F) ECAR y OCR en TEC en presencia o ausencia de IL-22, o si-PFKFB3 durante 24 h. (G) Consumo de glucosa en TEC después del tratamiento con IL-22 o si-PFKFB3 durante 24 h. (H) La disfunción mitocondrial se evaluó en TEC teñidos con MitoTracker Red y MitoTracker Green. prueba t de Student (no pareada); norte=3; ***p < 0.001,="" **p="">< 0.01,="" *p=""><>
3.5 IL-22 alivia la lesión renal en la LRA inducida por cisplatino a través de la supresión de la acumulación renal de ROS y la disfunción mitocondrial
Para probar nuestra hipótesis de que la IL-22 regulaba los perfiles metabólicos renales para suprimir la lesión del túbulo renal in vivo, inicialmente evaluamos las funciones renales en ratones tratados con IL-22- a los que se les había administrado cisplatino (Figura 5A). Cuatro días después de la inyección de cisplatino, IL-22 no solo redujo sustancialmente el daño celular tubular y la hemorragia; su disfunción renal también se había atenuado significativamente, lo que se evaluó mediante los niveles séricos de nitrógeno ureico en sangre (BUN) y creatinina (Cr) (Figura 5B-D). También sugerimos IL-22 evitadoriñónlesiónmejorando la regeneración renal y activando la señalización de AMPK/AKT y PFKFB3 (Figura 5E y F; Figura S11). A continuación, empleamos MitoSOX (colorante ROS específico de la mitocondria) y JC-1 (colorante dependiente del potencial de la membrana mitocondrial) para evaluar la disfunción mitocondrial involucrada en el metabolismo celular y la apoptosis. En las secciones de riñón de ratones que habían sido tratados con cisplatino, hubo acumulaciones comparables de ROS. Cabe destacar que cuatro días después del tratamiento con IL-22, los niveles de ROS se redujeron notablemente en los riñones lesionados en comparación con los ROS de los ratones después del tratamiento con PBS (Figura 5G). En conjunto, estas observaciones ofrecieron evidencia de que la IL-22 desempeñó un papel protector en la LRA inducida por cisplatino a través del control de la aptitud mitocondrial.

FIGURA 5 IL-22 alivia el daño renal en la LRA inducida por cisplatino a través de la inhibición de la acumulación renal de ROS y mitocondrias disfuncionales. (A) Diagrama esquemático de los protocolos experimentales para evaluar los efectos protectores de IL-22 en el daño renal inducido por cisplatino (20 mg/kg). PBS como grupo de control de vehículo y N-acetil-l-cisteína (NAC, 150 mg/kg) como grupo de control positivo. (B y C) Se evaluaron los niveles de BUN en suero, los niveles de Cr en suero, los pesos de los riñones y los pesos corporales. Se presentaron imágenes representativas de HE (D), tinción Ki-67 (E), MitoSOX (G) y JC{{10}} (G) de las secciones de riñón. (F) La comparación de la activación de STAT3/AMPK/AKT/PFKFB3 en extractos de riñón de los ratones tratados con IL-22- se evaluó mediante transferencia Western. prueba t de Student (no pareada); norte=3; ***p < 0,001,="" **p="">< 0,01,="" *p=""><>
3.6 IL-22 mejora la lesión renal inducida por la diabetes a través de la inhibición de la disfunción mitocondrial a través de la activación de la señalización de AMPK/AKT y PFKFB3
Nosotros y otros habíamos demostrado que la IL-22 podía ejercer una potencia protectora en la nefropatía diabética (DN), que era la causa principal de la ESTD.31–33 Para estudiar más a fondo los mecanismos subyacentes, alimentamos ratones db/db con dietas grasas (HFD) y luego los trató con IL-22 (2.5 mg/kg, IP) durante 8 semanas (Figura 6A). Cuando los ratones fueron alimentados solo con HFD, encontramos fibrosis y dilatación tubular renal, además de atrofia. Por el contrario, cuando los ratones fueron tratados con IL-22, la fibrosis renal y la histopatología mejoraron significativamente, así como las funciones renales. Las funciones renales mejoradas también se demostraron mediante la disminución de los niveles séricos de Cr, BUN y albúmina urinaria total/24 h (EAU) (Figura 6B-E). Para estudiar si estas actividades estaban asociadas con las mitocondrias, evaluamos la función mitocondrial involucrada en el metabolismo celular y la apoptosis. Los resultados indicaron que el tratamiento con IL-22 alivió significativamente el aumento de los niveles mitocondriales de ROS y las mitocondrias disfuncionales acumuladas (Figura 6F y G). Para estudiar más a fondo si las funciones protectoras de IL-22 en el riñón estaban mediadas por PFKFB3, inyectamos ratones con adenovirus PFKFB3 shRNA para eliminar PFKFB3. Nuestros datos indicaron que los efectos beneficiosos de IL-22 sobre la lesión renal inducida por HFD, la necrosis, la esteatosis, la disfunción mitocondrial y la acumulación de ROS y la activación de las vías de señalización relacionadas fueron bloqueados significativamente por la eliminación de PFKFB3 (Figura 6B-G) . El aumento de la expresión de la señalización de AMPK/AKT también se observó después del tratamiento con IL-22 (Figura 6H). Junto con el alivio de la disfunción renal, también mejoraron las expresiones de PFKFB3 y enzimas importantes en el metabolismo celular en los riñones de ratones tratados con IL-22- (Figura 6H e I). Además, el análisis histológico de los órganos principales no indicó lesiones morfológicas después de la inyección de IL-22, lo que sugiere que la IL-22 podría ser un antídoto seguro sin efectos secundarios significativos o reacciones tóxicas parariñónlesióntrastornos (Figura 12S). En general, nuestros datos sugirieron que IL- 22 alivió el daño renal a través de la activación de la transducción de señalización de AMPK/AKT, la inhibición de la acumulación de ROS y la regulación de la función mitocondrial a través de PFKFB3.
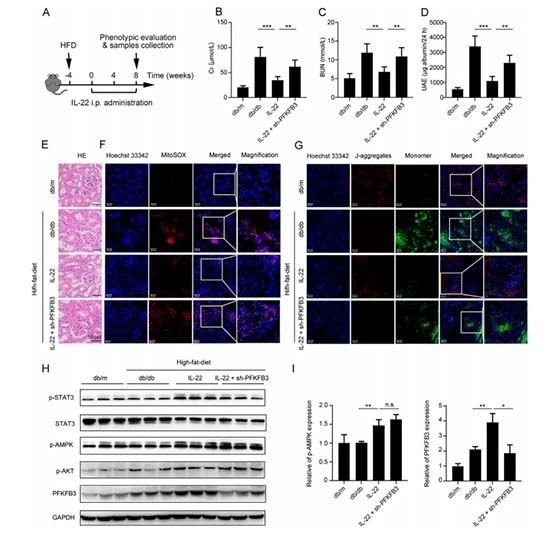
FIGURA 6 IL-22 alivia el daño renal inducido por la diabetes mediante la señalización de AMPK/AKT y la inhibición de mitocondrias disfuncionales mediante la activación de PFKFB3. (A) Diagrama esquemático de los protocolos experimentales para evaluar los efectos protectores de IL-22 en daño renal inducido por diabetes. Db/m como grupo de control del vehículo. (B–D) Se evaluaron los niveles séricos de BUN, los niveles séricos de Cr y los EAU. Se presentaron imágenes representativas de HE (E), MitoSOX (F) y JC-1 (G) de las secciones del riñón. (H e I) La comparación de la activación de STAT3/AMPK/AKT/PFKFB3 en extractos de riñón de ratones tratados con IL-22- se evaluó mediante transferencia Western. prueba t de Student (no pareada); norte=3; ***p < 0.001,="" **p="">< 0,01,="" *p=""><>
4. DISCUSIÓN
La IL-22 es secretada por las células inmunitarias, como las células NK, los neutrófilos, las células linfoides innatas (ILC) y las células T, pero no afecta directamente a estas células. Regula predominantemente las funciones de las células epiteliales debido a la expresión restringida de IL-22R1 en las células epiteliales, incluidas las TEC.15,34 Estudios anteriores han sugerido que la IL-22 puede proteger contra la lesión epitelial renal y acelerar la regeneración tubular a través de la inhibición del inflamasoma NLRP3 y la activación de la señalización de STAT3 y AKT.16,31 Sin embargo, los mecanismos subyacentes de esta protección aún no se han dilucidado. Para determinar aún más la base molecular de la función de IL- 22 enriñónlesión, primero investigamos si la IL-22 puede aliviar la disfunción de las células renales y la posterior apoptosis mediante la regulación de sus estados metabólicos. Además, estudiamos dos modelos deriñónlesión(IRA y DN) con la administración de IL-22 y compare las observaciones con las de los grupos de control. Indicamos que IL-22 corrige la reprogramación metabólica para mantener la integridad mitocondrial, disminuye la acumulación de ROS mitocondrial en TEC lesionados y alivia el daño renal progresivo y la necrosis. Además, nuestros hallazgos sugieren que IL- 22 puede activar vías de señalización asociadas a AMPK/AKT en TEC y riñones, importantes mediadores de la cicatrización de heridas epiteliales y la supervivencia celular, para mejorar la disfunción mitocondrial y el deterioro de los perfiles metabólicos y abrir una nueva campo para el mecanismo protector renal mediado por IL-22. En general, nuestros resultados indican que los efectos protectores renales de IL-22 están mediados por procesos de reprogramación metabólica.
El papel crítico de OXPHOS y la glucólisis en la protección renal se ha revelado en estudios anteriores, donde el equilibrio de la utilización de combustible mediante la inhibición de la S-nitrosilación de la piruvato quinasa M2 (PKM2) protege contrariñónlesión.19 Nuestros resultados, que sugieren la promoción de OXPHOS y la glucólisis por IL-22 a través del aumento de la expresión de reguladores metabólicos y la captación de glucosa, demuestran que IL-22 revierte los estados metabólicos en deterioro asociados conriñónlesión. Estas observaciones son consistentes con las funciones protectoras renales de la irisina recombinante y también con los hallazgos de los hepatocitos, donde se necesitan tanto OXPHOS como la glucólisis para las funciones celulares, pero si se inhiben, las células del túbulo primario y los hepatocitos se vuelven disfuncionales.35, 36
La disfunción mitocondrial se ha convertido en la base molecular clave que integra los perfiles metabólicos y la muerte celular. En este documento, ilustramos que tras la estimulación de factores de lesión, el tratamiento de TEC con IL-22 mejoró la acumulación de ROS mitocondriales y mitocondrias disfuncionales en comparación con la disminución de la integridad y función mitocondrial en los grupos de control. Es importante destacar que las vías de señalización de AMPK, sensores de energía críticos, modulan los procesos metabólicos para mantener la homeostasis celular y prevenir el daño celular o tisular.37–39 En el estudio actual, nuestras observaciones indican que IL-22 preserva la integridad y función mitocondrial mediante la activación Señalización de AMPK/AKT para demostrar que IL-22 previene la disfunción mitocondrial de manera directa, lo cual es vital para mantener la capacidad respiratoria de los TEC. Además, demostramos que la señalización de IL-22 a través de STAT3 tiene efectos directos en la preservación de la aptitud mitocondrial, ya que se ha investigado previamente que la fosforilación inducida de STAT3 es fundamental para preservar la integridad mitocondrial.40,41
Múltiples tipos de literatura han indicado previamente que PFKFB3 juega el papel de un modulador central en el metabolismo celular.29–30,42 Aquí, primero demostramos que IL-22 promueve la activación de PFKFB3 a través de la señalización de AMPK/AKT en TEC, lo que sugiere que IL{ {6}} regula los estados metabólicos mediante la participación del control de PFKFB3. Además, estudios previos indican además que PFKFB3 es importante para controlar el OXPHOS exagerado y la glucólisis en muchas células o tejidos.42,43 De acuerdo con estos estudios, nuestras observaciones también indican la promoción del OXPHOS y la glucólisis en la IL-22- TEC tratados a través de la activación de PFKFB3. Entre los numerosos moduladores posteriores de IL-22 que se han investigado, nuestros datos ilustran que PFKFB3 aumenta significativamente después del tratamiento con IL-22 durante el daño de TEC y que el eje STAT3–AMPK/AKT PFKFB3 es vital para la preservación de la integridad mitocondrial duranteriñónlesión(Figura 7). Queda por investigar si la IL-22 también regula otros reguladores metabólicos y procesos relacionados con la lesión renal mediante la activación de la vía de señalización STAT3-AMPK/AKT-PFKFB3.

FIGURA 7 Nuestros hallazgos ilustran un papel importante de IL-22 en el control del metabolismo de las células renales para tratar el daño renal mediante la activación del eje STAT3-AMPK/AKT-PFKFB3. Estos resultados sugieren que las oportunidades terapéuticas de la IL-22 y la señalización metabólica asociada podrían ser directamente favorables para el tratamiento o la prevención de numerosos daños renales.
5. CONCLUSIONES
En conclusión, demostramos el potencial terapéutico y los mecanismos subyacentes de IL-22 en el daño renal. IL-22 regula el metabolismo de las células renales a través de la reprogramación metabólica para preservar la integridad mitocondrial. La inhibición de sus reguladores (es decir, AMPK, Akt y PFKFB3) podría conducir a perfiles metabólicos anormales y pérdida de aptitud mitocondrial, como se indica en TEC con tratamiento espontáneo-22, que había aumentado las mitocondrias disfuncionales y la acumulación de ROS mitocondrial. Lo que es más importante, el daño renal por disfunción mitocondrial y la acumulación de ROS en modelos de ratones se aliviaron sustancialmente con el tratamiento con IL-22 a través de la activación de la señalización STAT3-AMPK-AKT-PFKFB3. Por lo tanto, nuestro estudio indicó que dirigirse a la señalización metabólica asociada podría ser directamente favorable para numerosas enfermedades de daño renal y la IL-22 es un agente terapéutico potencial para prevenir y tratar estas enfermedades.
Los productos Cistanche pueden tratarlesión renal
De: 'Reprogramación metabólica renal mediada por IL-22-a través de PFKFB3 para tratarriñónlesión' porWei Chen y otros
---clin. Traducir Medicina. 2021;11:e324.
REFERENCIAS
1. Mehta RL, Burdmann EA, Cerdá J, et al. Reconocimiento y manejo de enfermedades agudasriñónlesiónen la Sociedad Internacional de Nefrología 0by25 Global Snapshot: un estudio transversal multinacional. Lanceta. 2016;387:2017-2025.
2. Lameire NH, Bagga A, Cruz D, et al. Agudoriñónlesión: una creciente preocupación mundial. Lanceta. 2013;382:170-179.
3. Mehta RL, Cerdá J, Burdmann EA, et al. La iniciativa 0by25 de la Sociedad Internacional de Nefrología para pacientes agudosriñónlesión(cero muertes prevenibles para 2025): un caso de derechos humanos para nefrología. Lancet. 2015;385:2616-2643.
4. Levey AS, James MT. Agudoriñónlesión. Ann Intern Med.2017;167:ITC66-ITC80.
5. Jansen MPB, Florquin S, Roelofs JJTH. El papel de las plaquetas en la enfermedad agudariñónlesión. Nat Rev Nephrol. 2018;14:457-471.
6. Agarwal A, Dong Z, Harris R, et al. Mecanismos celulares y moleculares de la LRA. J Am Soc Nephrol. 2016;27:1288-1299.
7. Linkermann A, Chen GC, Dong G, Kunzendorf U, KrautwaldS, Dong Z. Muerte celular regulada en AKI. J Am Soc Nephrol.2014;25:2689-2701.
8. Ferenbach DA, Bonventre JV. Mecanismos de reparación desadaptativa después de AKI que conducen a un envejecimiento renal acelerado y CKD.Nat Rev Nephrol. 2015;11:264-276.
9. Chawla LS, Eggers PW, Star RA, Kimmel PL. Agudoriñónlesióny la enfermedad renal crónica como síndromes interconectados. N Engl J Med. 2014;371:58-66.
10. He L, Wei QQ, Liu J, et al. AKI en CKD: lesión aumentada, reparación suprimida y los mecanismos subyacentes. Riñón Int.2017;92:1071-1083.
11. Forbester JL, Lees EA, Goulding D, et al. La interleucina-22 promueve la fusión fagolisosomal para inducir la protección contra salmonella enterica Typhimurium en células epiteliales humanas. Proc Natl Acad Sci USA. 2018;115:10118-10123.
12. Geng H, Bu HF, Liu F, et al. En tejidos intestinales inflamados y células epiteliales, la señalización de interleucina 22 aumenta la expresión de ARN no codificante largo H19, lo que promueve la regeneración de la mucosa. Gastroenterología. 2018;155:144-155.
13. Aden K, Tran F, Ito G, et al. ATG16L1 orquesta la señalización de interleucina-22 en el epitelio intestinal a través de cGAS-STING. J ExpMed. 2018;215:2868-2886.
14. Huber SN, Gagliani LA, Zenewicz FJ, et al. La IL-22BP está regulada por el inflamasoma y modula la tumorigénesis en el intestino. Naturaleza. 2012;491:259-263.
15. Lindemans CA, Calafiore M, Mertelsmann AM, et al. La interleucina-22 promueve la regeneración epitelial mediada por células madre intestinales. Naturaleza. 2015;528:560-564.
16. Xu MJ, Feng D, Wang H, Guan Y, Yan X, Gao B. IL-22 mejora la lesión por isquemia-reperfusión renal al dirigirse al epitelio del túbulo proximal. J Am Soc Nephrol. 2014;25:967-977.
17. Kulkarni OP, Hartter I, Mulay SR, et al. El receptor tipo Toll 4-inducido por IL-22 acelera la regeneración renal. J Am Soc Nephrol. 2014;25:978-989.
18. Kang HM, Ahn SH, Choi P, et al. La oxidación defectuosa de ácidos grasos en las células epiteliales tubulares renales tiene un papel clave en el desarrollo de la fibrosis renal. Nat Med. 2015;21:37-46.
19. Zhou HL, Zhang R, Anand P, et al. La reprogramación metabólica por el sistema S-nitroso-CoA reductasa protege contrariñónlesión. Naturaleza. 2019;565:96-100.
20. Dumesic PA, Egan DF, Gut P, et al. Un uORF conservado evolutivamente regula PGC1 y el metabolismo oxidativo en ratones, moscas y atún rojo. Metab. celular 2019;30:190-200.
21. Shyh-Chang N, Zhu H, Yvanka de Soysa T, et al. Lin28 mejora la reparación de tejidos al reprogramar el metabolismo celular. Célula. 2013;155:778-792.
22. Chen W, Luan J, Wei G, et al. Expresión hepatocelular in vivo de interleucina-22 utilizando nanopartículas híbridas basadas en la penetración como posibles agentes terapéuticos contra la hepatitis. Biomateriales. 2018;187:66- 80.
23. Chen W, Zhang X, Fan J, et al. La unión de la interleucina-22 a la apolipoproteína AI mejora la lesión hepática inducida por paracetamol en ratones. teranóstica. 2017;7:4135-4148.
24. Zai W, Chen W, Wu Z, et al. Entrega del gen de la interleucina-22 dirigida en el hígado mediante polimetformina y nanopartículas híbridas basadas en la penetración para tratar la enfermedad del hígado graso no alcohólico. Interfaces de material de aplicación ACS. 2019;11:4842-4857.
25. Khacho M, Harris R, Slack RS. Las mitocondrias como reguladores centrales del destino de las células madre neurales y la función cognitiva. Nat Rev Neurosci. 2019;20:34-48.
26. Ip WKE, Hoshi N, Shouval DS, Snapper S, Medzhitov R. Efecto antiinflamatorio de IL-10 mediado por la reprogramación metabólica de los macrófagos. Ciencias. 2017;356:513-519.
27. Saito Y, Chapple RH, Lin A, Kitano A, Nakada D. AMPK protege a las células que inician la leucemia en las leucemias mieloides del estrés metabólico en la médula ósea. Célula Célula Madre. 2015;17:585- 596.
28. Mihaylova MM, Shaw RJ. La vía de señalización de AMPK coordina el crecimiento celular, la autofagia y el metabolismo. biol celular nat. 2011;13:1016-1023.
29. Li FL, Liu JP, Bao RX, et al. La acetilación acumula PFKFB3 en el citoplasma para promover la glucólisis y protege a las células de la apoptosis inducida por cisplatino. Nat Comun. 2018;9:508.
30. De Bock K, Georgiadou M, Schoors S, et al. Papel de la glucólisis impulsada por PFKFB3- en la formación de vasos. Célula. 2013;154:651-663.
31. Dudakov JA, Hanash AM, van den Brink MR. Interleucina-22: inmunobiología y patología. Annu Rev Immunol. 2015;33:747- 785.
32. Wang S, Li Y, Fan J, et al. La interleucina-22 mejoró la lesión renal y la fibrosis en la nefropatía diabética mediante la inhibición de la activación del inflamasoma NLRP3. Enfermedad de muerte celular. 2017;8:e2937.
33. Shen YL, Chen W, Han L, et al. El anticuerpo VEGF-B y la proteína de fusión de interleucina-22 mejoran la nefropatía diabética mediante la inhibición de la acumulación de lípidos y las respuestas inflamatorias. Acta Pharm Sin B. 2020. https://doi.org/10.1016/j. apsb.2020.07.002.
34. Ouyang W, O'Garra A. IL-10 citocinas de la familia IL-10 e IL-22: de la ciencia básica a la traducción clínica. Inmunidad. 2019;50:871- 891.
35. Xiang X, Feng D, Hwang S, et al. La interleucina-22 mejora la insuficiencia hepática crónica mediante la reprogramación de las vías de regeneración deterioradas en ratones. J Hepatol. 2020;72:736-745.
36. Chen W, Zai W, Fan J, et al. La interleucina-22 impulsa una reprogramación adaptativa metabólica para mantener la aptitud mitocondrial y tratar la lesión hepática. teranóstica. 2020;10:5879-5894.
37. Peng H, Wang Q, Lou T, et al. La diafonía músculo-riñón mediada por mioquinas suprime la reprogramación metabólica y la fibrosis en los riñones dañados. Nat Comun. 2017;8:1493.
38. Saberi B, Ybanez MD, Johnson HS, Gaarde WA, Han D, Kaplowitz N. La proteína quinasa c (PKC) participa en la hepatotoxicidad por paracetamol a través de vías de señalización dependientes e independientes de la quinasa c-jun-n-terminal (jnk). hepatología. 2014;59:1543-1554.
39. Mo R, Lai R, Lu J, et al. La autofagia mejorada contribuye a los efectos protectores de IL-22 contra la lesión hepática inducida por paracetamol. teranóstica. 2018;8:4170-4180.
40. Wegrzyn J, Potla R, Chwae YJ, et al. Función de Stat3 mitocondrial en la respiración celular. Ciencias. 2009;323:793-797.
41. Chen W, Hu Y, Ju D. Terapia génica para trastornos neurodegenerativos: avances, conocimientos y perspectivas. Acta Pharm Sin B. 2020;10:1347-1359.
42. Cao Y, Zhang X, Wang L, et al. La glucólisis endotelial mediada por PFKFB3-promueve la hipertensión pulmonar. Proc Natl Acad Sci USA. 2019;116:13394-13403.
43. Doménech E, Maestre C, Esteban-Martínez L, et al. AMPK y PFKFB3 median la glucólisis y la supervivencia en respuesta a la mitofagia durante el arresto mitótico. biol celular nat. 2015;17:1304- 1316.