La proteína no estructural 4B del virus del Zika interactúa con DHCR7 para facilitar la infección viral
Dec 21, 2023
ABSTRACTO
El virus Zika (ZIKV) desarrolla proteínas no estructurales para evadir la respuesta inmune y asegurar una replicación eficiente en las células huésped. Recientemente se informó que la enzima metabólica del colesterol 7-deshidrocolesterol reductasa (DHCR7) afecta las respuestas inmunes innatas en la infección por ZIKV. Sin embargo, la proteína no estructural vital y los mecanismos implicados en la evasión viral mediada por DHCR7-no están bien dilucidados. En este estudio, demostramos que la infección por ZIKV facilitó la expresión de DHCR7. En particular, el DHCR7 regulado positivamente a su vez facilitó la infección por ZIKV y el bloqueo de DHCR7 suprimió la infección por ZIKV. Mecánicamente, la proteína no estructural 4B (NS4B) del ZIKV interactuó con DHCR7 para inducir la expresión de DHCR7. Además, DHCR7 inhibió la fosforilación de la quinasa 1 de unión a TANK (TBK1) y del factor regulador de interferón 3 (IRF3), lo que resultó en la reducción de la producción de interferón beta (IFN-) y genes estimulados por interferón (ISG). Por lo tanto, proponemos que ZIKV NS4B se una a DHCR7 para reprimir la activación de TBK1 e IRF3, lo que a su vez inhibe IFN- e ISG, facilitando así la evasión de ZIKV. Este estudio amplía los conocimientos sobre cómo las proteínas virales no estructurales antagonizan la inmunidad innata para facilitar la infección viral a través de enzimas metabólicas e intermediarios del colesterol.
cistanche tubulosa-mejora el sistema inmunológico
1. Introducción
Como flavivirus transmitido por mosquitos, el virus Zika (ZIKV) se identificó inicialmente en el macaco rhesus de Uganda en 1947. La epidemia de ZIKV, que sufrió varios brotes en todo el mundo, se ha convertido en una amenaza acumulativa para la salud mundial debido a la expansión explosiva a través de las rutas de los mosquitos, los viajes mundiales de transportadores asintomáticos y transmisión sexual. La mayoría de las infecciones por ZIKV en las epidemias pasadas fueron asintomáticas o leves (Wang et al., 2016); sin embargo, en las últimas epidemias, la infección por ZIKV ha provocado enfermedades devastadoras, incluidas secuelas neurológicas durante el embarazo (microcefalia y muerte fetal) y trastornos neurológicos. (Síndrome de Guillain-Barré) en adultos (Cao-Lormeau et al., 2016; Pierson y Diamond, 2020; Rasmussen et al., 2016). El sistema inmunológico innato es la primera y crítica línea de defensa inmune del huésped contra la infección viral. Después de la infección por ZIKV, el ARN viral fue reconocido por el gen intracelular inducible por ácido retinoico I (RIG-I) (Chazal et al., 2018; Hertzog et al., 2018; Kato et al., 2006), que inició la respuesta inmune innata posterior. respuestas, incluida la activación de la quinasa 1 de unión a TANK (TBK1), la fosforilación del factor regulador de interferón 3 (IRF3) y luego la producción de interferones tipo I (IFN-I) (Fitzgerald et al., 2003; Grant et al., 2016; Xia et al., 2018) y la expresión de docenas de genes estimulados por interferón (ISG) con diversos efectos antivirales (Savidis et al., 2016; Schneider et al., 2014). El sistema inmunológico del huésped produce IFN e ISG para restringir la infección viral; sin embargo, el propio ZIKV evolucionó una variedad de mecanismos de escape para garantizar una supervivencia y replicación exitosas en la célula huésped, como la codificación de proteínas no estructurales (NS) específicas. El ARN genómico del ZIKV genera siete proteínas no estructurales, incluidas NS1, NS2A, NS2B, NS3, NS4A, NS4B y NS5 (Berthoux, 2020). ZIKV NS1 recluta la deubiquitinasa USP8 del huésped para estabilizar la caspasa-1 y atenúa la señalización de IFN tipo I para beneficiar la infección por ZIKV (Zheng et al., 2018). Se ha informado que un NS1 mutante se une a TBK1 y disminuye la fosforilación de TBK1, lo que lleva a una reducción de la producción de IFN (Xia et al., 2018). ZIKV NS3 se une y secuestra proteínas de estructura humana (14-3-3ε y 14-3-3η) (Riedl et al., 2019), mientras que NS4A interactúa con MAVS para atenuar RIG-I- y MDA{{50} }respuestas inmunes innatas mediadas (Ma et al., 2018). En particular, ZIKV NS5 se une y degrada el transductor de señal y el activador de la transcripción 2 (STAT2) para atenuar la señalización de IFN tipo I (Grant et al., 2016; Kumar et al., 2016). Además, también se ha demostrado que NS5 interactúa con RIG-I y suprime la poliubiquitinación ligada a K63-de RIG-I, reprimiendo así la producción de IFN (Li et al., 2020). Además, también se ha demostrado que ZIKV NS2A, NS2B, NS4A y NS4B dominan la producción de IFN al atacar elementos discretos en la vía RIG-I (Xia et al., 2018). Para lograr una replicación eficiente en células de mamíferos, el ZIKV también depende de los componentes metabólicos lipídicos de la célula huésped para formar una envoltura y completar el ensamblaje de partículas virales (Chen et al., 2020; Leier et al., 2020). El colesterol es uno de los componentes lipídicos de las membranas celulares y participa en múltiples funciones biológicas (Ikonen, 2008). La homeostasis celular del colesterol está estrechamente modulada por la síntesis de colesterol, incluida la absorción de partículas de lipoproteínas y la liberación a aceptores extracelulares. Prácticamente todas las células de los mamíferos dependen del metabolismo del colesterol (Luo et al., 2020). La evidencia acumulada ha indicado que el metabolismo del colesterol participa en la respuesta inmune innata contra la infección viral (Blanc et al., 2013; Petersen et al., 2014; York et al., 2015). Tras la infección viral, la síntesis de colesterol cambió notablemente y estuvo acompañada por una expresión mejorada de IFN-I e ISG en macrófagos (Li et al., 2017; Liu et al., 2008; York et al., 2015). Como enzima clave en el metabolismo del colesterol, la colesterol-25-hidroxilasa (CH25H) convierte el colesterol en 25-hidroxicolesterol (25HC), que ha sido identificado como el producto biológico que contribuye a una respuesta inmune innata contra una gran mayoría. de virus, incluido el virus de la inmunodeficiencia humana 1 (VIH-1), el virus de la estomatitis vesicular (VSV), el virus del herpes simple 1 (HSV-1), el virus del Ébola (EBOV), el ZIKV, el virus del herpes gamma murino ( MHV68), el virus de la fiebre del valle del Rift (RVFV) y el virus de la encefalitis rusa primavera-verano (RSSEV) (Blanc et al., 2013; Li et al., 2017; Liu et al., 2013). Los estudios actuales son limitados a la hora de investigar cómo los productos metabólicos del colesterol (por ejemplo, 25HC) podrían manipular la transducción de señales y participar en la inmunidad innata. Hasta la fecha, las enzimas o intermediarios previos a la biosíntesis del colesterol aún no están bien dilucidados. Como enzima metabólica vital del colesterol, la 7-deshidrocolesterol reductasa (DHCR7) podría borrar el doble enlace C (7–8) en el anillo B de los esteroles y catalizar el colesterol del 7-deshidrocolesterol ({{100} }DHC) (Luu et al., 2015). 7-El DHC también es un precursor de la vitamina D, y las mutaciones de DHCR7 están relacionadas con un mayor nivel de vitamina D, lo que sugiere que DHCR7 muestra efectos biológicos complicados en la conversión de colesterol y vitamina D (Kuan et al., 2013; Prabhu et al. , 2016a). Un estudio bien presentado ha demostrado que el silencio de DHCR7 podría activar la vía PI3K-AKT3, lo que conduciría a la fosforilación de IRF3 Ser385 y promovería la producción de IFN para inhibir múltiples infecciones virales in vitro e in vivo (Xiao et al., 2020). Sin embargo, la comprensión del metabolismo del colesterol mediado por DHCR7-en la evasión inmunitaria mediada por proteínas NS del ZIKV está mal definida. Aquí, dilucidamos un mecanismo distinto al que ZIKV NS4B se dirige a DHCR7, una enzima clave en la síntesis de colesterol, para atenuar la respuesta de IFN-I y facilitar la infección por ZIKV. Descubrimos que la infección por ZIKV aumentaba la expresión de DHCR7. Curiosamente, el DHCR7 mejorado promueve la infección por ZIKV, mientras que eliminar o atacar el DHCR7 con inhibidores puede suprimir la infección por ZIKV. Además, ZIKV NS4B podría unirse a DHCR7 y así inducir la expresión de DHCR7, lo que inhibió la activación de TBK1 e IRF3 y condujo a una reducción de la producción de IFN e ISG. Por lo tanto, proponemos que la unión de ZIKV NS4B a DHCR7 disminuya la activación de IRF3, que a su vez inhibe IFN- e ISG para facilitar la evasión de ZIKV. Este estudio amplía conocimientos novedosos sobre cómo la proteína no estructural del ZIKV suprime la inmunidad innata para facilitar la infección viral mediante la interacción con las enzimas metabólicas del colesterol.
cistanche tubulosa-mejora el sistema inmunológico
Haga clic aquí para ver los productos Cistanche Enhance Immunity
【Pregunte por más】 Correo electrónico:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
2. Materiales y métodos
2.1. Líneas celulares
Las células U251 se adquirieron en el Centro de Colección de Cultivos Tipo de China (CCTCC) (Wuhan, China). Se adquirieron células de riñón de Cercopithecus aethiops (Vero), células de riñón embrionario humano (HEK 293T) y células de adenocarcinoma de pulmón humano (A549) de la Colección Estadounidense de Cultivos de Tejidos (ATCC). Las células se mantuvieron en medio Eagle modificado por Dulbecco (DMEM) (Gibco) suplementado con suero bovino fetal (FBS) al 10% (Gibco), penicilina (100 U/mL) y sulfato de estreptomicina (100 ug/mL) a 37 C y 5 %CO2. Se cultivaron células de Aedes albopictus (C6/36) en medio mínimo esencial (MEM) suplementado con 10% de FBS, penicilina (100 U/mL) y sulfato de estreptomicina (100 ug/mL) a 28 C con 5% de CO2.
2.2. Amplificación, titulación e infección del ZIKV
El aislado de ZIKV z16006 (número de acceso de GenBank, KU955589.1) se cultivó en células C6/36, y se dividieron alícuotas de ZIKV en viales de congelación y se almacenaron a 80 C. Los títulos de ZIKV se midieron mediante ensayo en placa. Las células se infectaron con ZIKV a la multiplicidad de infección (MOI) indicada durante 2 h, seguido de lavado con solución salina tampón fosfato (PBS) y luego se cultivaron, recolectaron y examinaron.
2.3. Plásmidos y reactivos.
Se utilizó el plásmido de expresión pcDNA3.1(þ)-3 Flag para clonar genes individuales de ZIKV a partir de fragmentos correspondientes de ADNc de ZIKV. Para construir pGEX6p-1-NS4B, el ZIKV NS4B se subclonó en el vector pGEX6p-1 utilizando el kit de clonación en un solo paso ClonExpress II (Vazyme Biotech, Nanjing, China). Los ADNc que codifican DHCR7, RIG-I, TBK1 e IRF3 humanos clonados en el vector pCAGGS-HA o en el vector Flag pcDNA3.1 (þ)-3 se construyeron mediante un método de clonación molecular estándar. La mutación sin sentido G410S de DHCR7 se construyó utilizando el método de mutagénesis dirigida al sitio. La envoltura monoclonal de conejo anti-ZIKV (GTX133314) se adquirió de GeneTex (Irvine, CA, EE. UU.). Anti-DHCR7 policlonal de conejo (A8049), anti-ISG15 monoclonal de conejo (A2416), anti-TBK1 monoclonal de conejo (A3458), anti-P-TBK1 monoclonal de conejo en Ser172 (AP1026), anti-IRF3 policlonal de conejo (A11118), anti -IgG de conejo (ac005) e IgG anti-ratón (ac011) se adquirieron de ABclonal Technology (Wuhan, China). Los anticuerpos secundarios anti-FITC de ratón y Cy3 anti-conejo se adquirieron de Abbkine (Wuhan, China). El anti-P-IRF3 monoclonal de conejo en Ser396 (29047S) y el anti-ISG56 monoclonal de conejo (14769S) se adquirieron de Cell Signaling Technology (CST, Boston, MA, EE. UU.). El anti-Flag monoclonal de ratón (F3165), el anti-HA monoclonal de conejo (H6908) y el anti-GAPDH monoclonal de ratón (G9295) se adquirieron de Sigma (St Louis, MO, EE. UU.). El antígeno-anticuerpo monoclonal de ratón del grupo antiflavivirus (MAB10216) se adquirió de Millipore (Mass, EE. UU.). Lipofectamine 2000 (11668-027) y Trizol (15596018) se adquirieron de Invitrogen Corporation (Carlsbad, CA, EE. UU.). Poly (I: C) se adquirió de InvivoGen (San Diego, CA, EE. UU.).
2.4. Ensayo en placa
El sobrenadante que contenía ZIKV se diluyó con DMEM sin suero y células Vero infectadas en una placa 12-pocillos durante 2 h, seguido de lavado con 1 ml de PBS dos veces. Se mezclaron bien DMEM que contenía 2 % de FBS y 2 % de agarosa de bajo punto de fusión según una proporción de volumen de 1:1 y se añadió 1 ml de mezcla a cada pocillo. Las células infectadas se cultivaron a 37 C con 5% de CO2 durante 5 a 7 días. Las células se fijaron con paraformaldehído al 4% durante 1 h y se tiñeron con violeta cristal 0.5% durante 30 min. La placa de pocillos 12- se lavó con agua y se calcularon las placas.
2.5. Producción e infección de lentivirus.
Las secuencias de direccionamiento de shRNA para el DHCR7 humano fueron las siguientes: sh-DHCR7-1: 50 -ATTGCCAGCACAGACGGATTT-30, sh-DHCR7-2: 50 -CGTGATTGACTTCTTCTGGAA{ {8}}. El vector pLKO.1 que lleva un shRNA codificado para un control negativo (Sigma-Aldrich, St. Louis, MO, EE. UU.) o la secuencia diana específica se transfectó en células HEK293T junto con psPAX2 y pMD2.G con Lipofectamine 2{{19} }00. Las partículas virales que contenían sobrenadantes se recogieron 36 h después de la transfección y luego se centrifugaron a 210 g durante 10 min. La fase sobrenadante libre de células se filtró a través de un filtro de 0,45 µm para eliminar los restos celulares. Se infectaron células U251 con partículas lentivirales en presencia de 8 ug/ml de polibreno. Después de 48 h de cultivo, se seleccionaron células U251 con puromicina (2 ug/mL, Sigma). La eficacia de eliminación de sh-DHCR7 se determinó mediante RT-PCR y análisis de transferencia Western.

cistanche tubulosa-mejora el sistema inmunológico
2.6. mancha occidental
Las células se lisaron con tampón RIPA suplementado con inhibidores de proteasa e inhibidores de fosfatasa en hielo durante 1 h, luego se centrifugaron a 4 C, 13,000 g durante 1{{10}} min para recolectar la célula. lisado. La concentración de proteínas en el lisado celular se midió mediante un ensayo de proteínas con ácido bicinconínico (BCA). La proteína se separó mediante SDS-PAGE y luego se transfirió a una membrana de difluoruro de polivinilo (PVDF). La membrana de PVDF se bloqueó con tampón de bloqueo de inmunotransferencia TBST (Tris-HCl 10 mmol/l, pH 7,4, NaCl 0,15 mol/l y Tween-20 al 0,05%) que contenía BSA al 5% durante 1 h. Después de lavar con TBST, la membrana se incubó con anticuerpos primarios y segundos anticuerpos y posteriormente se detectó utilizando un sistema de imágenes de quimioluminiscencia (Bio-Rad).
2.7. Ensayo de colesterol total
El colesterol total en las células se detectó utilizando un kit de ensayo de colesterol total en tejidos de Applygen Technologies Inc. (Beijing, China). El estándar de colesterol de 5 mmol/L se sometió a una dilución en serie con etanol anhidro para dibujar la curva estándar, y las cantidades de colesterol celular total se calcularon de acuerdo con las curvas estándar. El experimento se realizó siguiendo el procedimiento proporcionado por el fabricante.
2.8. Ensayos de coinmunoprecipitación
Se transfectaron células HEK293T con los plásmidos indicados. Las células se recogieron y se lisaron con tampón de lisis RIPA suplementado con inhibidores de proteasa. Después de la centrifugación a 18,000 g durante 15 min a 4 C, los lisados celulares se recogieron y se inmunoprecipitaron con Flag-Trap ProteinG Sepharose (GE Healthcare, Milwaukee, WI, EE. UU.) durante 4 h a 4 C. Las proteínas unidas Se eluyeron con tampón de carga 2 y se analizaron mediante inmunotransferencia.
2.9. PCR en tiempo real
Los ARN totales se extrajeron de las células utilizando el reactivo TRIzol (Invitrogen Life Technologies) y el ADNc se produjo con un kit de transcriptasa inversa M-MLV (Promega, Madison, WI, EE. UU.). La RT-PCR se realizó utilizando kits SYBR RT-PCR (DBI Bio-science) en Roche LC480. El ARNm de gliceraldehído-3-fosfato deshidrogenasa (GAPDH) se estableció como referencia endógena para normalizar los ARNm y los niveles de expresión génica se calcularon utilizando el método 2 ΔΔCT. Las secuencias de los cebadores de RT-PCR se muestran en la Tabla complementaria S1. 2.10. Microscopia confocal
Las células U251 se transfectaron con plásmido y se cultivaron durante 30 h, luego se lavaron tres veces con PBS. Las células se fijaron con paraformaldehído al 4% durante 15 minutos y se permearon con PBS que contenía TritonX-100 al 0,1% durante 5 minutos. Después de lavar con PBS, las células se sellaron con PBS que contenía BSA al 5% durante 30 minutos. Las células se lavaron tres veces con PBS y se incubaron con anti-HA, anti-FLAG y anti-flavivirus, luego se incubaron con anticuerpos secundarios anti-FITC de ratón y anti-Cy3 de conejo. Las células se tiñeron con diclorhidrato de 40,6-diamidino-2-fenilindol (DAPI) y se realizaron utilizando un microscopio confocal Olympus.
2.11. Ensayos desplegables de GST
El plásmido pGEX6p-1-NS4B se transfectó en la cepa BL21 de Escherichia coli (E. coli). IPTG indujo GST y GST-NS4B con una concentración final de 0.5 mmol/L, y los cultivos se cultivaron durante 6 a 8 h adicionales a 37 C. Y luego la proteína GST y GST-NS4B fueron inducidas por IPTG con una concentración final de 0. La proteína NS4B se purificó a partir de bacterias E. coli. La proteína GST o GST-NS4B se incubó con perlas de glutatión Sefarosa (Novagen) y se lavó tres veces con PBS. Las proteínas GST y GST-NS4B se incubaron con la proteína de fusión eucariótica HA-DHCR7, que se originó a partir de plásmidos que codifican lisados de células HEK293T expresadas con HA-DHCR7- durante 4 h a 4 C. Los precipitados se lavaron cinco veces, se hirvieron en 2 tampón de carga SDS, y detectado mediante Western blot con anticuerpos anti-GST y anti-HA.
2.12. Mutagénesis dirigida al sitio HA-DHCR7
Se sintetizaron y utilizaron pares apropiados de cebadores mutagénicos (Tabla complementaria S1) para generar la construcción mutada mediante PCR. Se utilizó HA-DHCR7 como plantilla para PrimeSTAR® HS Premix (Takara). Después de la PCR, el plásmido de tipo salvaje que quedaba en el producto de la PCR se digirió selectivamente mediante DpnI (New England Biolabs). El producto de la PCR digerido se transfectó en la cepa DH5 de E. coli. El mutante deseado se confirmó mediante análisis de secuencia de Sanger.

planta cistanche que aumenta el sistema inmunológico
2.13. análisis estadístico
Todos los experimentos se repitieron al menos tres veces con resultados similares. Los datos se expresan como desviación estándar media (DE). La importancia de la variabilidad se determinó mediante la prueba t no pareada de dos colas de Student para ANOVA de dos grupos o unidireccional con la prueba de comparaciones múltiples de Dunnett o ANOVA de dos vías con la prueba de comparaciones múltiples de Sidak para comparaciones de grupos múltiples utilizando el software GraphPad Prism. (versión 8.0.1). Un valor de P < 0.{{10}}5 se consideró estadísticamente significativo y P > 0.05 se identificó como estadísticamente no significativo. Para todos los datos, la significancia se presentó como *P < 0,05, **P < 0,01 y ***P < 0,001.
3. Resultados
3.1. La infección por ZIKV induce la expresión de DHCR7
La evidencia acumulada ha demostrado que el metabolismo del colesterol influye en las respuestas inmunes innatas del huésped contra la infección por flavivirus, como el ZIKV y el virus del dengue (DENV) (Leier et al., 2020; Randall, 2018). DHCR7 codifica una enzima que transforma 7-DHC en colesterol, el último paso en la biosíntesis del colesterol (Moebius et al., 1998). Detectamos por primera vez la expresión de DHCR7 tras la infección por ZIKV. El astrocito humano U251 se infectó con ZIKV, lo que aumentó de manera dependiente de la dosis la expresión de DHCR7 tanto en el ARNm como en la proteína (Fig. 1A-C). Para confirmar el fenómeno, luego examinamos la expresión de DHCR7 en células Vero y descubrimos que la infección por ZIKV inducía sustancialmente la expresión de DHCR7 (Fig. 1D-F), lo que era consistente con los resultados en las células U251.

beneficios de cistanche-fortalecer el sistema inmunológico
3.2. Dirigirse a DHCR7 provoca una actividad anti-ZIKV crítica
Para evaluar los efectos de DHCR7 contra la infección por ZIKV, las células U251 y A549 se transfectaron con el plásmido que codifica HA-DHCR7 y luego se infectaron con ZIKV (MOI=1). Los resultados mostraron que la sobreexpresión de DHCR7 mejoró significativamente la expresión del ARNm de ZIKV (Fig. 2A y B). En particular, con la acumulación de proteína DHCR7, la expresión de la proteína estructural E del ZIKV también aumentó (Fig. 2C y D). Además, realizamos un ensayo de placa utilizando el sobrenadante de la Fig. 2C y encontramos que la sobreexpresión de DHCR7 ascendió significativamente en las unidades formadoras de placa, en comparación con el grupo de control (Fig. 2E y F). Se ha informado que la mutación sin sentido G410S de DHCR7 suprime la actividad enzimática (Fitzky et al., 1998; Shim et al., 2004; Witsch-Baumgartner et al., 2000). Para determinar más a fondo los efectos de DHCR7 sobre la infección por ZIKV, a continuación construimos un mutante inactivo de DHCR7 (G410S). En comparación con el tipo salvaje de DHCR7, el mutante G410S podría inhibir significativamente la infección por ZIKV (Fig. 2G). También realizamos un ensayo de microscopía confocal para confirmar la observación. Como se muestra en la Fig. 2H, la sobreexpresión de DHCR7 aumentó la infección por ZIKV. Para determinar si la actividad de la enzima DHCR7 endógena es crítica para la infección por ZIKV, diseñamos dos ARN de horquilla cortos (shDHCR7-1 y sh-DHCR7-2) dirigidos específicamente a DHCR7 y generamos células U251 silenciadas con DHCR7- líneas con sistema shRNA (Fig. 3A). Finalmente, seleccionamos un sh-DHCR7-1 por su mayor eficiencia de silenciamiento. En comparación con el shRNA de control transducido con líneas celulares, estas células de eliminación de DHCR7 mostraron una menor susceptibilidad a la infección por ZIKV (Fig. 3B y C). A continuación utilizamos el inhibidor selectivo de DHCR7 AY9944, que evita que 7-DHC se comunique con el colesterol (Xu et al., 2011), que se ha demostrado que inhibe la actividad enzimática de DHCR7 (Horlick, 1966; Moebius et al., 1998). En comparación con el control, la administración de AY9944 inhibió de forma dosis-dependiente la infección por ZIKV en células U251 (Fig. 3D-F). También se realizó un ensayo de placa en células Vero para evaluar más a fondo los efectos de DHCR7 y mostrar que AY9944 podría suprimir significativamente la infección por ZIKV (Fig. 3G y H). En particular, la microscopía confocal mostró que la proteína ZIKV E se redujo sustancialmente en presencia de AY9944 (Fig. 3I). Estos hallazgos indicaron que atacar DHCR7 podría inhibir la infección por ZIKV.

Fig. 1. La infección por ZIKV induce la expresión de DHCR7. Las células A – F U251 y Vero se infectaron con ZIKV (MOI ¼ 0, 1 y 2) durante 24 h, y los niveles de ARN intracelular de ZIKV (A, D) y DHCR7 (B, E) se determinaron mediante RT-PCR con GAPDH como control interno. Los niveles relativos de proteína de las envolturas de DHCR7 y ZIKV se detectaron mediante transferencia Western (C, F). Los datos provienen de al menos tres experimentos independientes (DE media) o datos representativos (C, F). La significación estadística se calculó mediante ANOVA unidireccional con la prueba de comparaciones múltiples de Dunnett (A, B, D, E). **P < 0.01, ***P < 0,001. DE, desviación estándar.
3.3. DHCR7 inhibe la activación de TBK1 e IRF3 para reducir la producción de IFN e ISG
Dado que DHCR7 es la enzima vital para convertir 7-DHC en colesterol (Moebius et al., 1998) y la infección por ZIKV podría aumentar la expresión de DHCR7, medimos el nivel de colesterol tras la infección por ZIKV. Revelamos que la infección por ZIKV tiene poco efecto sobre la síntesis de colesterol en las células U251 y Vero (Fig. 4A y B), aunque la DHCR7 aumentó (Fig. 1A-D). Dado el DHCR7 mejorado tras la infección por ZIKV y las funciones clave de los IFN para enfrentar la infección por ZIKV, a continuación determinamos el efecto de DHCR7 en la vía de señalización de IFN-I. Se infectaron células U251 de control y silenciamiento de DHCR7- con ZIKV o se transfectaron con poli(I:C) y se exploró la expresión de IFN-. En comparación con el grupo de control, la infección por ZIKV o el tratamiento con poli(I: C) mejoraron notablemente la expresión de IFN en DHCR7-silenciando las células U251 (Fig. 4C y D). Los ISG son los efectores de las acciones del interferón y desempeñan funciones importantes en la defensa inmune innata contra la infección por ZIKV. También demostramos que el bloqueo de DHCR7 podría reforzar significativamente la expresión de ISG15 e ISG56 tanto a nivel de ARNm como de proteína (Fig. 4E-J). Consistentemente, el tratamiento con el inhibidor de DHCR7 AY9944 podría inducir la expresión de IFN-, ISG15 e ISG56 (Fig. 4K, L). Es importante destacar que el mutante inactivo G410S podría revertir parcialmente los efectos inhibidores de DHCR7 sobre la expresión de IFN e ISG (Fig. 4M, N). La activación de TBK1 e IRF3 es esencial para la inducción de IFN-ISG, por lo que a continuación examinamos el efecto de DHCR7 en la expresión y activación de TBK1 e IRF3. Demostramos que DHCR7 no solo inhibió de manera dependiente de la dosis el nivel de proteína, sino que también suprimió el nivel de fosforilación de TBK1 e IRF3 (Fig. 5A-C). Además, el mutante inactivo G410S revirtió de forma incompleta los efectos inhibidores de DHCR7 sobre la fosforilación de IRF3 y TBK1 (Fig. 5D). De manera inconsistente con los hallazgos de la sobreexpresión de DHCR7, el tratamiento con AY9944 podría inducir la activación de IRF3 y TBK1 en la célula U251 (Fig. 5E).
3.4. ZIKV NS4B interactúa con DHCR7 para inhibir la fosforilación de TBK1 e IRF3
La creciente evidencia ha revelado que el ZIKV evolucionó proteínas NS específicas para facilitar la replicación eficiente en las células huésped al evadir directamente la inmunidad innata y adaptativa del huésped a través de una gran cantidad de mecanismos discretos. Realizamos un ensayo co-IP para detectar la proteína NS de ZIKV individual que podría interactuar con DHCR7. Las células HEK293T se cotransfectaron con pCMV-DHCR7-HA y un plásmido que expresaba la proteína NS individual fusionada con Flag-tag. Como se muestra en la Fig. 6A, DHCR7 solo se une a NS4B pero no interactúa con otras proteínas NS. Se realizaron más ensayos recíprocos de co-IP y mostraron que la proteína NS4B interactuaba con DHCR7 en células HEK293T (Fig. 6B y C). Para confirmar la interacción de NS4B y DHCR7, luego realizamos un microscopio confocal y encontramos que la proteína NS4B y la proteína DHCR7 estaban colocalizadas en el citoplasma (Fig. 6D). El ensayo desplegable de GST demostró aún más la interacción de NS4B y DHCR7 (Fig. 6E). Además, la transfección transitoria de NS4B en células U251 podría inducir dramáticamente la expresión de DHCR7 (Fig. 6F). Es importante destacar que NS4B podría bloquear la fosforilación de TBK1 e IRF3 de manera dependiente de la dosis, lo que se correlacionó positivamente con la activación mejorada de TBK1 e IRF3 en respuesta a DHCR7 (Fig. 6G y H). Sin embargo, la sobreexpresión de NS4B en células HEK293T disminuyó significativamente el nivel de proteína de TBK1, pero tuvo poco efecto sobre la proteína IRF3 (Fig. 6G y H). Para confirmar aún más estas observaciones, NS4B se transfectó en células U251 con eliminación de DHCR7 y mostró efectos inhibidores sobre la proteína endógena y los niveles de fosforilación de TBK1 e IRF3 (Fig. 6I). En conjunto, estos resultados demostraron que ZIKV NS4B interactuaba con DHCR7 y mejoraba la expresión de DHCR7 para bloquear la activación de TBK1 e IRF3 y luego facilitar la infección por ZIKV.
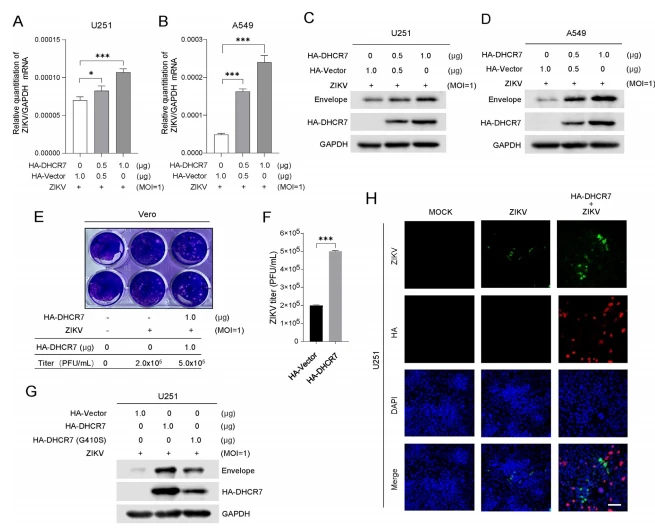
Fig. 2. La sobreexpresión de DHCR7 promueve la replicación del ZIKV. Las células A – D U251 y A549 se transfectaron con el vector HA o HA-DHCR7 a las concentraciones indicadas durante 12 h y luego se infectaron con ZIKV durante 36 h más. Los niveles de ARN de ZIKV se detectaron mediante RT-PCR con GAPDH como control interno (A, B), y los niveles de proteína de la envoltura de ZIKV, HA-DHCR7 y GAPDH se detectaron mediante Western blot (C, D). Se infectaron células E, F Vero con sobrenadante que contenía ZIKV de la Fig. 2C durante 48 h para determinar las copias de ZIKV mediante ensayo de placa. Se transfectaron células G U251 con vector HA, HA-DHCR7 o HA-DHCR7 (G410S) durante 12 h y se infectaron con ZIKV durante 36 h, y se determinaron los niveles de proteína de la envoltura de ZIKV, HA-DHCR7 y Los GAPDH se detectaron mediante transferencia Western. Se transfectaron células H U251 con vector HA o HA-DHCR7 (1 ug) durante 12 h, se infectaron con ZIKV durante 36 h y posteriormente se incubaron con anticuerpos anti-flavivirus de ratón y anti-HA de conejo, luego se tiñeron con anti-ratón conjugado con FITC y Anticuerpos secundarios anti-conejo conjugados con Cy3-. Los núcleos se tiñeron con DAPI. Las imágenes fueron visualizadas mediante microscopía confocal. Barra de escala ¼ 100 μm. Los datos provienen de al menos tres experimentos independientes (DE media) o datos representativos (C, D, E, G, H). La significación estadística se calculó utilizando la prueba t no pareada de dos colas de Student (F) o ANOVA unidireccional con la prueba de comparaciones múltiples de Dunnett (A, B). *P < 0,05, ***P < 0,001. DE, desviación estándar.
4. Discusión
Los IFN tipo I y sus ISG posteriores enfrentan una gran serie de patógenos y desempeñan un papel crucial en la defensa inmune del huésped contra el ZIKV (Lazear et al., 2016). Para evadir la vigilancia mediada por IFN y lograr una replicación suficiente, el ZIKV desarrolla proteínas NS que se dirigen a varios puntos de la vía de señalización de IFN para huir del sistema inmunológico innato celular (Lee et al., 2021). Los numerosos estudios han ilustrado que ZIKV NS1, NS3, NS4A y NS5 inhiben distintos módulos de la vía RIG-I/IFN-I y facilitan la infección viral utilizando mecanismos diversos e independientes (Grant et al., 2016; Kumar et al., 2016 ; Ma et al., 2018; Riedl et al., 2019; Xia et al., 2018; Zheng et al., 2018). Sin embargo, el mecanismo específico del ZIKV NS4B que contrarresta la restricción inmune no está bien definido. ZIKV NS4B es una proteína extremadamente hidrofóbica que consta de 251 aminoácidos y está ubicada en la membrana del retículo endoplásmico con N-terminal (Zou et al., 2014). La inhibición de NS4B de la vía de señalización de IFN-I se ha identificado en diferentes flavivirus (Ding et al., 2013; Munoz-Jordan et al., 2003, 2005; Shan et al., 2021; Yi et al., 2016; Zhang et al. al., 2021). Un estudio reciente informó que la cepa ZIKV INMI1 aislada en Brasil utiliza NS4B para antagonizar la vía de señalización de IFN-I al aplastar la fosforilación de STAT1 y, en consecuencia, interrumpir el transporte nuclear de STAT1 (Fanunza et al., 2021). En este estudio, encontramos un mecanismo distinto en el que ZIKV NS4B abolió la producción de IFN al suprimir la fosforilación de TBK1 e IRF3, el componente aguas arriba de la vía de señalización de IFN-I. En particular, se descubrió la sustitución de aminoácidos (G18R) en ZIKV NS4B, lo que contribuyó a la disminución de la producción de IFN y debilitó la expresión de ISG y, en consecuencia, facilitó la infección viral en ratones, lo que indica la importancia de NS4B como determinante de la patogénesis (Gorman et al. ., 2018). La evidencia emergente indicó la importancia crítica de que el metabolismo del colesterol participe en la respuesta inmune innata (Akula et al., 2016; Dang et al., 2017; Reboldi et al., 2014; York et al., 2015). Aunque se ha documentado que varios intermediarios en el metabolismo del colesterol tienen amplios efectos antivirales (Blanc et al., 2013; Li et al., 2017; Liu et al., 2013; Xiao et al., 2020), nuestro estudio ilustró un mecanismo novedoso. que la enzima metabólica del colesterol DHCR7 estuvo involucrada en la infección por ZIKV al atenuar la activación de TBK1 e IRF3 para facilitar la infección viral. Como enzima clave involucrada en el metabolismo del desmosterol y el colesterol, la DHCR7 representa un interruptor en la conversión de 7-DHC en vitamina D en células de la piel expuestas a los rayos UVB (Prabhu et al., 2016b). Además, DHCR7 se encuentra no solo en la puerta de entrada de la vía de Bloch sino también al final de la vía de Kandutsch-Russell (Prabhu et al., 2016a, 2016b), que desempeña un papel vital en el control de la síntesis de colesterol. La interferencia de DHCR7 y su interacción con otras enzimas en varias vías puede potenciar múltiples funciones en diferentes tipos de células u órganos. Estudios anteriores han revelado que el bloqueo de DHCR7 podría disminuir el desmosterol, el precursor inmediato de la biosíntesis del colesterol, ofreciendo así protección suficiente contra la infección por VHC (Luu et al., 2015; Rodgers et al., 2012). Es importante destacar que Xiao et al. han demostrado que la infección por VSV disminuye la expresión de DHCR7, lo que conduce a una reducción del colesterol, pero a una acumulación mucho mayor de DHC en los macrófagos y el hígado (Xiao et al., 2020). Los macrófagos tratados con 7-DHC produjeron una respuesta antiviral mejorada; mientras que la adición de colesterol mostró una protección menor. Los inhibidores de DHCR7 y la administración de 7-DHC podrían ser enfoques útiles para combatir infecciones virales como HIN1, HSV y VSV. En este estudio, encontramos que el inhibidor de DHCR7 AY9944 podría suprimir la infección por ZIKV. Sin embargo, nuestro estudio reveló que la infección por ZIKV indujo la expresión de DHCR7, pero tuvo poco efecto sobre la biosíntesis de colesterol en las células gliales. No examinamos el nivel de 7-expresión de DHC después de la infección por ZIKV; sin embargo, vale la pena investigar más a fondo si 7-DHC y AY9944 tienen una eficacia terapéutica sinérgica para tratar a pacientes que han sido infectados con ZIKV. Infección en el cerebro. La sobreexpresión de DHCR7 promovió la infección por ZIKV, mientras que el tratamiento con inhibidor selectivo de DHCR7 (AY9944) aumentó fuertemente la producción de IFN-contra la infección por ZIKV. La activación de TBK1 e IRF3 es vital para preparar la señalización de IFN-I. Investigaciones anteriores mostraron que el silenciamiento de DHCR7 o el tratamiento con 7-DHC activaban la vía PI3K-AKT3 para fosforilar IRF3, pero no TBK1 en macrófagos (Xiao et al., 2020). Sin embargo, nuestros hallazgos mostraron que DHCR7 disminuyó de manera dependiente de la dosis tanto la expresión de IRF3 como de TBK1, así como la fosforilación de IRF3 y TBK1. Estas investigaciones sugirieron que DHCR7 podría contribuir a la infección por ZIKV en un mecanismo cerebral independiente del metabolismo del colesterol. Se ha dilucidado bien que el ZIKV utilizó proteínas NS para interactuar directamente con diferentes componentes de la vía RIG-I/IFN-I para evadir la respuesta inmune y facilitar la replicación viral. Anteriormente informamos la interacción de ZIKV NS5 con RIG-I para atenuar la producción de IFN (Li et al., 2020). Otros demostraron que ZIKV NS1 y NS2B se dirigieron a TBK1, NS3 se dirigió a RIG-I y MDA5 para reducir la producción de IFN-I e ISG (Lee et al., 2021; Riedl et al., 2019). Sin embargo, la función de las proteínas NS del ZIKV que se dirigen al metabolismo del colesterol sigue siendo en gran medida difícil de alcanzar. En este estudio, también hemos ilustrado una interacción no reportada entre la enzima metabólica del colesterol DHCR7 y las proteínas ZIKV NS. Mostramos que DHCR7 se une específicamente a NS4B, no a otras proteínas NS. Proporcionamos evidencia crítica de que ZIKV NS4B interactuaba con DHCR7 e inducía sustancialmente su expresión, lo que fue consistente con los resultados en células U251 tras la infección por ZIKV. Es importante destacar que, además de demostrar directamente la participación de DHCR7 y ZIKV NS4B, también encontramos que ZIKV NS4B aumentó la expresión de DHCR7 para inhibir la fosforilación de TBK1 e IRF3 y facilitar la infección por ZIKV. De acuerdo con nuestros resultados, un estudio reciente reveló que la deficiencia de DHCR7 podría activar la señalización de IRF3 e IFN para inhibir el VSV y otros virus en los macrófagos.
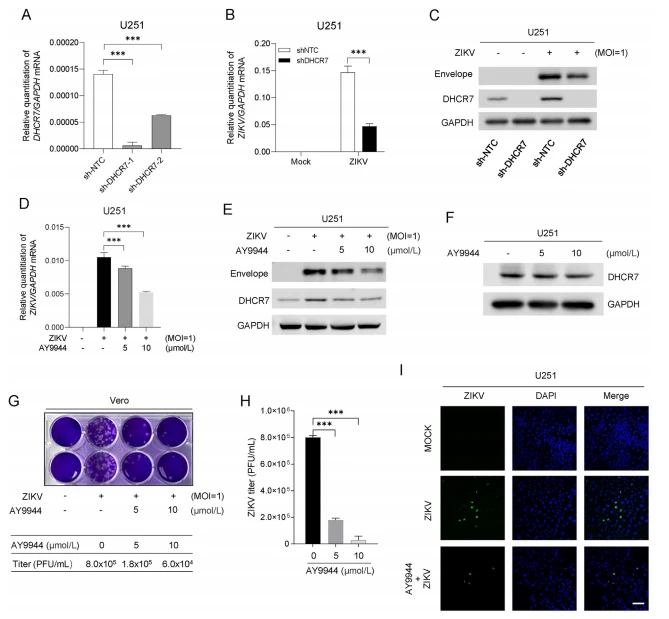
Fig. 3. La eliminación de DHCR7 reduce la infección por ZIKV en células U251. Las células U251 se transdujeron con partículas lentivirales que contenían shRNA contra DHCR7 (shDHCR7-1 y sh-DHCR7-2) o una secuencia no objetivo (sh-NTC), seguido de selección con puromicina durante 14 días. La eficiencia de eliminación se determinó mediante RT-PCR. B, C DHCR7-silenciador de células U251 (sh-DHCR7) y sh-NTC U251 se infectaron de forma simulada o se infectaron con ZIKV (MOI=1) durante 36 h. El nivel de ARN intracelular de ZIKV se detectó mediante RT-PCR con GAPDH como control interno (B) y los niveles de proteína de la envoltura de ZIKV, DHCR7 y GAPDH se detectaron mediante Western blot (C). Las células D, EU U251 se trataron con el inhibidor de DHCR7 AY9944 a la concentración indicada durante 2 h, luego se infectaron con ZIKV (MOI=1) durante 48 h. Las células se sometieron a RT-PCR para detectar el ARN del ZIKV (D). Los niveles de proteína de la envoltura del ZIKV, DHCR7 y GAPDH se detectaron mediante transferencia Western (E). Las células F U251 se trataron con el inhibidor de DHCR7 AY9944 a la concentración indicada durante 36 h, y se detectaron DHCR7 y GAPDH mediante transferencia Western. Se infectaron células G, H Vero con sobrenadante que contenía ZIKV de la Fig. 3E durante 48 h para determinar las copias de ZIKV mediante ensayo de placa. Se trataron células U251 con AY9944 a la concentración indicada durante 2 h, luego se infectaron con ZIKV a MOI ¼ 1 durante 36 h. Las imágenes fueron visualizadas mediante microscopía confocal. Barra de escala ¼ 100 μm. Los datos provienen de al menos tres experimentos independientes (DE media) o datos representativos (C, E, F, G e I). La significación estadística se calcula utilizando ANOVA unidireccional con la prueba de comparaciones múltiples de Dunnett (A, D, H) o ANOVA bidireccional con la prueba de comparaciones múltiples de Sidak (B). ***P < 0,001. DE, desviación estándar.

Fig. 4. DHCR7 inhibe la producción de IFN e ISG. Se infectaron células A, B U251 y Vero con ZIKV (MOI ¼ 0, 0.5 y 1) durante 24 h y se midió el colesterol celular mediante un kit de ensayo de colesterol total en tejido. Las células C – H DHCR7-silenciadoras U251 (sh-DHCR7) y sh-NTC U251 se infectaron con ZIKV (MOI ¼ 1) o se trataron con Poly (I: C) (1 ug/mL) durante 6 h. El ARN celular total se extrajo y se sometió a RT-PCR para la expresión del ARNm con GAPDH como control interno. Las expresiones relativas de IFN- e ISG se normalizaron con respecto a las de las muestras de sh-NTC en el grupo simulado, y los cambios se mostraron excesivos. IFN- (C, D), ISG15 (E, F) e ISG56 (G, H). I, J DHCR7-células silenciadoras U251 (sh-DHCR7) y sh-NTC U251 se infectaron con ZIKV (MOI ¼ 1) o se transfectaron con Poly(I: C) (1 ug/mL) durante 24 h. y los niveles de proteína de ISG15, ISG56 y GAPDH se detectaron mediante transferencia Western. Las células KU251 se trataron con la dosis indicada de AY9944 durante 2 h y luego se infectaron con ZIKV (MOI ¼ 1) durante 6 h. El nivel de IFN-ARN se detectó mediante RT-PCR con GAPDH como control interno. Las células L U251 se trataron con la dosis indicada de AY9944 durante 2 h y luego se infectaron con ZIKV (MOI ¼ 1) durante 24 h. Los niveles de proteína de ISG15, ISG56 y GAPDH se detectaron mediante transferencia Western. Se transfectaron células M U251 con vector HA, HA-DHCR7 o HA-DHCR7 (G410S) durante 24 h y se infectaron con ZIKV (MOI ¼ 1) durante 6 h. Los niveles de IFN-RNA se detectaron mediante RT-PCR con GAPDH como control interno. Se transfectaron células N U251 con vector HA, HA-DHCR7 o HA-DHCR7 (G410S) durante 24 h y luego se infectaron con ZIKV (MOI ¼ 1) durante 24 h. Los niveles de proteína de ISG15, ISG56 y GAPDH se detectaron mediante transferencia Western. Los datos provienen de al menos tres experimentos independientes (DE media) o datos representativos (I, J, L, N). La significación estadística se calcula utilizando ANOVA unidireccional con la prueba de comparaciones múltiples de Dunnett (A, B, K, M) o ANOVA bidireccional con la prueba de comparaciones múltiples de Sidak (C-H). ns, P > 0,05, ***P < 0,001. DE: desviación estándar.

Fig. 5. DHCR7 inhibe la activación de TBK1 e IRF3. A, B Las células HEK293T se cotransfectaron con plásmido codificante TBK1-junto con plásmido que expresa DHCR7- o vector vacío (A). Las células HEK293T se cotransfectaron con plásmido que codifica IRF3-, plásmido que codifica RIG-I, junto con un plásmido que expresa DHCR7- o un vector vacío (B). Las células se recogieron 24 h después de la transfección y se sometieron a transferencia Western con los anticuerpos indicados [anti-TBK1, anti-P-TBK1 (S172), anti-IRF3, anti-PIRF3 (S396), anti-HA y anti-GAPDH. ]. Se transfectaron células C U251 con la dosis indicada de plásmido que expresa DHCR7 o vector vacío durante 24 h. Luego, las células se infectaron con ZIKV (MOI ¼ 1) recolectadas 6 h después de la infección y se sometieron a transferencia Western con los anticuerpos indicados [anti-TBK1, anti-P-TBK1 (S172), anti-IRF3, anti-P-IRF3 ( S396), anti-HA y anti-GAPDH]. Las células D U251 se transfectaron con vector HA, HA-DHCR7 o HA-DHCR7 (G410S) durante 24 h. Luego, las células se infectaron con ZIKV (MOI ¼ 1) recolectadas 6 h después de la infección y se sometieron a transferencia Western con los anticuerpos indicados [anti-TBK1, anti-P-TBK1 (S172), anti-IRF3, anti-PIRF3 (S396) , anti-HA y anti-GAPDH]. Las células E U251 se trataron con la dosis indicada de AY9944 durante 2 h y se infectaron con ZIKV (MOI ¼ 1) durante 6 h, luego se sometieron a transferencia Western con los anticuerpos indicados [anti-TBK1, anti-P-TBK1 (S172), anti -IRF3, anti-P-IRF3 (S396) y anti-GAPDH]. Los datos provienen de al menos tres experimentos independientes y se muestran como datos representativos (A – E).
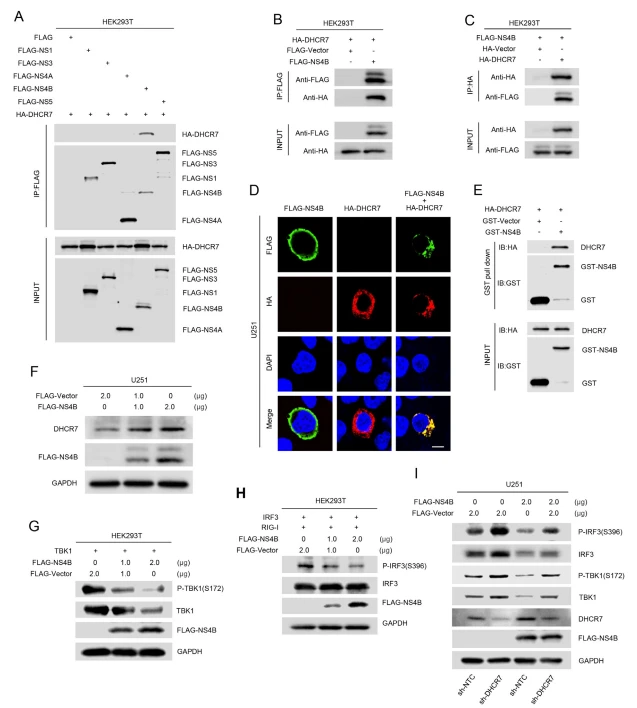
Fig. 6. ZIKV NS4B interactúa con DHCR7 para inhibir la fosforilación de TBK1 e IRF3. Se cotransfectaron células A HEK293T con plásmidos que codifican HA-DHCR7 y plásmidos que codifican proteínas no estructurales de ZIKV (FLAG-NS1, FLAG-NS3, FLAG-NS4A, FLAG-NS4B y FLAG-NS5) o un plásmido de control vacío durante 3 0h. Los lisados celulares se inmunoprecipitaron con anticuerpos anti-Flag y luego se analizaron mediante inmunotransferencia con los anticuerpos indicados. B, C Las células HEK293T se cotransfectaron con plásmidos que codifican HA-DHCR7, plásmidos que codifican FLAG-NS4B o plásmido de control vacío durante 30 h. Los lisados celulares se inmunoprecipitaron con anticuerpo anti-HA (B) o anticuerpo anti-FLAG (C) y luego se analizaron mediante inmunotransferencia con los anticuerpos indicados. Se transfectaron células D U251 con plásmido FLAG-NS4B junto con plásmidos que codifican HA-DHCR7. La localización de FLAG-NS4B (verde), HA-DHCR7 (rojo), el marcador de núcleo DAPI (azul) y la fusión se analizaron con microscopía confocal. Barra de escala ¼ 10 μm. Los lisados de células E de células HEK293T transfectadas con HA-DHCR7 se incubaron con proteína GST o proteína GST-NS4B que se incubó con perlas de glutatión-Sefarosa. Las mezclas se detectaron mediante transferencia Western con anticuerpos anti-HA y anti-GST (arriba). Los lisados de células HEK293T transfectadas y las proteínas purificadas se detectaron mediante transferencia Western con anticuerpos anti-HA y anti-GST (abajo). Se transfectaron células F U251 con plásmido que codifica FLAG-NS4B (0, 1, 2 ug). Los niveles relativos de proteína de DHCR7, FLAG-NS4B y GAPDH se detectaron mediante transferencia Western. Las células G, H HEK293T se cotransfectaron con un plásmido que expresa NS4B o un vector vacío, junto con el plásmido codificante TBK1-(F), el plásmido que expresa IRF3- y los plásmidos que codifican RIG-I (G). . Las células se recogieron 24 h después de la transfección y se sometieron a transferencia Western con los anticuerpos indicados [anti-TBK1, anti-P-TBK1 (S172), anti-IRF3, anti-P-IRF3 (S396), anti-FLAG y antiGAPDH. ]. Se transfectaron células U251 silenciadoras de DHCR7- (sh-DHCR7) y sh-NTC U251 con un plásmido que expresa NS4B o un vector vacío. Las células se recogieron 6 h después de la transfección y se sometieron a transferencia Western con los anticuerpos indicados [anti-TBK1, anti-P-TBK1 (S172), anti-IRF3, anti-P-IRF3 (S396), anti-FLAG y antiGAPDH. ]. Los datos son representativos de tres experimentos independientes.
5. Conclusiones
En resumen, un estudio previo reveló que la enzima DHCR7 del metabolismo del colesterol participa en la respuesta inmune innata contra diversas infecciones virales. Nuestro estudio ha presentado que ZIKV NS4B interactuó con DHCR7 e indujo la expresión de DHCR7. El aumento de DHCR7 inhibe en gran medida la activación de TBK1 e IRF3 y da como resultado una producción reducida de IFN e ISG, lo que facilita la infección por ZIKV en las células gliales. Estos hallazgos han descubierto un nuevo mecanismo de escape inmunológico viral mediante el cual el ZIKV supera la respuesta inmune al atacar directamente a DHCR7 con NS4B.
Referencias
Akula, MK, Shi, M., Jiang, Z., Foster, CE, Miao, D., Li, AS, Zhang, X., Gavin, RM, Forde, SD, Germain, G., Carpenter, S., Rosadini, CV, Gritsman, K., Chae, JJ, Hampton, R., Silverman, N., Gravallese, EM, Kagan, JC, Fitzgerald, KA, Kastner, DL, Golenbock, DT, Bergo, MO, Wang, D ., 2016. Control de la respuesta inmune innata por la vía del mevalonato. Nat. Inmunol. 17, 922–929.
Berthoud, L., 2020. La restricción de flavivirus. Virol. Pecado. 35, 363–377.
Blanc, M., Hsieh, WY, Robertson, KA, Kropp, KA, Forster, T., Shui, G., Lacaze, P., Watterson, S., Griffiths, SJ, Spann, Nueva Jersey, Meljon, A., Talbot, S., Krishnan, K., Covey, DF, Wenk, MR, Craigon, M., Ruzsics, Z., Haas, J., Angulo, A., Griffiths, WJ, Glass, CK, Wang, Y. , Ghazal, P., 2013. El factor de transcripción STAT-1 acopla la síntesis de macrófagos de 25-hidroxicolesterol a la respuesta antiviral del interferón. Inmunidad 38, 106-118.
Cao-Lormeau, V.-M., Blake, A., Mons, S., Lasere, S., Roche, C., Vanhomwegen, J., Dub, T., Baudouin, L., Teissier, A., Larre, P., Vial, A.-L., Decam, C., Choumet, V., Halstead, SK, Willison, HJ, Musset, L., Manuguerra, J.-C., Despres, P., Fournier , E., Mallet, H.-P., Musso, D., Fontanet, A., Neil, J., Ghawche, F., 2016. Brote del síndrome de Guillain-Barré asociado con la infección por el virus del Zika en la Polinesia Francesa: un caso -estudio de control. Lanceta 387, 1531-1539.
Chazal, M., Beauclair, G., Gracias, S., Najburg, V., Simon-Loriere, E., Tangy, F., Komarova, AV, Jouvenet, N., 2018. RIG-I reconoce el 5' Región de los genomas del virus del dengue y del Zika. Representante celular 24, 320–328.
Chen, Q., Gouilly, J., Ferrat, YJ, Espino, A., Glaziou, Q., Cartron, G., El Costa, H., AlDaccak, R., Jabrane-Ferrat, N., 2020. Metabólico La reprogramación por el virus Zika provoca inflamación en la placenta humana. Nat. Comunitario. 11, 2967. Dang, EV, McDonald, JG, Russell, DW, Cyster, JG, 2017. La restricción de la síntesis de colesterol por oxisterol previene la activación del inflamasoma AIM2. Celda 171, 1057–1071 e1011.
Ding, Q., Cao, X., Lu, J., Huang, B., Liu, YJ, Kato, N., Shu, HB, Zhong, J., 2013. El virus de la hepatitis C NS4B bloquea la interacción de STING y TBK1 para evadir la inmunidad innata del huésped. J. Hepatol. 59, 52–58.
Fanunza, E., Grandi, N., Quartu, M., Carletti, F., Ermellino, L., Milia, J., Corona, A., Capobianchi, MR, Ippolito, G., Tramontano, E., 2021 INMI1 El virus NS4B del Zika antagoniza la señalización del interferón al suprimir la fosforilación de STAT1. Virus 13, 2448.
Fitzgerald, KA, McWhirter, SM, Faia, KL, Rowe, DC, Latz, E., Golenbock, DT, Coyle, AJ, Liao, SM, Maniatis, T., 2003. IKKε y TBK1 son componentes esenciales de la señalización IRF3 ruta. Nat. Inmunol. 4, 491–496.
Fitzky, BU, Witsch-Baumgartner, M., Erdel, M., Lee, JN, Paik, Y.-K., Glossmann, H., Utermann, G., Moebius, FF, 1998. Mutaciones en Δ{{ 3}}gen de esterol reductasa en pacientes con síndrome de Smith-Lemli-Opitz. Proc. Nacional. Acad. Ciencia. Estados Unidos 95, 8181–8186.
Gorman, MJ, Caine, EA, Zaitsev, K., Begley, MC, Weger-Lucarelli, J., Uccellini, MB, Tripathi, S., Morrison, J., Yount, BL, Dinnon 3rd, KH, Ruckert, C ., Young, MC, Zhu, Z., Robertson, SJ, McNally, KL, Ye, J., Cao, B., Mysorekar, IU, Ebel, GD, Baric, RS, Best, SM, Artyomov, MN, García -Sastre, A., Diamond, MS, 2018. Un modelo de ratón inmunocompetente de infección por el virus del Zika. Microbio huésped celular 23, 672–685.e6.
Grant, A., Ponia, SS, Tripathi, S., Balasubramaniam, V., Miorin, L., Sourisseau, M., Schwarz, MC, Sanchez-Seco, MP, Evans, MJ, Best, SM, García-Sastre , A., 2016. El virus del Zika se dirige al STAT2 humano para inhibir la señalización del interferón tipo I. Microbio huésped celular 19, 882–890.
Hertzog, J., Dias Junior, AG, Rigby, RE, Donald, CL, Mayer, A., Sezgin, E., Song, C., Jin, B., Hublitz, P., Eggeling, C., Kohl, A., Rehwinkel, J., 2018. La infección con un aislado brasileño del virus del Zika genera ARN estimulador de RIG-I y la proteína viral NS5 bloquea la inducción y señalización del IFN tipo I. EUR. J. Inmunol. 48, 1120-1136.
Horlick, L., 1966. Efecto de un nuevo inhibidor de la biosíntesis del colesterol (AY 9944) sobre los esteroles séricos y tisulares en la rata. J. Res de lípidos. 7, 116–121.
Ikonen, E., 2008. Compartimentación y tráfico de colesterol celular. Nat. Rev. Mol. Biol celular. 9, 125-138.
Kato, H., Takeuchi, O., Sato, S., Yoneyama, M., Yamamoto, M., Matsui, K., Uematsu, S., Jung, A., Kawai, T., Ishii, KJ, Yamaguchi , O., Otsu, K., Tsujimura, T., Koh, CS, Reis e Sousa, C., Matsuura, Y., Fujita, T., Akira, S., 2006. Funciones diferenciales de MDA5 y RIG-I helicasas en el reconocimiento de virus de ARN. Naturaleza 441, 101-105.
Kuan, V., Martineau, AR, Griffiths, CJ, Hypp€onen, E., Walton, R., 2013. Las mutaciones de DHCR7 relacionadas con un mayor nivel de vitamina D permitieron la migración humana temprana a latitudes septentrionales. BMC evolución. Biol. 13, 144.
Kumar, A., Hou, S., Airo, AM, Limonta, D., Mancinelli, V., Branton, W., Power, C., Hobman, TC, 2016. El virus del Zika inhibe la producción de interferón tipo I y su posterior señalización. Representante EMBO 17, 1766-1775.
Lazear, HM, Govero, J., Smith, AM, Platt, DJ, Fernandez, E., Miner, JJ, Diamond, MS, 2016. Un modelo de ratón de la patogénesis del virus Zika. Microbio huésped celular 19, 720–730. Lee, LJ, Komarasamy, TV, Adnan, NAA, James, W., Rmt Balasubramaniam, V., 2021. Las escondidas: la interacción entre el virus del Zika y la respuesta inmune del huésped. Frente. Inmunol. 12, 750365.
Leier, HC, Weinstein, JB, Kyle, JE, Lee, JY, Bramer, LM, Stratton, KG, Kempthorne, D., Navratil, AR, Tafesse, EG, Hornemann, T., Messer, WB, Dennis, EA, Metz, TO, Barklis, E., Tafesse, FG, 2020. Un mapa global de lípidos define una red esencial para la replicación del virus Zika. Nat. Comunitario. 11, 3652.
Li, A., Wang, W., Wang, Y., Chen, K., Xiao, F., Hu, D., Hui, L., Liu, W., Feng, Y., Li, G., Tan, Q., Liu, Y., Wu, K., Wu, J., 2020. Se requiere el sitio conservador NS5 para que el virus Zika restrinja la señalización RIG-I. Frente. Inmunol. 11, 51.
Li, C., Deng, YQ, Wang, S., Ma, F., Aliyari, R., Huang, XY, Zhang, NN, Watanabe, M., Dong, HL, Liu, P., Li, XF, Ye, Q., Tian, M., Hong, S., Fan, J., Zhao, H., Li, L., Vishlaghi, N., Buth, JE, Au, C., Liu, Y., Lu , N., Du, P., Qin, FX, Zhang, B., Gong, D., Dai, X., Sun, R., Novitch, BG, Xu, Z., Qin, CF, Cheng, G. , 2017. 25- El hidroxicolesterol protege al huésped contra la infección por el virus del Zika y su microcefalia asociada en un modelo de ratón. Inmunidad 46, 446–456.
Liu, CI, Liu, GY, Song, Y., Yin, F., Hensler, ME, Jeng, WY, Nizet, V., Wang, AH, Oldfield, E., 2008. Un inhibidor de la biosíntesis del colesterol bloquea la virulencia de Staphylococcus aureus . Ciencia 319, 1391-1394.
Liu, SY, Aliyari, R., Chikere, K., Li, G., Marsden, MD, Smith, JK, Pernet, O., Guo, H., Nusbaum, R., Zack, JA, Freiberg, AN, Su, L., Lee, B., Cheng, G., 2013. La colesterol-25-hidroxilasa inducible por interferón inhibe ampliamente la entrada viral mediante la producción de 25- 25-hidroxicolesterol. Inmunidad 38, 92-105.
Luo, J., Yang, H., Song, BL, 2020. Mecanismos y regulación de la homeostasis del colesterol. Nat. Rev. Mol. Biol celular. 21, 225–245.
Luu, W., Hart-Smith, G., Sharpe, LJ, Brown, AJ, 2015. Las enzimas terminales de la síntesis de colesterol, DHCR24 y DHCR7, interactúan física y funcionalmente. J. Res de lípidos. 56, 888–897.
Ma, J., Ketkar, H., Geng, T., Lo, E., Wang, L., Xi, J., Sun, Q., Zhu, Z., Cui, Y., Yang, L., Wang, P., 2018. La proteína no estructural 4A del virus Zika bloquea la señalización RLR-MAVS. Frente. Microbiol. 9, 1350. Moebius, FF, Fitzky, BU, Lee, JN, Paik, YK, Glossmann, H., 1998.
Clonación molecular y expresión de la delta7-esterol reductasa humana. Proc. Nacional. Acad. Ciencia. Estados Unidos 95, 1899–1902.
Muñoz-Jordan, JL, Laurent-Rolle, M., Ashour, J., Martínez-Sobrido, L., Ashok, M., Lipkin, WI, García-Sastre, A., 2005. Inhibición de la señalización del interferón alfa/beta por la proteína NS4B de los flavivirus. J. Virol. 79, 8004–8013.
Muñoz-Jordan, JL, Sánchez-Burgos, GG, Laurent-Rolle, M., García-Sastre, A., 2003. Inhibición de la señalización del interferón por el virus del dengue. Proc. Nacional. Acad. Ciencia. Estados Unidos 100, 14333–14338.
Petersen, J., Drake, MJ, Bruce, EA, Riblett, AM, Didigu, CA, Wilen, CB, Malani, N., Male, F., Lee, FH, Bushman, FD, Cherry, S., Doms, RW, Bates, P., Briley Jr., K., 2014. La principal vía reguladora de esteroles celulares es necesaria para la infección por el virus de los Andes. Patógeno PLoS. 10, e1003911.
Pierson, TC, Diamond, MS, 2020. La continua amenaza de los flavivirus emergentes. Nat. Microbiol. 5, 796–812. Prabhu, AV, Luu, W., Li, D., Sharpe, LJ, Brown, AJ, 2016a. DHCR7: una enzima vital que cambia entre la producción de colesterol y vitamina D. Prog. Res. lipídica. 64, 138-151.
Prabhu, AV, Luu, W., Sharpe, LJ, Brown, AJ, 2016b. La degradación mediada por el colesterol de la 7-deshidrocolesterol reductasa cambia el equilibrio del colesterol a la síntesis de vitamina D. J. Biol. Química. 291, 8363–8373. Randall, G., 2018. Metabolismo de las gotitas de lípidos durante la infección por el virus del dengue. Tendencias Microbiol. 26, 640–642.
Rasmussen, SA, Jamieson, DJ, Honein, MA, Petersen, LR, 2016. El virus del Zika y los defectos congénitos: revisión de la evidencia de causalidad. N. inglés. J. Med. 374, 1981–1987.
Reboldi, A., Dang, EV, McDonald, JG, Liang, G., Russell, DW, Cyster, JG, 2014. Inflamación. 25-El hidroxicolesterol suprime la inflamación provocada por la interleucina-1-después del interferón tipo I. Ciencia 345, 679–684.
Riedl, W., Acharya, D., Lee, JH, Liu, G., Sherman, T., Chiang, C., Chan, YK, Diamond, MS, Gack, MU, 2019. El virus Zika NS3 imita un celular { {2}}motivo de unión para antagonizar la inmunidad innata mediada por RIG-I y MDA5-. Microbio huésped celular 26, 493–503 e496.
Rodgers, MA, Villareal, VA, Schaefer, EA, Peng, LF, Corey, KE, Chung, RT, Yang, PL, 2012. El perfil de metabolitos lipídicos identifica el metabolismo del desmosterol como un nuevo objetivo antiviral para el virus de la hepatitis C. Mermelada. Química. Soc. 134, 6896–6899. Savidis, G., Perreira, JM, Portmann, JM, Meraner, P., Guo, Z., Green, S., Brass, AL, 2016. Los IFITM inhiben la replicación del virus Zika. Representante celular 15, 2323–2330.
Schneider, WM, Chevillotte, MD, Rice, CM, 2014. Genes estimulados por interferón: una red compleja de defensas del huésped. Año. Rev. Immunol. 32, 513–545.